
Нейроэндокринный контроль эструса и овуляции
Marcel Amstalden и Gary L. Williams
Факультет наук о животных, Техасский университет A & M, Техас, США
Вступление
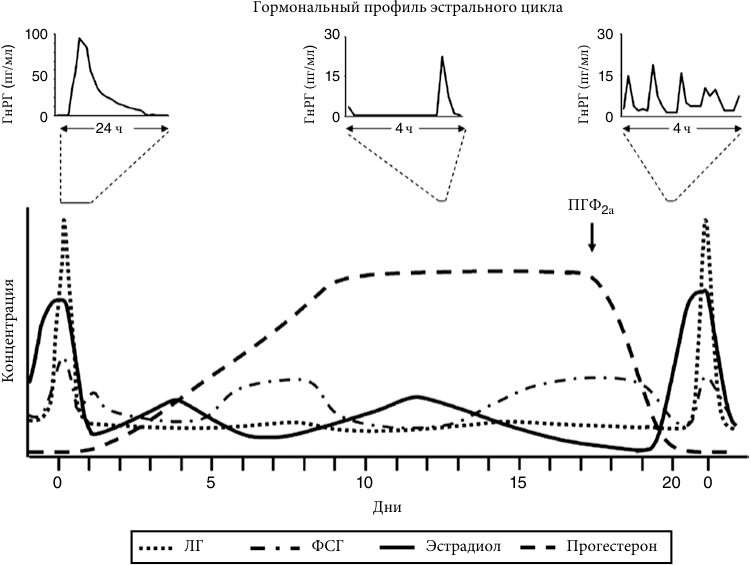
Нейроэндокринный контроль эстрального цикла включает в себя интеграцию ( объединение, совокупность ) множества регуляторных сигналов. Эти сигналы формируют сложную сеть, которая позволяет точно контролировать высвобождение гонадотропинов, необходимых для сложной последовательности процессов развития фолликула, стероидогенеза и овуляции. Секреция гонадотропинрилизинг-гормона (ГнРГ) в гипоталамо-аденогипофизарную портальную систему кровообращения считается основным эндокринологическим механизмом, регулирующим синтез и высвобождение гонадотропина. Внутренние факторы (например, гонадные и метаболические гормоны, факторы роста и сигнальные молекулы) и внешние факторы (например, химические вещества окружающей среды, фотопериод и стресс-факторы) воспринимаются на уровне центральной нервной системы и контролируют секрецию ГнРГ напрямую или, чаще всего через промежуточные пути. При стимуляции ГнРГ синтезируются и выделяются гонадотропины: лютеинизирующий (ЛГ) и фолликулостимулирующий (ФСГ) гормоны. Эти два гонадотропина достигают гонад через кровоток и действуют на яичники, стимулируя рост и созревание фолликулов, овуляцию преовуляторного фолликула и синтез гонадных стероидных и пептидных гормонов. Гормоны гонад, в свою очередь, по принципу обратной связи на центральном и аденогипофизарном уровнях контролируют секрецию ГнРГ и гонадотропинов. Этот сложный регуляторный механизм приводит к динамическим изменениям циркулирующих концентраций репродуктивных гормонов в течение эстрального цикла (рис. 23.1). Продолжительность эстрального цикла у крс колеблется от 17 до 24 дней, в среднем 21 день. 0-й день эстрального цикла считается днем, когда у самки проявляется эструс (стойка с допуском садок) и другое процептивное ( половое ) поведение, такое как садки на сородичей по стаду, беспокойство и мычание. Эструс индуцируется повышением циркулирующих концентраций эстрадиола-17β, связанных с усилением фолликулярного стероидогенеза во время развития фолликула.1 Повышенные концентрации эстрадиола достигают порога за 12–18 часов до начала эструса, вызывая преовуляторный выброс ГнРГ и, следовательно, всплеск гонадотропина ( ЛГ)2 . Начало преовуляторного всплеска ЛГ обычно происходит одновременно с появлением признаков эструса.
Овуляция индуцируется приблизительно через 30 часов от начала эструса и сопровождается резким снижением циркулирующих концентраций эстрадиола. После овуляции фолликулярные клетки подвергаются функциональному превращению в лютеиновые клетки, которые синтезируют и высвобождают прогестерон.1 Во время формирования и созревания желтого тела концентрация прогестерона в крови постепенно увеличиваются и достигает своего пика примерно через 8 дней после овуляции. Период доминирования прогестерона определяется как лютеиновая фаза эстрального цикла. Во время лютеиновой фазы средние циркулирующие концентрации ЛГ относительно низки из-за нечастой эпизодической пульсации ЛГ. Напротив, концентрации ФСГ и эстрадиола колеблются в связи с волнами роста и атрезии фолликулов.3,4 Примерно на 17-й день эстрального цикла у коровы лютеолитические импульсы простагландина (ПГФ2α), высвобождаемые эндометрием, вызывают регрессию лютеиновой ткани и последующее снижение циркулирующих концентраций прогестерона.1 Следовательно, ограничение прогестероном секреции ГнРГ/ЛГ, которое свойственно лютеиновой фазе, снижается, и увеличивается частота их эпизодического высвобождения. Повышение поддержки гонадотропина способствует росту и созреванию фолликулов, усилению фолликулярного стероидогенеза, повышению циркулирующих концентраций эстрадиола и, в конечном итоге, эстральному поведению. Период, характеризующийся низкими циркулирующими концентрациями прогестерона и усиленным развитием фолликулов с последующей овуляцией, называется фолликулярной фазой. Циклические изменения в пульсации гонадотропинов и гормонов яичников, приводящие к фолликулярной активности, как правило, повторяются, за исключением случаев, когда установлена беременность или появляются патологические состояния (например, недостаточное питание, нарушение нормального лютеолиза). Динамические изменения концентраций циркулирующего ЛГ и ФСГ в течение эстрального цикла в значительной степени отражают четкие изменения в характере эпизодической секреции ГнРГ. Во время лютеиновой фазы частота эпизодического выброса ГнРГ и соответствующих импульсов ЛГ5 составляет приблизительно один импульс каждые 4–6 часов.2 Во время фолликулярной фазы эпизодическое высвобождение ГнРГ/ЛГ увеличивается приблизительно до одного импульса в час.2,5
Гормональный профиль эстрального цикла
100 30 30
50 15 15
0 0 0
24 ч 4 ч 4 ч
ПГФ2a
0 5 10 15 20 0
Дни
ЛГ ФСГ Эстрадиол Прогестерон
()пг/млГнРГ )ГнРГ (пг/мл ГнРГ (пг/мл)
Концентрация
Рисунок 23.1 Относительные изменения циркулирующих концентраций лютеинизирующего гормона (ЛГ), фолликулостимулирующего гормона (ФСГ), эстрадиола и прогестерона в течение эстрального цикла у коров. День, в который наблюдается эстральное поведение, обозначается как день 0 эстрального цикла. Циркулирующие концентрации прогестерона увеличиваются после овуляции по мере образования и созревания желтого тела и остаются повышенными на протяжении всей лютеиновой фазы. Высвобождение простагландина ПГФ2α вызывает лютеолиз, что сопровождается снижением циркулирующих концентраций прогестерона. Период быстрого роста и созревания фолликулов и повышенных концентраций эстрадиола в кровообращении, который следует за лютеолизом, характеризует фолликулярную фазу. Повышенный уровень эстрадиола в отсутствие прогестерона приводит к эстральному поведению и преовуляторному выбросу гонадотропин-рилизинг-гормона (ГнРГ; вверху, график слева). Во время лютеиновой фазы прогестерон подавляет частоту пульсирующей секреции ГнРГ (вверху, график посередине) и, следовательно, пульсирующей секреции ЛГ. Во время фолликулярной фазы избавление от ингибирования прогестероном приводит к увеличению частоты импульсов ГнРГ (вверху, график справа) и ЛГ, что способствует созреванию фолликулов и усилению стероидогенеза яичников. Колебания циркулирующих концентраций ФСГ и эстрадиола наблюдаются в связи с началом и развитием фолликулярных волн.
Характер высвобождения ГнРГ/ЛГ в фолликулярную фазу необходим для окончательного развития и созревания фолликула, а также для усиления стероидогенеза. Повышение циркулирующей концентрации эстрадиола во время поздней фолликулярной фазы приводит к преовуляторному всплеску ГнРГ. Всплекс ГнРГ характеризуется устойчивым увеличением концентрации ГнРГ в гипофизарной портальной крови. В начале волны пульсирующий выброс ГнРГ имеет высокую частоту и высокую амплитуду. По мере развития волны пульсирующий характер высвобождения ГнРГ сменяется непрерывным повышением ГнРГ в портальной кровеносной системе.2 Это, в свою очередь, приводит к массивному выбросу ЛГ из аденогипофиза в периферическое кровообращение, аналогично выбросу ГнРГ в портальное кровообращение.2,5 Таким образом, для эстрального цикла характерны два режима эндогенной секреции ГнРГ/ЛГ: тоническое эпизодическое высвобождение и преовуляторный выброс.6 Эти паттерны высвобождения ГнРГ/ЛГ регулируются главным образом эстрадиолом и прогестероном посредством отрицательных и положительных эффектов обратной связи на гипоталамическом и аденогипофизарном уровнях.
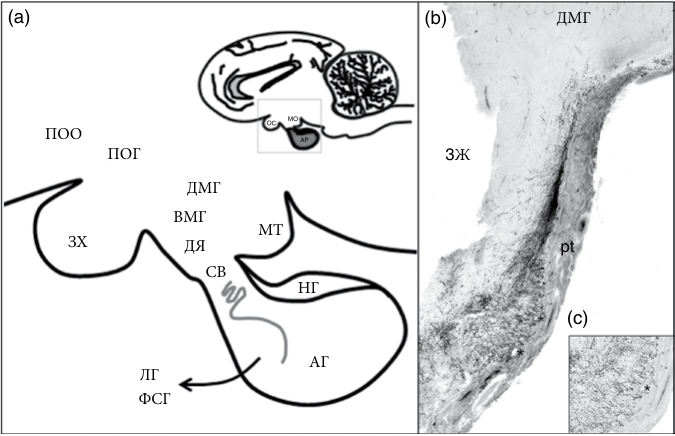
Аксоны ГнРГ-нейронов проецируются на срединное возвышение, где ГнРГ сохраняется в секреторных пузырьках, смежных с капиллярами гипоталамо-гипофизарной портальной сосудистой сети, и высвобождается при стимуляции. Через эту специализированную сосудистую сеть, которая соединяет гипоталамус и аденогипофиз (рис. 23.2), ГнРГ достигает аденогипофиза в функционально значимых концентрациях, связывается с рецепторами ГнРГ на поверхности гонадотропных клеток и стимулирует высвобождение гонадотропина. Хирургическое разрушение гипоталамо-гипофизарной сосудистой системы приводит к снижению содержания аденогипофизарных и циркулирующих концентраций ЛГ и ФСГ из-за отсутствия стимуляции ГнРГ гонадотропных клеток.9,10 . Активность нейронов ГнРГ и высвобождение ГнРГ в срединном возвышении в значительной степени регулируются афферентными нейрональными сигналами и факторами, высвобождаемыми глиальными клетками.11,12 Существуют также доказательства структурных изменений в глиальных клетках, которые окружают капилляры срединного возвышения13 и могут способствовать регуляции диффузии ГнРГ в гипоталамо-гипофизарное кровообращение после секреторного эпизода.
Функциональная анатомия
гипоталамо-гипофизарной единицы
Гонадный стероидный контроль
секреции гонадотропина
Клеточные тела нейронов у крупного рогатого скота, которые синтезируют ГнРГ, расположены в континууме ( скоплении ), который простирается от преоптической области до медиобазальной зоны гипоталамуса промежуточного мозга.7,8
Положительным и отрицательным обратным действием эстрадиола и прогестерона на уровне гипоталамуса и аденогипофиза объясняют большинство изменений в характере высвобождения ГнРГ и ЛГ во время эстрального цикла (рис. 23.3).
(a) (b) ДМГ
ПОО
ПОГ 3Ж
ДМГ
ВМГ
МТ
ЗХ ДЯ pt
СВ
НГ
(c)
АГ
ЛГ
ФСГ
Рисунок 23.2 Диаграмма, представляющая сагиттальный вид нижней части мозга коровы и областей гипоталамуса, участвующих в нейроэндокринном контроле репродукции. У крупного рогатого скота тела нейрональных клеток гонадотропин-рилизинг-гормона (ГнРГ) распределены в континууме, который простирается от перегородки/преоптической области (ПОО) до базальных частей гипоталамуса (а). Нейроны ГнРГ проецируются ( распространяются) на срединное возвышение (СВ), где нейрональные терминалы примыкают к капиллярам гипоталамо-гипофизарной портальной системы. ГнРГ, высвобождаемый в СВ, достигает гонадотропов в аденогипофизе (AГ) и стимулирует синтез и высвобождение лютеинизирующего (ЛГ) и фолликулостимулирующего (ФСГ) гормонов. Изображения с низким (b) и высоким (c) увеличением ГнРГ-иммунореактивных нейрональных волокон, которые выступают базолатерально в направлении срединного возвышения и оканчиваются рядом с капиллярами (*) внешней зоны СВ. ПОГ - передняя область гипоталамуса; ДЯ - дугообразное ядро; ДМГ - дорсомедиальный гипоталамус; МТ - мамиллярное ( сосцевидное) тело; НГ - нейрогипофиз; ЗХ- зрительная хиазма ( перекрест зрительных нервов) ; pt — туберальная часть (pars tuberalis) (листовидный вырост, окружающий ножку гипофиза, функции которого не ясны) аденогипофиза; ПОЗ - преоптическая зона; ВМГ- вентромедиальный гипоталамус; 3Ж, - третий желудочек.
Эффект влияния прогестерона на импульсное высвобождение ГнРГ/ЛГ хорошо охарактеризован: прогестерон ингибирует частоту высвобождения ЛГ14 , действуя на уровне гипоталамуса.15,16 Однако, эффект отрицательной обратной связи эстрадиола является более сложным и проявляется в значительной степени аддитивно ( добавочно ) к действию прогестерона.17 Положительная же обратная связь эстрадиола является основным физиологическим механизмом, стимулирующим развитие преовуляторного выброса ГнРГ и ЛГ в поздней фолликулярной фазе. Интересно, что хотя прогестерон и может блокировать эстрадиол-индуцированный всплеск ЛГ у телок и овец18,19 предшествующее воздействие эндогенного (лютеиновая фаза) или экзогенного (фармакологическое лечение) прогестерона усиливает эстрадиолиндуцированный всплеск ЛГ.20 Механизмы, с помощью которых прогестерон ингибирует частоту импульсного высвобождения ЛГ, по-видимому, опосредованы эндогенными опиоидными пептидами, в частности динорфином.21 Исследования на овцах показали, что прогестерон, воздействуя на нейроны динорфина, расположенные в дугообразном ядре гипоталамуса и содержащие рецепторы к прогестерону, подавляет частоту импульсов ГнРГ посредством активации нейротрансмиссии ( передачи нервных импульсов) эндогенного опиоидного пептида. Этот эффект, по-видимому, опосредован κ( каппа) -опиоидным рецептором. Поддержка этого механизма действия продемонстрирована наблюдениями, согласно которым 1) интрацеребровентрикулярная инъекция прогестерона ингибирует пульсирующую секрецию ЛГ;16 2) антагонисты эндогенного опиоидного пептида22 и κ-опиоидного рецептора,23 инъецированные в медиобазальный ( средний) г ипоталамус, увеличивают частоту импульсов ЛГ; и 3) прогестероновые рецепторы, содержащиеся в динорфиновых нейронах, расположенных в дугообразном ядре гипоталамуса, широко распространяются и на нейроны ГнРГ в медиобазальном гипоталамусе, но в меньшей степени на нейроны ГнРГ в преоптической области.
Важно отметить, что у овец популяция нейронов ГнРГ, расположенных в медиобазальном гипоталамусе, по-видимому, является основной группой нейронов ГнРГ, активируемых во время импульса ЛГ.24 Это доказывает, что нейронная схема, расположенная в этой области, представляет собой путь, посредством которого прогестерон ингибирует частоту эпизодического выброса ГнРГ/ЛГ во время лютеиновой фазы. Хотя у крс механизмы влияния отрицательной обратной связи прогестерона в отношении регуляции высвобождения ЛГ не были тщательно изучены, данные указывают на то, что эндогенные опиоидные пептиды играют роль, аналогичную той, которая характерна для овец25 .
Влияние отрицательной обратной связи эстрадиола на высвобождение ЛГ является более сложным. Во время периодов повышенного уровня прогестерона (например, в лютеиновую фазу) эстрадиол усиливает ингибирование прогестероном пульсации ЛГ. Этот эффект может включать прямое воздействие эстрадиола на эндогенные нейроны опиоидных пептидов, включая нейроны динорфина дугообразного ядра, которые у овец, как известно, экспрессируют α-рецепторы эстрогена и рецепторы прогестерона.26,27 У овариэктомированных овец эстрадиол усиливает экспрессию ( чувствительность) рецепторов к прогестерону в дугообразном ядре, поэтому отрицательная обратная связь прогестерона может усиливаться с помощью эстрадиола28 за счет повышения чувствительности нейронов гипоталамуса к воздействию прогестерона. Отрицательная обратная связь эстрадиола у овец также наблюдается в способности эстрадиола уменьшать амплитуду импульсов ЛГ во время фолликулярной фазы29 . Однако, этот эффект может быть следствием увеличения частоты пульсации ЛГ, наблюдаемой во время поздней фолликулярной фазы2 или ингибирования экспрессии генов α-субъединицы гликопротеиновых гормонов (общих для ЛГ, ФСГ и адренокортикотропина) и β-субъединицы ЛГ.30,31
