
-
Clarke I, Sari I, Qi Y и др. . Сильное действие RFамид-связанного пептида-3 на гонадотрофы гипофиза указывает на его гипофизотропную роль в отрицательной регуляции секреции гонадотропина. Эндокринология 2008;149:5811–5821.
-
Li X, Su J, Fang R и др. . Влияние RFRP-3, ортолога GnIH у млекопитающих, на репродуктивную систему самок свиней in vitro. Mol Cell Endocrinol 2013;372:65–72.
-
Caraty A, Blomenröhr M, Vogel G, Lomet D, Briant C, Beltramo M. RF9 мощно стимулирует секрецию гонадотропинов у овец: свидетельства сезонного порога чувствительности. J Neuroendocrinol 2012;24:725–736.
-
Heidorn R, Barb C, Rogers C, Hausman G, Lents C. Влияние RFамид-родственного пептида-3 (RFRP-3) на секрецию ЛГ у неполовозрелых свинок после овариэктомии. J Anim Sci Suppl 2010;88:566.
-
Anderson G, Relf H, Rizwan M, Evans J. Центральное и периферическое действие RFамид-родственного пептида-3 на секрецию лютеинизирующего
гормона и пролактина у крыс. Эндокринология 2009;150:1834–1840.
-
Thorson J, Prezotto L, Caraty A, Amstalden M, Williams G. RF9, мощный антагонист рецепторной передачи сигналов RFRP3, устраняет торможение секреции ЛГ у кобыл в период сезонной ановуляции. В: Тезисы ENDO 2012. Endocrine Reviews 33. Сообщение представлено на ENDO 2012, Хьюстон, США.
-
Pineda R, Garcia-Galiano D, Sanchez-Garrido M и др. . Характеристика выраженной способности RF9, селективного антагониста рецепторов RFамид-родственных пептидов и нейропептида FF, стимулировать высвобождение гонадотропинов: физиологическое и фармакологическое значение. Эндокринология 2010;151:1902–1913.
-
Rizwan M, Poling M, Corr M и др. . Экспрессия гена рецептора RFамид-родственного пептида-3 в нейронах GnRH и кисспептина и GnRH-зависимый механизм действия. Эндокринология 2012;153:3770–3779.
Фолликулярная и лютеиновая динамика яичников у крупного рогатого скота
Gregg P. Adams и Jaswant Singh
Ветеринарные биомедицинские науки, Западный колледж ветеринарной медицины, Университет Саскачевана, Саскатун, Саскачеван, Канада
Вступление
Цель этой главы - дать обзор нашего нынешнего понимания функции яичников у крупного рогатого скота с акцентом на динамику и контроль фолликулярного и лютеинового развития желез. Следующие разделы расположены более или менее в хронологическом порядке, начиная с формирования яичников плода и сборки фолликулов, раннего фолликулогенеза и оогенеза, динамики антрального фолликула во время эстрального цикла, овуляции и развития желтого тела. Следующий раздел включает описание динамики яичников в различных репродуктивных состояниях (то есть в препубертатном и перипубертатном периодах, беременности и послеродовом периоде, а также в пожилом возрасте). Наконец, делается акцент на значении наших новых знаний о функции яичников крс для клинической и селекционной практики управления, в частности, по разработке современных протоколов синхронизации яичников и суперстимуляции.
Развитие яичников и формирование фолликула
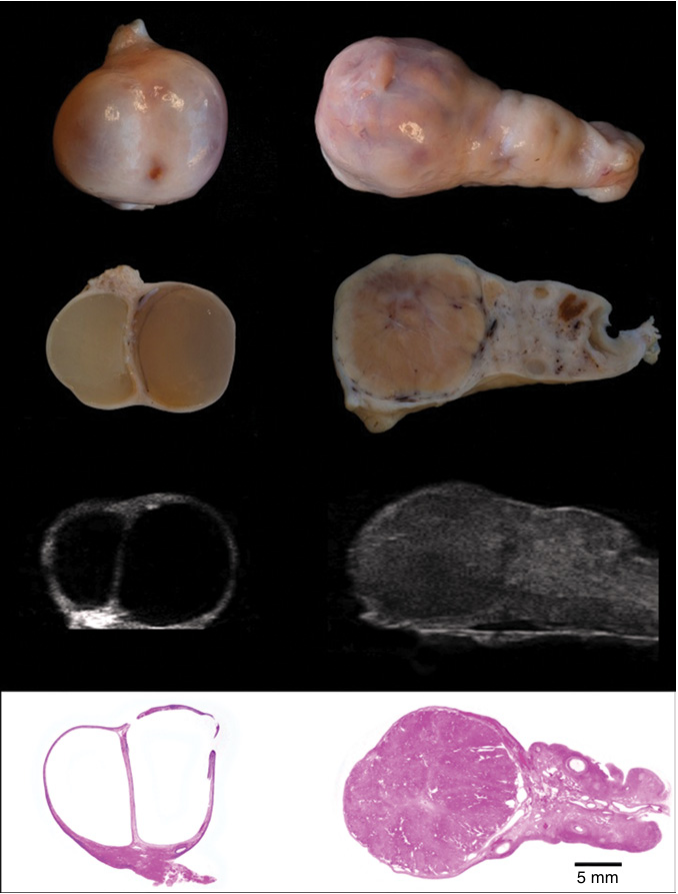
Общая, ультразвуковая и гистологическая морфология зрелого яичника крупного рогатого скота показана на рисунках 24.1 и 24.2. Подобно большинству видов млекопитающих (за исключением лошади), яичник коровы имеет внешнюю кору, содержащую временное желтое тело и тысячи фолликулов на разных стадиях развития, и внутренний мозг, состоящий в основном из соединительной ткани, сосудов, нервов и овариальной сети ( рудиментарные семенные канальцы) .
Примордиальный яичник развивается из удлиненного гонадного валика на вентральной стороне эмбриональной почки (мезонефрос). Последние иммуногистохимические исследования яичников крупного рогатого скота позволяют предположить, что зачаток яичника изначально не имеет отчетливого поверхностного эпителия с базальной мембраной, отделяющей его от основной стромы, а вместо этого состоит из кластера клеток "эпителиоподобного гонадного валика» (GREL-gonadal ridge epithelial-like)1 ( Рисунок 24.3). Клетки GREL, вероятно, развиваются из поверхностного эпителия мезонефроса и являются предшественниками как клеток гранулезы будущих фолликулов, так и поверхностного эпителия будущего яичника.
Первичные зародышевые клетки (ПЗК) мигрируют из желточного мешка/развивающейся задней кишки к дорcальной целомической ( целом - вторичная полость тела зародыша) стенке зародыша через дорсальную брыжейку для колонизации гонадного валика. ПЗК подвергаются массивной митотической пролиферации и смешиваются с резидентными ( постоянными) клетками GREL. Словно пальцами строма («клеточные потоки») из нижележащего мезонефроса проникает в гребень гонады/зачатка яичника и разделяет скопления клеток ПЗК и связанных с ними клеток GREL на половые шнуры ( зачатки фоликулов и яйцеклеток ), которые излучаются из поверхностного эпителия в направлении того, что станет мозговым веществом в основании яичника.2,3 Развивающийся мозг яичника содержит строму, кровеносные сосуды и мезонефрические канальцы, которые сохранятся во взрослом яичнике, как овариальная сеть . Проникающая строма имеет базальную пластинку на своем переднем крае, поэтому зачатки фолликулов и яйцеклеток становятся окруженными базальной пластинкой. По мере развития яичника половые шнуры распадаются на более мелкие группы клеток ПЗК/GREL, что приводит к образованию первичных фолликулов, содержащих ооцит, окруженный сплющенными клетками гранулезы, отделенными от окружающей ткани базальной пластинкой. После формирования первичного фолликула митотическое деление оогония прекращается, он увеличивается и останавливается на ранних стадиях мейоза I. Первые фолликулы образуются близко к мозговому веществу, в то время как внешняя кора все еще содержит более короткие половые шнуры. Постепенно образование фолликулов прогрессирует и распространяется от мозгового слоя к поверхности, что наблюдалось в зародышевых яичниках человека, крупного рогатого скота и овец, а также в послеродовых яичниках крыс (рассмотрено в [1]). На более поздних стадиях развития яичников, когда появляются преантральные и антральные фолликулы, клетки на поверхности яичника становятся однослойными, а строма, лежащая под поверхностью, уплотняется, превращаясь в покровную белочную оболочку.
Фолликулогенез и оогенез
Фолликулогенез - это процесс развития, при котором активированный первичный фолликул развивается до преовуляторного размера за счет роста и дифференцировки ооцита и окружающих его клеток гранулезы.4-6
5 mm
Рисунок 24.1 Левый и правый яичники коровы в проэструсе (сверху вниз: внешний вид поверхности среза, ультразвуковое изображение и гистологический срез, окрашенный гематоксилин-эозином (ГЭ). В левом яичнике видны два крупных смежных антральных фолликула: регрессирующий прежний доминантный фолликул (слева) и преовуляторный доминантный фолликул (справа). В правом яичнике преобладающую область занимает регрессирующее желтое тело. Масштаб 5 мм для всех изображений.
Фолликулы яичника классифицируются по-разному в зависимости от морфологических характеристик, таких как количество гранулезных клеточных слоев, окружающих ооцит, морфологические особенности гранулезных клеток, диаметр ооцита и фолликула, а также отсутствие или присутствие заполненной жидкостью полости, но в целом могут быть классифицированы как примордиальные, первичные, вторичные или третичные (антральные или везикулярные) (Таблица 24.1)7–9
Инициирование роста фолликулов, называемое активацией, начинается с превращения сплющенных прегранулезных клеток примордиального фолликула в один слой кубических гранулезных (фолликулярных) клеток - с этого момента фолликул называется первичным фолликулом.8,10 Пролиферация клеток гранулезы приводит к увеличению количества слоев вокруг ооцита. Фолликул с двумя-шестью слоями клеток гранулезы называется вторичным фолликулом, а фолликул с более чем шестью слоями клеток гранулезы и заполненным жидкостью антрумом (полостью) называется третичным (или антральным) фолликулом.7,8
Диаметр примордиального фолликула составляет около 0,04 мм, а диаметр наименьшего антрального фолликула - 0,25 мм.7 Самый большой антральный или граафов фолликул становится овуляторным фолликулом после преовуляторного выброса гонадотропина8 . У крупного рогатого скота примордиальные, первичные, вторичные и третичные фолликулы впервые появляются в 90, 140, 210 и 250 дни гестации соответственно11 . Время, необходимое для роста фолликула от большой преантральной стадии (вторичного фолликула) до зрелого овуляторного размера, составляет примерно 42 дня7 ( Таблица 24.2 и Рисунок 24.4).
Динамика антрального фолликула
В то время как ранние гистологические исследования дают представление о морфологических изменениях, происходящих во время фолликулогенеза, и общее впечатление о необходимом для этого времени, они не дают понимания повседневной динамики и контроля развития антрального фолликула во время эстрального цикла.
