
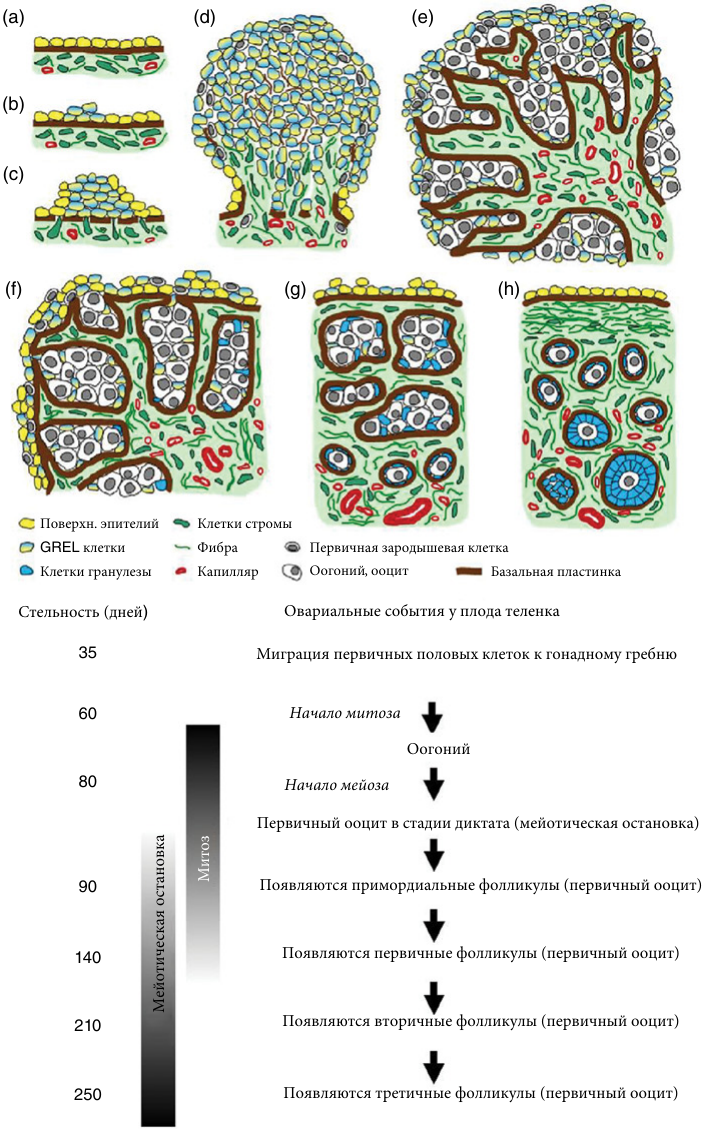
(a) (d) (e)
(b)
(c)
(f) (g) (h)
Поверхн. эпителий Клетки стромы
GREL клетки Фибра Первичная зародышевая клетка
Клетки гранулезы Капилляр Оогоний, ооцит Базальная пластинка
Стельность (дней) Овариальные события у плода теленка
35 Миграция первичных половых клеток к гонадному гребню
60 Начало митоза
Оогоний
80 Начало мейоза
Первичный ооцит в стадии диктата (мейотическая остановка)
90 Появляются примордиальные фолликулы (первичный ооцит)
140 Появляются первичные фолликулы (первичный ооцит)
210 Появляются вторичные фолликулы (первичный ооцит)
250 Появляются третичные фолликулы (первичный ооцит)
Мейотическая остановка Митоз
Рис. 24.3 Модель развития яичников и сборки фолликулов у крупного рогатого скота (Hummitzsch и др.1 ), а также хронология раннего фолликулогенеза и оогенеза. (а) Развитие яичника начинается у мезонефрического поверхностного эпителия (желтого цвета) в месте расположения будущего гонадного валика. (b) Некоторые поверхностные эпителиальные клетки меняют фенотип на эпителиально-подобные клетки гонадного валика (GREL) (желто-синие). (c) Клетки GREL пролиферируют, и базальная пластинка, лежащая в основе поверхностного эпителия, разрушается, позволяя клеткам стромы (зеленого цвета) проникать в гонадный валик. (d) Клетки GREL продолжают пролиферировать, и первичные половые клетки (серые) мигрируют в гонадный валик между клетками GREL. Строма мезонефроса, в том числе сосудистая (красная), продолжает проникать и распространяться в яичнике. (e) Оогонии пролиферируют, и строма проникает дальше к поверхности яичника, тем самым заключая клетки оогоний и GREL в половые шнуры (тяжи). Шнуры окружены базальной пластинкой на стыке со стромой, но открыты со стороны поверхности яичника. (f) Становится очевидным разделение на корковый и мозговой слои. Кора характеризуется чередующимися участками половых шнуров и стромы, тогда как мозговое вещество состоит из стромальных клеток, сосудистой сети и канальцев, происходящих из мезонефроса (rete ovarii - сеть яичника). По мере того, как строма проникает к периферии, клетки GREL на поверхности гонадного валика выравниваются базальной пластинкой на стыке со стромой и начинают дифференцироваться в типичный поверхностный эпителий яичника (желтые клетки). (g) Половые шнуры разделяются на более мелкие и, в конечном счете, на отдельные первичные фолликулы, когда клетки GREL созревают до клеток гранулезы (синие) и окружают оогонии. (h) Наконец, поверхностный эпителий становится в основном однослойным, и из стромы ниже базальной пластинки поверхностного эпителия развивается белочная оболочка - плотно упакованная соединительная ткань. Некоторые примордиальные фолликулы активируются и начинают развитие в первичные и преантральные.
Табица 24.1 Характеристика фолликулов яичника у крс в процессе развития.
| Стадия фолликула | Тип фолликула | ФСГ/ЛГ рецепторы | Гранулезные клеточные слои а | Гранулезные клетки в разрезе а | Диаметр фолликула (мм) | Диаметр ооцита (мкм) | Блестящая оболочка | Тека интерна |
|---|---|---|---|---|---|---|---|---|
| Примордиальный | 1 | 1 | <10 сплющены | <0.04 | 30 | Отсутствует | Отсутствует | |
| Переходный | 1a | Проник в | растущее скопление | (резервуар) и | окружен | смесью сплющенных | и кубических клеток | |
| Первичный | 2 | ФСГr форма (гранулеза) | 1–1.5 | 10–40b кубические | 0.04–0.08 | 31 | Отсутствует | Отсутствует |
| Вторичный | 3 (малый преантральный) | 2–3 | 41–100 | 0.08–0.13 | 50 | Начинает формироваться | Начинает формироваться | |
| 4 (большой преантральный) | ЛГr форма (тека) | 4–6 | 101–250c | 0.13–0.25 | 69 | Частично сформирована | Частично сформирована | |
| 5 (малый | >6 | >250 | 0.25–0.5 | 93 | ||||
| Третичный (антральный) | антральный) Большой антральный Граафов | ЛГr в гранулезе доминантного фолликула | 40 × 106 | 10–15 | 132 | Полностью сформирована |
а Наибольшее поперечное сечение фолликула определяется ядрышком ооцита. b Ооцит начал рост, когда в самом большом поперечном сечении было по меньшей мере 40 гранулезных клеток (четвертое поколение фолликулярных клеток). c Начало формирования полости наблюдалось в фолликулах с, по меньшей мере, 250 клетками гранулезы в наибольшем поперечном сечении. Источник: адаптировано из Lussier et al., 7 Braw-Tal и Yossefi, 8 и Xu et al.103
Таблица 24.2 Скорость развития фолликулов в яичниках крс
| Диапазон размеров фолликула (мм) | Генерация клеток гранулезы | Продолжительность размерной Часов | каждой категории Дней | Процент атрезии | Митотическая активность |
|---|---|---|---|---|---|
| 0.13–0.28 | 6 | 365 | 15.1 | 1.6 | |
| 0.29–0.67 | 8 | 285 | 11.9 | 6.6 | |
| 0.68–1.52 | 10 | 100 | 4.2 | 40.5 | Максимальная |
| 1.53–3.67 | 11 | 83 | 3.5 | 30 | |
| 3.68–8.57 | 12 | 186 | 7.8 | 67.4 | |
| >8.57 | 13 | 60 | |||
| Итого | 1019 | 42.5 |
Источник: адаптировано из Lussier и др.7 и Fortune184
Однако, с появлением ультрасонографии в конце 1980-х годов барьер в понимании нами динамики процесса развития фолликулов был внезапно устранен. Методика обнаружения и мониторинга структур яичников с помощью трансректального УЗИ была впервые описана в 1984 году. Сравнение результатов УЗИ со срезом иссеченных яичников утвердило ультразвуковой метод в качестве инструмента для обнаружения фолликулов диаметром более 2 мм и мониторинга желтого тела.20,21 Последующие исследования с использованием ультразвуковой визуализации для мониторинга популяций фолликулов разных размерных категорий2 или для мониторинга индивидуально идентифицированных фолликулов23–26 убедительно доказали, что рост фолликулов у крупного рогатого скота происходит волнообразно и что большинство эстральных циклов у крупного рогатого скота составляют две или три такие волны. Метод, с помощью которого отдельные фолликулы могут контролироваться в течение одного интеровуляторного интервала с помощью ультрасонографии, показан на рисунке 24.6.
Во время ежедневных осмотров делается эскиз каждого яичника для записи количества, диаметра и относительного положения фолликулов и желтого тела.
Несмотря на то, что яичники достаточно подвижны в области брыжеечного края, их положение остается на удивление постоянным от одного исследования к другому, что позволяет точно «картографировать» структуры яичника с течением времени. Результаты ультразвуковых исследований согласуются с теми, в которых были предположены три волны роста фолликулов27 на основании наличия одного «эстрогенно-активного» фолликула в течение трех различных периодов эстрального цикла28,29 и увеличения эстрадиола в маточно-яичниковых венах в течение примерно тех же периодов времени.30
Фолликулярные волны во время эстрального
цикла
Появление фолликулярной волны у крупного рогатого скота характеризуется внезапным (в течение 2–3 дней) ростом 8–41 мелких фолликулов, которые впервые обнаруживаются с помощью УЗИ при диаметре 3–4 мм (рис. 24.6 и 24.7).20,25,26,31,32 Скорость роста у фолликулов волны примерно одинаковая в течение около 2 дней, после чего один фолликул отбирается для продолжения роста (доминантный фолликул), в то время как остальные становятся атретичными и регрессируют (подчиненные или второстепенные фолликулы).
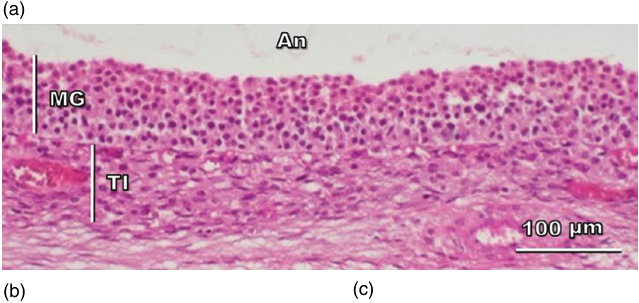
(a)
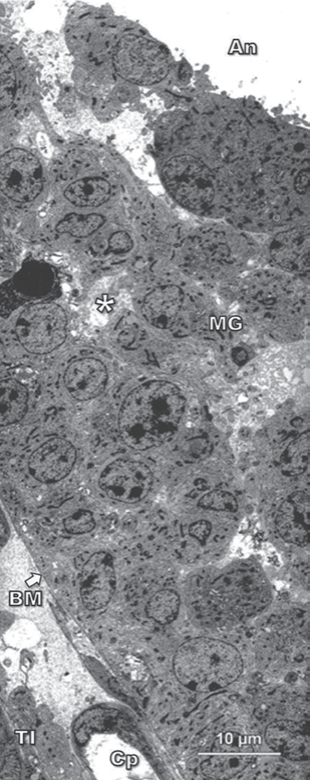
(b) (c)
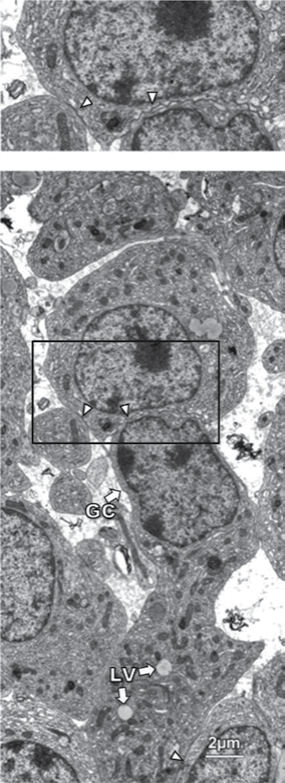
Как в двух-, так и в трехволновом эстральном цикле появление первой фолликулярной волны происходит в день овуляции (день 0). Появление второй волны происходит на 9 или 10 день для двухволновых циклов и на 8 или 9 день для трехволновых циклов. В трехволновых циклах третья волна появляется на 15 или 16 день. Под влиянием прогестерона (например, диэструс, беременность) доминирующие фолликулы последовательных волн являются ановуляторными и подвергаются атрезии.33
Доминантный фолликул, присутствующий в начале лютеолиза становится овуляторным фолликулом, и появление следующей волны откладывается до дня его овуляции. В двухволновых циклах желтое тело начинает регрессировать раньше (день 16), чем в трехволновых циклах (день 19), что приводит к более короткому эстральному циклу (20 дней против 23 дней соответственно). Следовательно, общеизвестный 21дневный эстральный цикл у крупного рогатого скота существует только как среднее между двух- и трехволновым циклами.
