
Карункул
1400 120 0.25
100
1200 0.20
80
1000 0.15
60
800 0.10
40
600 0.05
20
Плотность капиллярной области
Распределение плотности капилляров
400 Поверхностная плотность капилляров 22 0.00
Котиледон Размер капилляра
20
600 0.05
18
550
0.04
16
500
14
0.03
450
12
0.02
400 10
8 0.01
350
6
300 0.00
125 250
День гестации
Распределение плотности капилляров
2Плотность капиллярной области или размер капилляра мкм, Поверхностная плотность капилляров
Распределение плотности капилляров
Поверхностная плотность капилляров
2Плотность капиллярной области или размер капилляра мкм,
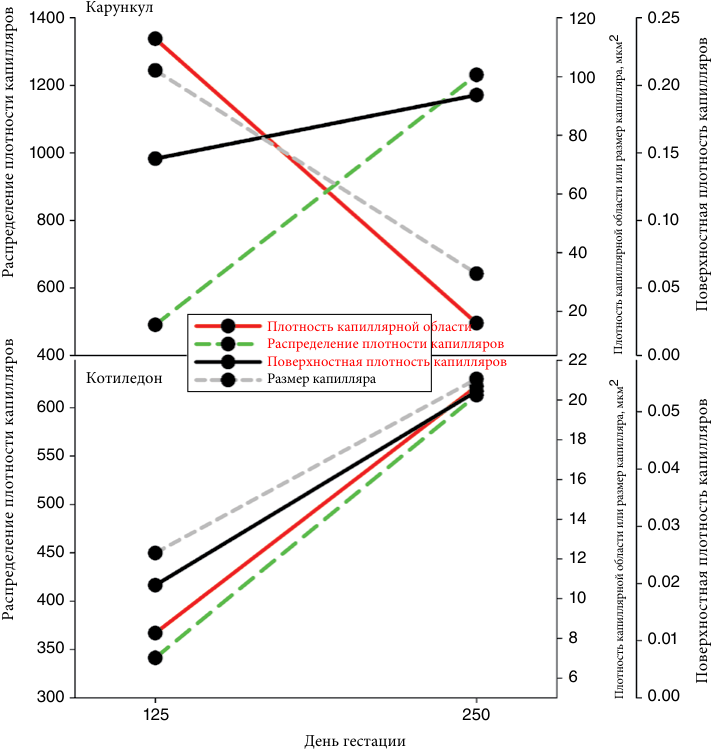
Рис. 25.1 Распределение капиллярной плотности, плотность области, поверхностная плотность и размер в материнской (карункулярной) и эмбриональной (котиледонной) частях бычьего плацентома от середины (день 125) до поздней (день 250) стельности.
Взаимодействие факторов, влияющих на маточно-плацентарный кровоток, напрямую повлияет на эффективность плаценты и, следовательно, на рост плода. Однако, несмотря на интенсивные исследования в области плацентарно-плодных взаимодействий, регуляторы плацентарного роста и васкуляризации, а также маточноплацентарный кровоток все еще в значительной степени неизвестны, особенно у крупного рогатого скота.
Данные о развитии бычьего плацентомного капиллярного русла весьма ограничены. У коровы рост котиледонов постепенно усиливается на протяжении всей беременности.33,34 Гистологический анализ развития капиллярного русла у коровы проводился во время средней и поздней беременности.34 С середины до поздней беременности плотность капиллярной области, показатель, связанный с кровотоком, уменьшается примерно на 30% в тканях карункула, в то время как в котиледонных тканях увеличивается примерно на 186% (рис. 25.1). За это время количество капилляров увеличивается на 150% и 80% в ткани карункула и котиледона соответственно. С середины до поздней стадии гестации поверхностная плотность капилляров, показатель, связанный с обменом питательных веществ, также увеличивается как в карункулярной, так и в котиледонной тканях (32% и 172% соответственно), в то время как размер капилляров уменьшается на 67% в тканях карункула, но увеличивается на 71% в котиледонных тканях (рисунок 25.1). Характер развития капилляров очень сильно различается между материнской и плодной частями плацентома, возможно, из-за энергетических потребностей этих независимых тканей, которые выполняют сходную функцию - доставку питательных веществ развивающемуся теленку.
Очевидно, что плацента играет фундаментальную роль в обеспечении метаболических потребностей плода. Хотя рост плаценты замедляется в течение последней половины беременности, ее функция резко возрастает, что поддерживает экспоненциальную скорость роста плода.35,36 Например, у овец и крупного рогатого скота маточный кровоток увеличивается примерно в три-четыре раза в период от средней до поздней стадии гестации27,37,38 (см. ниже). Взаимосвязь между маточноплацентарным кровотоком и размером концепта в течение всего периода беременности будет дополнительно рассмотрена в следующем разделе.
Материнская сердечно-сосудистая функция
Во время беременности физиологическое состояние матки связано со значительными, но обратимыми изменениями метаболической потребности, а также изменениями в эндокринной и сердечно-сосудистой системах. Как упоминалось ранее, во время ранней беременности (например, при материнском распознавании беременности и удлинении концепта) эндокринная секреция яичника и концепта помогает установить здоровую беременность. Кроме того, эти секреты служат биохимическим перекрестным соединением между материнским эндометрием и плодными оболочками плаценты во время средней и поздней гестации и помогают обеспечить надлежащий обмен веществ во время экспоненциального роста плода.
Функциональные возможности сердечно-сосудистой системы у матери резко меняются во время беременности, вследствие чего снижается системное артериальное давление и сосудистое сопротивление, а также сердечный выброс, частота сердечных сокращений, ударный объем и объем крови.39 Хотя не все эти переменные были определены во время беременности у крупного рогатого скота, у некоторых видов млекопитающих, включая овец, наблюдалось снижение среднего артериального давления на ранних сроках, которое сохраняется на протяжении всей беременности. Более того, снижение артериального давления (оценивается как 5–10%) незначительно по сравнению с приблизительно 20–30% снижением общего периферического сосудистого сопротивления. Показано, что у беременных жвачных животных материнский сердечный выброс возрастает на 30–40% по сравнению с небеременными. Следовательно, увеличение сердечного выброса связано с резким падением системного сосудистого сопротивления, что позволяет исследователям охарактеризовать беременность как состояние системной вазодилатации ( релаксации гладкой мускулатуры в стенках кровеносных сосудов) , приводящее к глубокому увеличению общих системных потоков во всех сосудистых руслах. Большинство этих исследований характеризуют эту взаимосвязь уравнением:
Системное сосудистое сопротивление =Среднее артериальное давление Сердечный выброс
Используя это уравнение, мы можем видеть, что снижение системного сосудистого сопротивления во время беременности и увеличение сердечного выброса ( минутный объем крови ) помогают поддерживать артериальное давление. Кроме того, помимо этой взаимосвязи, увеличение объема крови и активация системы ренинангиотензин могут также способствовать поддержанию артериального давления во время этого физиологического состояния выраженной вазодилатации; однако по крупному рогатому скоту существуют лишь ограниченные данные. Чтобы определить конкретный вклад в увеличение сердечного выброса, возникающее во время беременности, мы должны сначала изучить его уравнение, в котором говорится, что сердечный выброс = частота сердечных сокращений × ударный объем, где ударный ( систолический) объем равен объему крови, выбрасываемому из одного желудочка сердца с каждым ударом. У большинства видов млекопитающих частота сердечных сокращений увеличивается примерно на 15% во время беременности, что не полностью объясняет увеличение сердечного выброса на 30–40%. Следовательно, ударный объем может увеличиваться на 30–35% во время беременности и является одним из основных факторов, способствующих увеличению сердечного выброса. Исследователи показали, что у овец, получавших длительную терапию эстрогеном, увеличение размеров левого желудочка сердца и его эктазия ( расширение) вызваны беременностью; поэтому изменения в эндокринной системе во время беременности могут помочь опосредовать временные изменения сердечно-сосудистой функции матери.39
Увеличение сердечного выброса матери во время беременности также связано с увеличением плазмы и объема крови у коров40 . Это увеличение объема крови варьирует между видами и также будет зависеть от состояния питания матки, и от того, одноплодная беременность или двуплодная. В период беременности у крупного рогатого скота объем крови увеличивается только на 10–20% во время стельности, в то время как у многоплодных видов объем крови может увеличиваться на 30–50%.
С увеличением объема плазмы матка должна поддерживать надлежащий баланс содержания воды и электролитов; поэтому, подобно изменениям материнского артериального давления, это увеличение объема плазмы объединится с системой ренин-ангиотензин, которая может служить дополнительной целью в качестве внешнего модулятора функции почек и секреции мочи. Помимо сильных изменений в материнской сердечнососудистой системе во время беременности, еще более примечательно то, что большинство млекопитающих вернутся к небеременным уровням сердечно-сосудистой функции в течение 2–5 недель после родов. Хотя лактирующий, высокопродуктивный, нестельный молочный скот будет демонстрировать существенное увеличение сердечного выброса по сравнению с его нестельными нелактирующими аналогами, это перераспределение кровотока в течение транзитного периода от маточно-плацентарной сосудистой сети к молочной железе все еще является феноменальным физиологическим подвигом, позволяющим выйти на пик лактации вскоре после родов.
Материнское распределение питательных веществ и эндокринология
Взаимодействие между материнской эндокринной системой и концептом жизненно важно для обеспечения непрерывного развития плода и обеспечения здорового приплода, пригодного для жизни вне матки. Одним из примеров такого взаимодействия является способность бычьего концепта стимулировать рост и развитие молочных желез во время беременности. Это контролируемое запрограммированное развитие молочной железы позволяет синхронизировать выработку и секрецию молока с рождением зрелого теленка.41 Гормональная продукция концепта может действовать паракринно, стимулируя его собственный рост; однако, эта гормональная продукция может также взаимодействовать с материнской эндокринной системой и регулировать рост, развитие и лактогенез молочных желез. Уровень секреции бычьего плацентарного лактогена выходит на пик примерно через 160–200 дней беременности, а затем остается высоким до конца срока. Молочные коровы имеют повышенную концентрацию бычьего плацентарного лактогена по сравнению с мясными коровами; кроме того, в пределах субпопуляции молочных коров наблюдалась значительная положительная связь между концентрациями плацентарного лактогена во время беременности и последующим надоем. Кроме того, выработка эстрона, конъюгированного сульфата эстрона и эстрадиола возрастает между 70 и 110 днями беременности. Это увеличение уровня эстрогенов должно позволить увеличить экспозицию ( длительность воздействия ) эстрогенной активности на ткани матери; однако значительная конъюгация ( соединение, сопряжение) эстрогена с маткой и концептом до переноса в периферическое кровообращение уменьшит экспозицию на ткани матери. Это увеличение продукции должно соответствовать увеличению активности ароматазы, а также сульфотрансфераз эстрогена, генерирующих метаболит сульфата эстрона с низкой биологической активностью, но с более длительным периферическим периодом полураспада. Тем не менее, независимо от пониженной биологической активности конъюгированных эстрогенов, концентрация общего эстрогена (конъюгированного и неконъюгированного) сильно коррелирует с массой тела при рождении и последующими темпами роста до отъема у телят, что может быть связано с последующей выработкой маточного молочка. Помимо этих связей между выработкой гормонов концептом и последующей выработкой молочка в матке, попрежнему важно отметить, что некоторые гормоны беременности (прогестерон, эстрогены и плацентарные лактогены) регулируют количество клеток и васкуляризацию молочной железы.
Регулирование распределения питательных веществ во время беременности - это организованное событие, помогающее поддерживать метаболизм тканей организма, необходимый для поддержания физиологического состояния.42 У молочных коров беременность влечет за собой значительные расходы для животного, так что уровень питания в конце беременности составляет примерно на 75% больше, чем у небеременной коровы того же веса.42 После 7 месяцев беременности плод приобретет приблизительно 40% своего веса при рождении, в то время как в течение последних 2 месяцев беременности потребности плода в глюкозе и аминокислотах равны количеству питательных веществ из молочной железы, эквивалентных примерно 5 кг молока в день.42 Таким образом, у молочных коров " высыхание" вымени примерно за 60 дней до ожидаемого отела помогает ослабить конкуренцию между использованием питательных веществ для лактации и основной фазы роста плода. Имеется ограниченная информация о конкретных потребностях в питании плода крупного рогатого скота по сравнению с обширными исследованиями, проведенными на плоде овец. Валовое поглощение углерода плодом овцы составляет приблизительно 8 г/день на килограмм веса плода, из которых удерживается 40%, а остальная часть переносится обратно в матку в виде либо углекислого газ либо углерода мочевины. Помимо глюкозы, большую часть метаболического топлива обеспечивают аминокислоты, по оценкам, валовая скорость аккреции (прироста) азота составляет 0,65 г азота на килограмм плода в день, что превышает?? среднее усвоение плодом 1,5 г азота на килограмм плода в день. Как упоминалось ранее, при выделении углерода с мочой почти 0,3 г азота на килограмм плода выводится в виде мочевины за сутки, что указывает на катаболизм (распад веществ, их окисление и выведение из организма продуктов распада) аминокислот, предположительно, через глюконеогенные связи плода и плаценты. Важно отметить, что приток питательных субстратов для удовлетворения потребностей в окислительном метаболизме плода также используется для анаболизма (синтезом необходимых веществ, их усвоением и использованием для роста, развития и жизнедеятельности организма ) плода, и было высказано предположение, что конкретная судьба питательного субстрата (катаболизм против анаболизма) контролируется плодом автономно. Это привело к тому, что некоторые исследователи предложили, чтобы плод не рассматривался как «пассажир», а скорее имел некоторое самообладание или самостоятельность в своей судьбе. Это становится более очевидным, когда мы исследуем некоторые изменения в зародыше и плаценте, которые позволяют плоду адаптироваться к конкретным воздействиям окружающей среды, нанесенным матке.
Эмбриогенез, рост плода, и развитие органов
Эмбриональный период у крупного рогатого скота определяется как время от зачатия (то есть одноклеточного эмбриона, называемого зиготой) до завершения органогенеза. Этот период обычно длится от 1 до 42 дня беременности, и наибольший процент потери беременности происходит в эмбриональном периоде. Плодный период определяется как остаток беременности от 42 дня до 280 дня, когда происходит завершение дифференцировки органов (рис. 25.2).
Эмбриогенез
Во время раннего эмбриогенеза и до прикрепления концепта становится очевидной дифференциация слоев зародышевых клеток. Три слоя зародышевых клеток называются энтодерма, мезодерма и эктодерма. Эндодерма, самый внутренний слой, будет дифференцироваться в пищеварительный тракт, за исключением части рта и терминальной ( концевой ) части прямой кишки, которые выстланы защитными впячиваниями эктодермы.
Кроме того, из энтодермы будут развиваться дыхательные пути (трахея, бронхи и альвеолы легких), большинство эндокринных желез и мочевыделительная система. Эктодерма является самым наружным зародышевым клеточным слоем и даст начало нервной и покровной системам. Средний слой зародышевых клеток, мезодерма, создаст сердечную, скелетную и гладкую мускулатуру, систему кровообращения, а также большую часть репродуктивного тракта, исключая внешние части половых органов, которые развиваются из эктодермы.
Во время эмбриогенеза инвагинация эктодермы рта в направлении нервного эпителия приводит к образованию дивертикула, называемого карманом Ратке. В процессе формирования этот дивертикул потеряет контакт с эктодермой полости рта, образуя переднюю долю гипофиза. Эту переднюю долю иногда называют аденогипофизом, потому что он образован железистой тканью. Образование кармана Ратке во время раннего эмбриогенеза крупного рогатого скота характеризуют немногие исследования, однако, распространенное заболевание, известное как остаточная расщелина кисты гипофиза, было недавно исследовано у крс с использованием посмертной магнитно-резонансной томографии.43 Остаточная расщелина кисты гипофиза наблюдалась у 26–35% забитых коров, и в ней обнаружилось несколько морфологических сходств с человеческим заболеванием, известным как расщелина кисты Ратке. Эти структурные аномалии гипофиза могут допускать постепенное накопление эндокринной секреции с течением времени, при этом крупный рогатый скот голштинской породы может подвергаться большему риску развития заполненных жидкостью поражений ( кисты яичников) по сравнению с другими породами. Скорее всего, эти остаточные кисты гипофиза образуются на ранних стадиях эмбриогенеза и раннего формирования кармана Ратке; однако патологические состояния и/или продуктивность не были связаны с появлением или относительным размером кист гипофиза у крупного рогатого скота.43
Половая дифференциация и фримартинизм
Ни одна другая система органов в области органогенеза бычьего плода не привлекла бы столько внимания, как развитие репродуктивного тракта. С точки зрения половой дифференциации, генетический пол потомка устанавливается во время оплодотворения, когда сперматозоид доставляет либо хромосому X (женского пола), либо Y (мужского пола) в гомогаметный ооцит. У крупного рогатого скота после нескольких недель эмбриогенеза начнется процесс половой дифференциации. Один из первых этапов дифференциации гонадного пола включает миграцию, пролиферацию и инвазию первичных половых клеток. В настоящее время принято считать, что первые примордиальные половые клетки также представляют собой гемопоэтические стволовые клетки, происходящие из стенки аллантоиса, также как желточный мешок мезодермы.44 Кроме того, гематопоэтические стволовые клетки также происходят из других частей мезодермы и более поздние полученные данные свидетельствуют о том, что конечные пролиферативные примордиальные зародышевых клетки гонад берут свое начало исключительно в области аорта-гонада-мезодермы, тогда как короткоживущие гемопоэтические стволовые клетки желточного мешка обладают ограниченной способностью к дифференцировке. Важно отметить общее происхождение гемопоэтических стволовых клеток (недифференцированных клеток крови) и первичных половых клеток (недифференцированных гамет). Очевидные различия между этими типами клеток у взрослых могут быть связаны с наличием окружающих интерстициальных и стромальных клеток гонады, которые помогают дополнительно дифференцировать эти ранние гемопоэтические стволовые клетки в половые.
