

(a)
(b)
39.4°C
39
38
37
R01
36
35
R02
34
R03
33
32.2°C
(c)
| Температура [°C] | Мин. | Макс. | Макс.–мин. | Среднее | Стандартное отклонение |
|---|---|---|---|---|---|
| R01 | 37.7 | 39.1 | 1.4 | 38.6 | 0.3 |
| R02 | 35.5 | 36.9 | 1.4 | 36.1 | 0.3 |
| R03 | 34.0 | 35.5 | 1.5 | 34.7 | 0.4 |
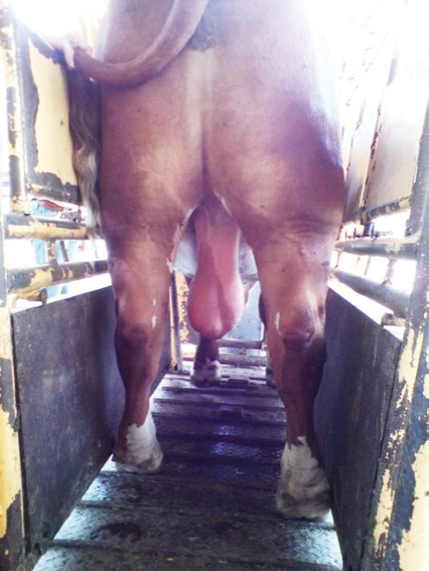
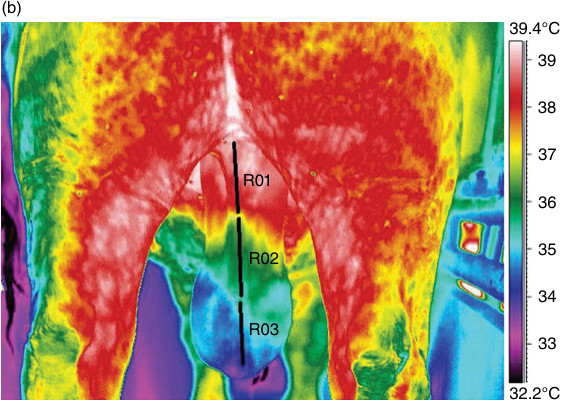
Рисунок 2.1 Изображения семенников 2-летнего быка герефордской породы в видимом свете и в тепловом диапазоне. Снимки были сделаны 25 июня 2013 года в полдень с помощью тепловизора FLIR SC600 (FLIR Systems Sweden, AB) при температуре воздуха 29°C и влажности 75%. (a) Изображение семенников в видимом свете. (b) Тепловое изображение семенников, показанных на снимке (a), с выделением трёх областей интереса (RO1, RO2 и RO3). Вертикальные полосы указывают линии, вдоль которых с помощью программы ThermaCAM Research Pro 2.7 были получены значения температуры. Для наглядного отображения изменения температуры от шейки мошонки до её нижнего конца использованы условные цвета и температурная шкала. (c) Температурные показатели для каждой области интереса (RO): минимальная (Min), максимальная (Max) и средняя (Avg) температура, разница между Min и Max, а также стандартное отклонение (st dev), характеризующее колебания температуры в каждой области. Обратите внимание, что средняя температура от RO1 до RO3 изменяется почти на 4°C.
с участием ряда местных механизмов, направленных на поддержание в семенниках условий внешней и внутренней среды, благоприятных для нормального сперматогенеза. Дополнительные сведения о терморегуляции семенников быка читатель найдёт в обзоре Kastelic и соавт. .23 и в главе 3 настоящей книги.
Интерстициальная ткань (клетки Лейдига)
Немецкий зоолог Франц Лейдиг впервые описал интерстициальные клетки семенников в 1850 году; с тех пор они известны как клетки Лейдига. Эти клетки находятся в интерстициальной ткани семенника — сети рыхлой соединительной ткани, заполняющей промежутки между семенными канальцами и кровеносными сосудами. В семенниках млекопитающих клетки Лейдига преимущественно образуют скопления в угловых промежутках между семенными канальцами и тесно прилегают к
стенкам мелких артериол.8,24 Содержание клеток Лейдига в семенниках различается у разных видов. Считается, что эти клетки служат основным источником андрогенов в семеннике. У быков развитие клеток Лейдига путём преобразования мезенхимальных клеток-предшественников, по наблюдениям, непрерывно продолжается после наступления половой зрелости на протяжении всей жизни.25 Christensen26 приводит подробный и интересный обзор истории изучения клеток Лейдига — от их описания Лейдигом в 1850-е годы до подтверждения в середине -1960-х годов того, что именно эти клетки в основном отвечают за синтез и секрецию андрогенов в семенниках. Многочисленные данные свидетельствуют о том, что клетки Лейдига у плодов на ранних стадиях развития обладают стероидогенной активностью у некоторых видов млекопитающих, в том числе у свиней27 и овец.28
Клетки Лейдига у большинства изученных видов млекопитающих в целом сходны, хотя несколько различаются по внешнему виду, размерам и расположению их скоплений относительно лимфатических или кровеносных сосудов интерстициальной ткани. Имеются некоторые различия в
степени развития цитоплазматических структур, однако на ультраструктурном уровне клетки Лейдига в целом обнаруживают значительное сходство.8 Fawcett и соавт. .29 подробно описали морфологию интерстициальной ткани у нескольких видов млекопитающих и выделили три группы на основании количества клеток Лейдига и соотношения объёмов межканальцевых лимфатических структур и соединительной ткани. К первой группе относятся морская свинка и грызуны (крыса, мышь). У этих видов клетки Лейдига занимают лишь 1–5% объёма семенников; например, у крысы — 2.8%.30 Ко второй группе относятся бык, обезьяна, слон и человек. У этих видов соединительная ткань интерстиция очень рыхлая, клетки Лейдига рассеяны по всему интерстицию и тесно связаны с хорошо развитой лимфатической системой. Клетки Лейдига занимают лишь небольшую часть объёма семенников (~15%).8 К третьей группе относятся домашний хряк и жеребец. У этих животных обильная интерстициальная ткань плотно заполнена клетками Лейдига (20–60% объёма семенников).31 Причина высокой плотности клеток Лейдига у этих видов неизвестна, однако Parkes10 и Fawcett и соавт. .29 связывали это явление с выработкой больших количеств эстрогенов у хряка и жеребца, а также с секрецией семенниками хряка больших количеств 16-андростенов с мускусным запахом.32 За более подробным обсуждением цитологии клеток Лейдига читатель может обратиться к превосходной главе de Kretser и Kerr.33
Эндокринная функция семенника
Гипоталамо-гипофизарная гормональная регуляция семенника
Действие гормонов зависит от их выделения соответствующей эндокринной железой и переноса по кровеносной системе к ткани-мишени, где гормон связывается с клеточными рецепторами, вызывая физиологическую реакцию. В некоторых случаях эти рецепторы обладают высокой специфичностью к определённому гормону. Реакция ткани-мишени может зависеть от уровня экспрессии рецепторов и концентрации гормона. Некоторые гормоны регулируют собственные рецепторы, действие других требует синергизма двух гормонов, а рецепторы третьих могут регулироваться иными гормонами.34 Общие особенности нейроэндокринной регуляции семенника млекопитающих гипоталамо-гипофизарной системой хорошо изучены,35 однако у некоторых видов эта регуляция может меняться в зависимости от сезона. Домашний крупный рогатый скот считается видом с круглогодичным, а не сезонным размножением.36 Тем не менее в литературе имеются сведения о том, что у домашних быков мясных и молочных пород гипоталамо-гипофизарно-гонадная система функционирует с сезонными изменениями, которые могут влиять на выработку гонадных стероидов и половых клеток. В исследовании взрослых быков сложных помесных пород Stumpf и соавт. .37 установили, что время года влияло на профиль циркулирующих гонадотропинов как у кастрированных, так и у интактных самцов, причём наибольшая секреция гонадотропинов приходилась на весеннее равноденствие. Кроме того, эти авторы обнаружили, что время года влияло и на секрецию тестостерона у интактных самцов, но в ответ на LH больше тестостерона выделялось в период летнего солнцестояния. Другие исследователи сообщали о сходных эффектах: местонахождение влияло на репродуктивные показатели быков, включая качество спермы и концентрации LH и тестостерона в крови.38,39
Кроме того, было установлено, что чувствительность быков к введению экзогенного гонадотропина и их секреция тестостерона зависят от сезона.40
Гормональная регуляция функции семенников зависит от совместного действия на клетки Лейдига гонадотропинов, таких как LH, фолликулостимулирующий гормон (FSH) и пролактин, а также стероидов (андрогенов и эстрогенов).41Гонадотропин-рилизинг-гормон — основной гормон гипоталамуса, регулирующий синтез и выделение гонадотропинов LH и FSH передней долей гипофиза. LH главным образом отвечает за выработку тестостерона клетками Лейдига, тогда как FSH способствует размножению клеток Сертоли и поддержанию половых клеток. Хотя стимулирующее действие гонадотропинов на функцию семенников было надёжно установлено, основные механизмы и участки их действия в семеннике удалось определить лишь в 1970-е годы. Было показано, что LH необходим для поддержания выработки тестостерона в семенниках.41,42 Catt и Dufau43 рассмотрели механизмы действия гонадотропинов и пришли к выводу, что все они вызывают ответ клеток-мишеней сходным образом. При этом именно LH играет важнейшую роль в физиологической регуляции выработки андрогенов клетками Лейдига в семеннике.44,45
Клетки Лейдига содержат рецепторы, расположенные на плазматической мембране и специфически связывающие LH. Связывание LH стимулирует аденилатциклазу к образованию циклического аденозинмонофосфата (циклического АМФ) — вторичного посредника в цитоплазме клетки. Он, в свою очередь, активирует циклическую АМФ-зависимую протеинкиназу, усиливая превращение холестерина в прегненолон. Действие LH легко продемонстрировать как у самцов после удаления гипофиза, так и у интактных самцов. После удаления гипофиза быстро прекращается выработка тестостерона, исчезают ферменты, участвующие в стероидогенезе, и развивается атрофия семенников.46 Прямых доказательств участия FSH в стероидогенезе клеток Лейдига немного, однако некоторые данные указывают на то, что этот гонадотропин может участвовать в превращении андрогенов в эстрогены в клетках Сертоли.47 Bartke и соавт. .42 предположили, что FSH может воздействовать на ферментную систему ароматизации при биосинтезе тестостерона, однако свидетельств его влияния на другие этапы стероидогенеза в семеннике мало. У быков секреция тестостерона не является постоянной: для неё характерны периодические выбросы, определяемые выделением гипоталамусом рилизинг-гормона лютеинизирующего гормона (LHRH), а передней долей гипофиза — LH.48 Schanbacher48 сообщает о временно́й связи между концентрациями LH и тестостерона в крови и о наличии данных, свидетельствующих о том, что периодическая секреция зависит от отдельных выбросов LHRH из гипоталамуса.
Пролактин
Известно, что пролактин (PRL) усиливает влияние LH на сперматогенез. Физиологическое значение PRL в регуляции функции клеток Лейдига впервые было установлено с использованием трёх животных моделей:41,42 золотистого хомячка, у которого сокращение светового дня может вызвать регрессию семенников; мышей после удаления гипофиза; а также мышей с наследственной карликовостью, врождённым дефицитом PRL и бесплодием. Во всех трёх моделях отмечаются пониженные концентрации PRL
и тестостерона в плазме крови и наблюдается атрофия семенников. Напротив, введение PRL стимулирует сперматогенез у мышей с карликовостью и восстанавливает функцию семенников у золотистых хомячков; у животных после удаления гипофиза PRL в присутствии LH вызывает сперматогенез и восстанавливает концентрацию тестостерона в плазме крови. У мужчин PRL играет важную роль в регуляции выработки тестостерона и репродуктивной функции.49 При очень высоких концентрациях (гиперпролактинемии) PRL оказывает у мужчин антигонадное действие, угнетая функцию семенников, и связан с гипогонадизмом.50
Другие регуляторные факторы
Влияние других регуляторных факторов, таких как гормон роста (GH), на стероидогенез в семенниках изучено не до конца. Однако ввиду структурного сходства PRL и GH предполагается, что оба гормона могут оказывать сопоставимое влияние на функцию клеток Лейдига.42 Влияние GH может быть более значительным в период полового созревания (см. главу 4). Вместе с тем известно, что введение гонадных стероидов интактным животным снижает выработку андрогенов. Этот эффект связывают с угнетением секреции гонадотропинов, которое вторично влияет на эндокринную функцию семенников. В интерстициальной ткани семенника также обнаружены рецепторы эстрогенов. Поскольку снижение уровня тестостерона не сопровождается соответствующим изменением концентрации LH в плазме крови, некоторые авторы предполагают, что эстрогены могут непосредственно угнетать функцию клеток Лейдига.51, 52 Отмечено также влияние кортикостероидов на функцию клеток Лейдига. У хряков, которым вводили адренокортикотропный гормон (ACTH), одновременно с усилением секреции кортикостероидов надпочечниками возрастала выработка тестостерона в семенниках.53 После однократного введения ACTH у хряков сначала наблюдали кратковременное повышение концентраций как кортикостероидов, так и тестостерона в периферической крови, тогда как после длительного введения концентрация тестостерона снижалась.54 Эти авторы заключили, что продолжительное воздействие стрессовых факторов может вызывать хроническое повышение уровня ACTH, тем самым подавляя выработку тестостерона и снижая половую активность.
Анализируя литературу, Tilbrook и соавт. .55 установили, что влияние стресса на размножение сложно и изучено не полностью, однако в этом процессе могут участвовать различные эндокринные, паракринные и нервные системы. Значение вызванной стрессом секреции кортизола различается у разных видов. В некоторых случаях кратковременное повышение концентрации кортизола, по-видимому, почти не влияет на размножение, а для проявления неблагоприятного эффекта требуется длительное повышение его концентрации в плазме крови. В обстоятельном обзоре Моберг56 описывает влияние системы гипоталамус — гипофиз — надпочечники на функцию половых желез у млекопитающих. Впоследствии тот же автор опубликовал подробный обзор57 влияния поведения на репродуктивные показатели домашних животных, уделив особое внимание тому, как методы интенсивного животноводства могут способствовать вызванным стрессом нарушениям нормальной репродуктивной функции. Однако основное внимание уделялось исследованиям влияния вызванного стрессом высвобождения ACTH у самок.
Повышение уровня ACTH в плазме крови усиливает синтез кортикостероидов в надпочечниках и при хроническом воздействии может подавлять выработку гонадотропин-рилизинг-гормона и гонадотропных
гормонов, тем самым снижая высвобождение гонадотропина LH гипофизом и нарушая нормальную функцию яичников у самок. Тем не менее исследования показали, что вызванное стрессом повышение уровня ACTH действует на самцов сходным образом на физиологическом уровне, влияя на гонадотропную регуляцию функции семенников. Липтрап и Рейсайд58 изучали влияние кортизола на гонадотропин-рилизинг-гормон у хряков, тогда как Маттери и соавт. .59 обнаружили, что стресс или однократное введение ACTH подавляет вызванное гонадотропин-рилизинг-гормоном высвобождение LH у баранов. У быков голштинской породы, получивших болюсную дозу ACTH (0.45 IU/kg), отрицательного влияния на концентрации LH или FSH в плазме крови, по-видимому, не наблюдалось, однако концентрация тестостерона в плазме снижалась.60 Введение ACTH в фармакологических дозах (200 IU каждые 8 часов) в течение 6 дней приводило к снижению уровня тестостерона в плазме крови у годовалых и взрослых быков соответственно через 8 часов и 4 дней после начала введения препарата. В обеих возрастных группах это снижение сохранялось ещё 24 часов после последней инъекции ACTH.61 Хотя длительное введение ACTH, сопровождавшееся выраженным повышением уровня глюкокортикоидов и снижением уровня тестостерона, не повлияло на жизнеспособность сперматозоидов, их концентрацию и общее количество в эякуляте, наблюдалось небольшое увеличение доли незрелых сперматозоидов или сперматозоидов с аномальными головками.61 Таким образом, при длительном стрессе подавление секреции гонадотропинов более вероятно, что приводит к угнетению репродуктивной функции. Кроме того, исследования показали, что при определённых обстоятельствах глюкокортикоиды могут подавлять секрецию гонадотропинов. Тилбрук и соавт. .55 заключают, что подавление репродуктивной функции более вероятно при хроническом стрессе и может быть связано с воздействием на уровне гипоталамуса или гипофиза. Кроме того, они указывают на вероятные межвидовые различия во влиянии глюкокортикоидов на секрецию гонадотропинов; наличие половых стероидов и пол особи, вероятно, также имеют значение.
Цитокины относятся к семейству факторов роста. Интерлейкины, в частности, могут действовать на уровне гипоталамуса, регулируя высвобождение гонадотропин-рилизинг-гормона и тем самым влияя на высвобождение гонадотропинов гипофизом, а в конечном счёте — на синтез и высвобождение стероидов половыми железами. Свечнико и соавт. .62 сообщили, что интерлейкин (IL)-1 семенников может участвовать в паракринной регуляции стероидогенеза в клетках Лейдига у крыс. Другие исследователи сообщали, что интерлейкины семенников могут играть важную функциональную роль как при нормальной работе семенников, так и при патологических состояниях.63 Имеются некоторые данные о том, что у крупного рогатого скота такие цитокины, как фактор некроза опухоли (TNF)-α и интерферон (IFN)-γ, могут участвовать в регуляции оксида азота в эндотелиальных клетках жёлтого тела, повышая активность индуцибельной синтазы оксида азота (iNOS) и тем самым ускоряя лютеолиз. При этом считается, что прогестерон подавляет экспрессию iNOS в клетках жёлтого тела крупного рогатого скота.64 Оказывают ли эти или другие цитокины сходное действие на клетки семенников быка, пока не сообщалось.
Синтез стероидов клетками Лейдига
С начала XX века клетки Лейдига считались вероятным источником андрогенов семенников.65 Бертольд66 первым в ходе
