
Протокол Presynch
Было очевидно, что стадия эстрального цикла при инициации протокола Овсинк влияла на успех синхронности фолликулярной волны. Начало протокола слишком рано (например, через 1–4 дня после овуляции) или слишком поздно (например, через 13–20 дней после овуляции) снижало синхронность. Кроме того, если первая обработка ГнРГ была проведена, когда доминантный фолликул был до или после доминирования, овуляция может не произойти, и синхронное появление новой фолликулярной волны не произойдет.17 Альтернативой является обеспечение жизнеспособного растущего доминантного фолликула в момент обработки ГнРГ. Коровы будут реагировать наиболее последовательно, когда ГнРГ вводится между 5 и 12 днями эстрального цикла.18,19 Следовательно, было использовано несколько протоколов для выравнивания эстального цикла коров к 5–12 дню при инициации Ovsynch или CO-Synch протокола. Они включают предварительную синхронизацию коров до Ovsynch с использованием двух инъекций PGF2α, вводимых с интервалом в 14 дней, с интервалом до основного протоколола с фиксированным ИО 11 дней,58 12 дней,19 или 14 дней59 (Presynch-Ovsynch). Другой протокол, обозначенный G6G, начинается с инъекции PGF2α, которая предназначена для индукции лютеолиза функционального желтого тела, и инъекции GnRH через 2 дня, предназначенной для индукции овуляции. В совокупности две инъекции G6G предназначены для начала нового эстрального цикла. Ovsynch планируется начать через 6 дней после инъекции GnRH, чтобы у коровы был 6-й день нового эстрального цикла и большая вероятность иметь функциональный доминантный фолликул, способный к овуляции в ответ на первый GnRH Ovsynch. Кроме того, использование двух инъекций PGF2α для предварительной синхронизации эстральных циклов было неэффективным для ановулярных коров.19
Протоколы предварительной синхронизации, которые индуцируют образование ЖТ перед началом протокола Ovsynch, вероятно, улучшат фертильность у ановуляторных коров. Протокол, который включает в себя индукцию цикличности у ановулярных молочных коров, заключается в использовании дополнительного протокола Ovsynch для пресинхронизации и индукции цикличности у коров до использования основного протокола Ovsynch и называется Double-Ovsynch.60
Добавление прогестерона в протокол GnRH – PGF2α – GnRH
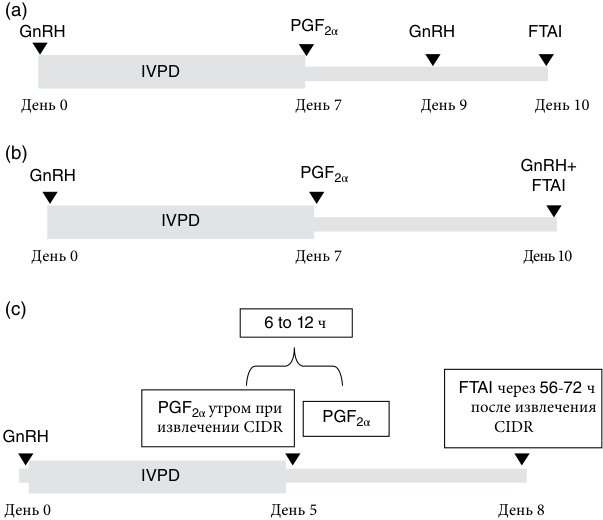
Включение прогестерона между первым GnRH и PGF2α в течение 7 дней в протоколах Ovsynch (рисунок 33.8a) и CO-Synch (рисунок 33.8b) улучшают синхронность эструса/овуляции и олодотворяемость у коров и телок. Эти протоколы полезны для коров с анеструсом и телок, а также для коров с кистозными яичниками. Существует несколько протоколов, модифицированных из вышеупомянутого протокола. Недавно был проведен эксперимент с введением прогестерона между первым GnRH и PGF2α в течение 5 дней по протоколу CO-Synch (рис. 33.8c). Цель состояла в том, чтобы сократить обработку прогестероном до 5 дней и увеличить фазу проэструса (интервал от PGF2α до второго ГнРГ) до 72 часов.61,62 Этот подход увеличил оплодотворяемость по ИО до 15% у мясных коров41,42 . Из-за укороченного интервала от первого GnRH до PGF2α в 5-дневном протоколе IVPD и вариабельности лютеолиза у некоторых коров после введения однократной дозы PGF2α на 5-й день эстрального цикла, все коровы должны получить вторую дозу PGF2α приблизительно через 6–12 часов после первого введения PGF2α при извлечении CIDR.63,64
(a)
GnRH PGF2α GnRH FTAI
IVPD
День 0 День 7 День 9 День 10
(b)
GnRH+
GnRH PGF2α
FTAI
IVPD
День 0 День 7 День 10
(c)
от 6 до 12 ч
FTAI через 56-72 ч
PGF2α утром при после извлечения
извлечении CIDR PGF2α CIDR
GnRH
IVPD
День 0 День 5 День 8
Рисунок 33.8 Протокол синхронизации овуляции GnRH-PGF2α-GnRH с добавлением прогестерона с фиксированным временем осеменения (FTAI). (а) Ovsynch с IVPD. (б) CO-Synch с IVPD. (c) 5-дневный CO-Synch с IVPD. Обратите внимание, что первый GnRH может быть заменен эстрадиолом-17 или бензоатом эстрадиола плюс прогестерон, а второй GnRH может быть заменен эстрадиолом-17 или бензоатом эстрадиола. Добавление прогестерона считается полезным для анестральных коров и препубертатных/перипубертатных телок. Одновременное введение GnRH во время осеменения по протоколу CO-Synch + IVPD является предпочтительным на мясных фермах, поскольку это уменьшает количество обработок. Из-за сокращенного интервала от исходного GnRH до PGF2α в 5-дневном протоколе IVPD и вариабельности лютеолиза у некоторых коров после введения одной дозы PGF2α на 5-й день эстрального цикла, все коровы должны получить вторую дозу PGF2α приблизительно через 6–12 часов после первого введения PGF2α при извлечении CIDR.
Добавление лошадиного хорионического гонадотропина
Лошадиный хорионический гонадотропин (eCG) добавляется в протоколы синхронизации как средство ускорения развития фолликулов. Использование eCG в протоколах воспроизводства улучшает репродуктивную эффективность у сезонно телящихся, анестральных коров. Добавление 4000 МЕ eCG при удалении прогестеронового устройства способствовало получению 74% стельностей на 49-й день случного сезона.65 Включение eCG через 6 или 7 дней протокола GPG/P4 увеличило оплодотворяемость на 28-день после осеменения (с 52,3% до 58,6%) и сократило средний день до зачатия у анэстральных молочных коров.66 У южноамериканских лактирующих мясных коров на пастбищном содержании и молочных лактирующих анэстральных коров, добавление eCG увеличило оплодотворяемость на 10–15% после ИО в фиксированное время по сравнению с тем же протоколом без eCG.67–69
Заключение
В настоящее время существуют протоколы синхронизации эструса и овуляции для успешного достижения приемлемой фертильности после осеменения в естественную охоту или в фиксированное время без выявления охоты. Кроме того, успех достигается у самок, у которых могут отсутствовать циклы на момент начала лечения. Инициирование фертильной овуляции у перибубертальных телок и ациклических коров, вероятно, является основным способом, с помощью которого производители могут улучшить фертильность при синхронизации охоты и в протоколах ИО по времени. Использование основанной на IVPD синхронизации перед осеменением коров и телок повышает фертильность более эффективно, чем другие гормональные синхронизирующие вмешательства. Разработка протоколов синхронизации, которые уменьшают влияние факторов, связанных с снижением синхронности течки и/или овуляции, предоставят производителям крупного рогатого скота эффективные и действенные инструменты для улучшения генетики. Поскольку местоположение, разница в пастбищах, рацион, порода, упитанность, сервис-период, климат и географическое положение могут влиять на успех протоколов синхронизации, следует учитывать эти переменные факторы, чтобы повысить успешность синхронизации.
-
Ginther O, Bergfelt D, Kulick L, Kot K. Пульсирующий характер изменений системных концентраций FSH и LH в период развития фолликулярной волны у крупного рогатого скота. Theriogenology 1998;50:507–519.
-
Ginther O, Bergfelt D, Beg M, Kot K. Отбор фолликула у крупного рогатого скота: роль лютеинизирующего гормона. Biol Reprod 2001;64:197–205.
-
Savio J, Thatcher W, Morris G, Entwhistle K, Drost M, Mattiacci M. Влияние создания низких концентраций прогестерона в плазме с помощью интравагинального устройства, высвобождающего прогестерон, на смену фолликулов и оплодотворяемость крупного рогатого скота. J Reprod Fertil 1993;98:77–84.
-
Bo G, Adams G, Pierson R, Mapletoft R. Экзогенное управление началом фолликулярной волны у крупного рогатого скота. Theriogenology 1995;43:31–40.
-
Austin J, Mihm M, Ryan M, Williams D, Roche J. Влияние продолжительности доминирования овуляторного фолликула на начало охоты и плодовитость тёлок. J Anim Sci 1999;77:2219–2226.
-
Kastelic J, Knopf L, Ginther O. Влияние дня введения простагландина на отбор и развитие овуляторного фолликула у тёлок. Anim Reprod Sci 1990;23:169–180.
-
Kastelic J, Ginther O. Факторы, влияющие на происхождение овуляторного фолликула у тёлок с индуцированным лютеолизом. Anim Reprod Sci 1991;26:13–24.
-
Roche J, Mihm M, Diskin M, Ireland J. Обзор регуляции роста фолликулов у крупного рогатого скота. J Anim Sci 1998;76:16–23.
-
Twagiramungu H, Guilbault L, Dufour J. Синхронизация волн роста фолликулов яичника с помощью агониста гонадотропин-рилизинг-гормона для повышения точности определения времени охоты у крупного рогатого скота: обзор. J Anim Sci 1995;73:3141–3151.
-
Ryan M, Mihm M, Roche J. Влияние введения GnRH до или после установления доминирования фолликула на гонадотропный ответ и судьбу соответствующей фолликулярной волны у молочных коров после отёла. J Reprod Fertil Abstr Ser 1998;21:61.
-
Bo G, Adams G, Caccia M, Martinez M, Pierson R, Mapletoft R. Начало фолликулярной волны в яичниках после обработки прогестагеном и эстрадиолом у крупного рогатого скота. Anim Reprod Sci 1995;39:193–204.
-
Martinez M, Adams G, Bergfelt D, Kastelic J, Mapletoft R. Влияние LH или GnRH на доминантный фолликул первой фолликулярной волны у тёлок. Anim Reprod Sci 1999;57:23–33.
-
Vasconcelos J, Silcox R, Rosa G, Pursley J, Wiltbank M. Доля животных с синхронизированной овуляцией, размер овуляторного фолликула и частота наступления стельности при начале синхронизации овуляции в разные дни полового цикла у лактирующих молочных коров. Theriogenology 1999;52:1067–1078.
-
Moreira F, Orlandi C, Risco CA, Mattos R, Lopes F, Thatcher W. Влияние предварительной синхронизации и бычьего соматотропина на частоту наступления стельности при искусственном осеменении в фиксированные сроки у лактирующих молочных коров. J Dairy Sci 2001;84:1646–1659.
-
Wiltbank J, Sturges J, Wideman D, LeFever D, Faulkner L. Управление охотой и овуляцией с помощью подкожных имплантатов и эстрогенов у мясного крупного рогатого скота. J Anim Sci 1971;33:600–606.
Ссылки
-
Diskin M, Austin E, Roche J. Экзогенная гормональная регуляция активности яичников у крупного рогатого скота. Domest Anim Endocrinol 2002;23:211–228.
-
Ginther O. Отбор доминантного фолликула у крупного рогатого скота и лошадей. Anim Reprod Sci 2000;60/61:61–79.
-
Adams G, Matteri R, Ginther O. Влияние прогестерона на фолликулы яичника, начало фолликулярных волн и концентрацию циркулирующего фолликулостимулирующего гормона у тёлок. J Reprod Fertil 1992;95: 627–640.
-
Ginther O, Kot K, Kulick L, Wiltbank M. Появление и расхождение фолликулов в ходе развития фолликулярных волн у крупного рогатого скота. Theriogenology 1997;48:75–87.
-
Ginther O, Bergfelt D, Kulick L, Kot K. Отбор доминантного фолликула у крупного рогатого скота: начало расхождения фолликулов менее чем за 8 часов вследствие снижения концентрации FSH. Theriogenology 1999;52:1079–1093.
-
Bó G, Adams G, Pierson R, Tribulo H, Caccia M, Mapletoft R. Динамика фолликулярных волн после введения эстрадиола--17β тёлкам с прогестагеновым имплантатом и без него. Theriogenology 1994;41:1555–1569.
-
Martínez M, Kastelic J, Bó G, Caccia M, Mapletoft R. Влияние эстрадиола и некоторых его эфиров на высвобождение гонадотропинов и динамику фолликулов яичника у мясного крупного рогатого скота, получавшего CIDR. Anim Reprod Sci 2005;86:37–52.
-
Martínez M, Kastelic J, Mapletoft R. Влияние эстрадиола на высвобождение гонадотропинов, охоту и овуляцию у мясного крупного рогатого скота, получавшего CIDR. Domest Anim Endocrinol 2007;33:77–90.
-
Bó G, Baruselli P, Moreno D и др. Управление развитием фолликулярных волн в программах переноса эмбрионов с самостоятельно назначаемыми сроками у крупного рогатого скота. Theriogenology 2002;57:53–72.
-
Caccia M, Bó G. Начало фолликулярной волны после введения бензоата эстрадиола и прогестерона мясным тёлкам с имплантированным CIDR-B. Theriogenology 1998;49:341 (аннотация).
-
Colazo M, Martínez M, Small J и др. Влияние валерата эстрадиола на динамику фолликулов яичника и ответ на суперовуляцию у крупного рогатого скота, получавшего прогестин. Theriogenology 2005;63:1454–1468.
-
Milvae R. Роль простагландинов жёлтого тела в регуляции функций жёлтого тела у крупного рогатого скота. J Anim Sci 1986;62(доп. вып. 2):72–78.
-
Niswender G, Davis T, Griffith R и др. Судья, присяжные и палач: саморегуляция функции жёлтого тела. Soc Reprod Fertil Suppl 2007;64:191–206.
-
Hansel W, Alila H, Dowd J, Milvae R. Различия в происхождении и механизмах регуляции малых и больших лютеиновых клеток крупного рогатого скота. J Reprod Fertil Suppl 1991;43:77–89.
-
Hansel W, Alila H, Dowd J, Yang X. Регуляция стероидогенеза в малых и больших лютеиновых клетках крупного рогатого скота. Aust J Biol Sci 1987;40:331–347.
-
McCracken JA, Baird DT, Carlson JC, Goding JR, Barcikowski B. Роль простагландинов в регрессии жёлтого тела. J Reprod Fertil Suppl 1973;18:133–142.
-
Lauderdale J, Seguin B, Stellflug J и др. Фертильность крупного рогатого скота после инъекции PGF2a. J Anim Sci 1974;38:964–967.
-
Odde K. Обзор методов синхронизации половой охоты у коров после отёла. J Anim Sci 1990;68:817–830.
-
Wiltbank M, Shiao T, Bergfelt D, Ginther O. Рецепторы простагландина F2α в жёлтом теле крупного рогатого скота на ранней стадии его развития. Biol Reprod 1995;52:74–78.
-
Wiltbank M. Как сведения о гормональной регуляции функции яичников помогли лучше понять программы осеменения в заданные сроки. В кн.: Материалы Общества териогенологии , 1997, с. 83–97.
-
Nasser L, Adams G, Bó G, Mapletoft R. Реакция яичников на суперовуляторную стимуляцию в зависимости от начала фолликулярной волны у тёлок. Theriogenology 1993;40:713–724.
-
Adams G, Nasser L, Bó G, Garcia A, Del Campo M, Mapletoft R. Суперовуляторный ответ фолликулов яичников волны 1 по сравнению с волной 2 у тёлок. Theriogenology 1994;42:1103–1113.
-
Macmillan K, Peterson A. Новое внутривлагалищное устройство для высвобождения прогестерона у крупного рогатого скота (CIDR-B) для синхронизации половой охоты, повышения частоты наступления стельности и лечения анэструса. Anim Reprod Sci 1993;33:1–25.
-
Mihm M, Baguisi A, Boland M, Roche J. Связь между продолжительностью доминирования овуляторного фолликула и частотой наступления стельности у тёлок мясных пород. J Reprod Fertil 1994;102:123–130.
-
Austin E, Mihm M, Ryan M, Williams D, Roche J. Влияние продолжительности доминирования овуляторного фолликула на начало половой охоты и фертильность тёлок. J Anim Sci 1999;77:2219–2226.
-
Rhodes F, McDougall S, Burke C, Verkerk G, Macmillan K. Обзор по приглашению редакции: лечение коров с длительным послеродовым анэструсом. J Dairy Sci 2003;86:1876–1894.
-
Yavas Y, Walton J. Отсутствие половых циклов после отёла у подсосных коров мясных пород: обзор. Theriogenology 2000;54:25–55.
-
Gümen A, Guenther J, Wiltbank M. Размер фолликулов и ответ на протокол Ovsynch в сравнении с выявлением половой охоты у лактирующих молочных коров с овуляцией и без неё. J Dairy Sci 2003;86:3184–3194.
-
Nation D, Morton J, Cavalieri J, Macmillan K. Факторы, связанные с частотой встречаемости «коров-призраков» в молочных стадах Австралии. Proc NZ Soc Anim Prod 2001;61:180–183.
-
Garverick H. Фолликулярные кисты яичников у молочных коров. J Dairy Sci 1997;80:995–1004.
-
Peter A. Новые сведения о кистозной дегенерации яичников у крупного рогатого скота. Reprod Domest Anim 2004;39:1–7.
-
Ambrose D, Schmitt E, Lopes F, Mattos R, Thatcher W. Реакции яичников и эндокринной системы при лечении фолликулярных кист яичников у молочных коров гонадотропин-рилизинг-гормоном и простагландином F2альфа с применением или без применения экзогенного прогестерона. Can Vet J 2004;45:931–937.
-
Gümen A, Wiltbank M. Изменение действия эстрадиола на гипоталамус вследствие отсутствия воздействия прогестерона может вызывать образование фолликулярных кист у крупного рогатого скота. Biol Reprod 2002;66:1689–1695.
-
Colazo M, Martinez M, Kastelic J, Mapletoft R, Carruthers T. Седалищно-прямокишечная ямка как альтернативный путь введения простагландина крупному рогатому скоту. Can Vet J 2002;43:535–541.
-
Brown L, Odde K, King M, LeFever D, Neubauer C. Сравнение схемы с применением меленгестрола ацетата и простагландина F2α с Syncro-Mate B для синхронизации половой охоты у тёлок мясных пород. Theriogenology 1988;30:1–12.
-
Deutscher G. Увеличение интервала с семнадцати до девятнадцати дней в программе синхронизации половой охоты у тёлок с применением меленгестрола ацетата и простагландина. Prof Anim Sci 2000;16:164–168.
-
Lamb G, Nix D, Stevenson J, Corah L. Увеличение интервала между применением MGA и простагландина F2α с 17 до 19 дней в схеме синхронизации половой охоты у тёлок. Theriogenology 2000;53:691–698.
-
Zimbelman R, Smith L. Регуляция овуляции у крупного рогатого скота с помощью меленгестрола ацетата. I. Влияние дозы и пути введения. J Reprod Fertil 1966;11:185–191.
-
Kojima F, Bader J, Stegner J и др. Замена меленгестрола ацетата (MGA) внутривлагалищными устройствами EAZI-BREED CIDR (CIDR) в протоколе MGA Select для тёлок мясных пород. J Anim Sci 2004;82(прил. 1):225 (аннотация).
-
Mallory D, Wilson D, Busch D, Ellersieck M, Smith M, Patterson D. Сравнение длительных протоколов синхронизации половой охоты на основе прогестинов у тёлок мясных пород. J Anim Sci 2010;88:3568–3578.
-
Leitman N, Busch D, Mallory D и др.Сравнение длительных протоколов синхронизации эструса с применением CIDR у тёлок мясных пород. Anim Reprod Sci 2009;114:345–355.
-
Patterson D, Corah L, Brethour J. Реакция допубертатных тёлок Bos taurus и Bos indicu s × Bos taurus на меленгестрола ацетат с применением или без применения гонадотропин-рилизинг-гормона. Theriogenology 1990;33:661–668.
-
Galvão K, Sá Filho M, Santos J. Сокращение интервала между предварительной синхронизацией и началом искусственного осеменения в фиксированное время повышает фертильность молочных коров. J Dairy Sci 2007;90:4212–4218.
-
Navanukraw C, Redmer D, Reynolds L, Kirsch J, Grazul-Bilska A, Fricke P. Модифицированный протокол предварительной синхронизации повышает результативность искусственного осеменения в фиксированное время у лактирующих молочных коров. J Dairy Sci 2004;87:1551–1557.
-
Herlihy M, Giordano J, Souza A и соавт. Предварительная синхронизация по протоколу Double-Ovsynch повышает результативность первого после отёла искусственного осеменения у лактирующих молочных коров. J Dairy Sci 2012;95: 7003–7014.
-
Bridges G, Helser L, Grum D, Mussard M, Day M. Сокращение интервала между введением GnRH и PGF2a с 7 до 5 дней и удлинение проэструса повышают частоту стельности после искусственного осеменения в фиксированное время у коров мясных пород. Theriogenology 2008;69:843–851.
-
Kasimanickam R, Day M, Rudolph J, Hall J, Whittier W. Две дозы простагландина повышают частоту стельности после искусственного осеменения в фиксированное время при 5-дневном протоколе синхронизации на основе прогестерона у коров мясных пород. Theriogenology 2009;71:762–767.
-
Whittier W, Kasimanickam R, Currin J, Schramm H, Vlcek M. Влияние сроков второго введения простагландина F 2 альфа при 5-дневном протоколе CO-Synch на основе прогестерона на частоту стельности после искусственного осеменения у коров мясных пород. Theriogenology 2010;74:1002–1009.
-
Bridges G, Ahola J, Brauner C и соавт. Определение оптимального способа введения PGF2α при 5-дневном протоколе CO-Synch + CIDR у подсосных коров мясных пород. J Anim Sci 2012;90:4814–4822.
-
Xu Z, Burton L, Macmillan K. Лечение молочных коров с послеродовым анэструсом прогестероном, эстрадиолом и хорионическим гонадотропином лошадей. NZ Vet J 1997;45:205–207.
-
Bryan M, Bó G, Mapletoft R, Emslie F. Применение хорионического гонадотропина лошадей для лечения молочных коров с анэструсом при использовании 6- или 7-дневных протоколов с гонадотропин-рилизинг-гормоном и прогестероном. J Dairy Sci 2013;96:122–131.
-
Baruselli P, Reis E, Marques M, Nasser L, Bó G. Применение гормональных препаратов для повышения воспроизводительных показателей мясного крупного рогатого скота с анэструсом в тропическом климате. Anim Reprod Sci 2004; 82–83:479–486.
-
Cutaia L, Tribulo R, Moreno D, Bó G. Частота стельности у лактирующих коров мясных пород после применения устройств, высвобождающих прогестерон, бензоата эстрадиола и хорионического гонадотропина лошадей (eCG). Theriogenology 52003;9:216 (аннотация).
-
Veneranda G, Filippi L, Racca D, Cutaia L, Bó G. Частота стельности у молочных коров после применения интравагинальных устройств с прогестероном и GnRH либо бензоата эстрадиола и eCG. Reprod Fertil Dev 2008;20:91 (аннотация).
