
Холестерин 22-гидроксихолестерин
22-гидроксилаза
20-гидроксилаза
20,22-
Дигидроксихолестерин
20,22-лиаза
Прегненолон
3β-дегидрогеназа-изомераза
17α-гидроксилаза Прогестерон
17α-гидроксилаза
17α-
Гидроксипрегненолон 17α-гидрокси-
прогестерон
17,20-десмолаза
C17-20-лиаза
Ароматаза
Дегидро- Андростендион Эстрон
эпиандростендион
3β-дегидрогеназа- 17β-гидроксистероидная
изомераза дегидрогеназа
Ароматаза
Андростендиол Тестостерон Эстрадиол 17β
5α-редуктаза
Дигидротестостерон
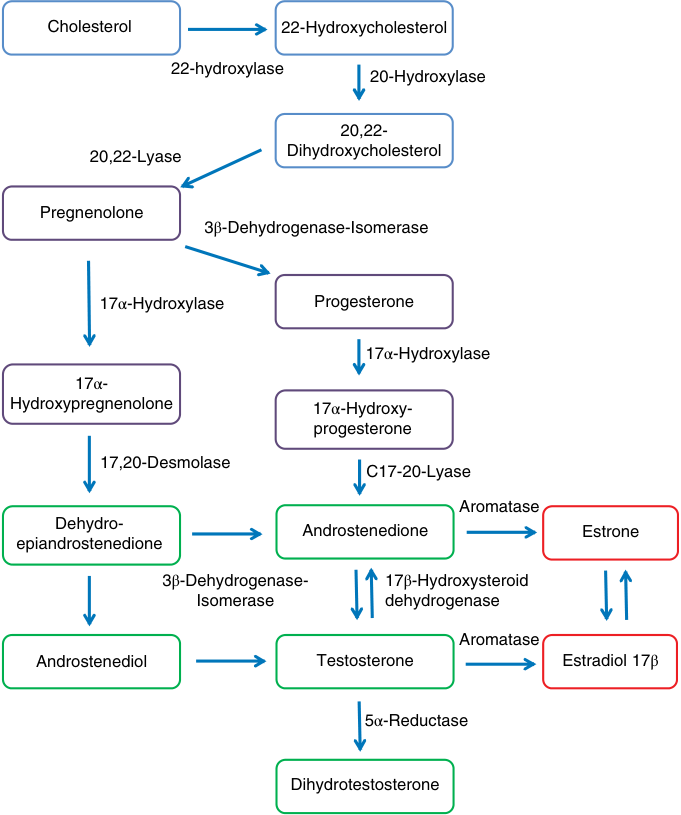
Рисунок 2.2Путь синтеза тестостерона и его превращения в активные андрогенные и эстрогенные метаболиты в семеннике быка. Показаны соответствующие ферментные системы, участвующие в синтезе; в некоторых случаях ферментативные реакции обратимы. Цветовые обозначения: синий — холестерин и стероидные предшественники с C27; фиолетовый — прогестиновые стероиды с C21; зелёный — андрогенные стероиды с C19; красный — эстрогенные стероиды с C18.
метаболизируется в микросомах под действием микросомального ферментного комплекса 3β-гидроксистероиддегидрогеназы/изомеразы. Прегненолон также является обязательным промежуточным соединением в синтезе стероидов клетками Лейдига. Van der Mollen и Rommerts52указали, что превращение стероидов с C21 (то есть прегненолона) в стероиды с C19 (тестостерон) может происходить в семеннике млекопитающих двумя путями биосинтеза. Ключевой этап биосинтеза андрогенов из прегненолона — отщепление двухуглеродной боковой цепи 17α-гидроксипрогестерона или 17α-гидроксипрегненолона под действием ферментного комплекса 17,21-лиазы.74Эта реакция считается необратимой и приводит к образованию «слабых» андрогенов (соответственно андростендиона и дегидроэпиандростерона). Под действием 17β-гидроксистероиддегидрогеназы андростендион превращается в более активный андроген — тестостерон; это происходит в микросомальных компартментах клетки. Однако под действием ферментной системы 5α-редуктазы тестостерон превращается в дигидротестостерон (DHT), который считается наиболее биологически активным андрогеном, вырабатываемым семенником. Более подробное описание механизмов биосинтеза тестостерона можно найти в обзоре Hall,45 но схематическое
представление о синтезе стероидов в семеннике быка приведено на рисунке 2.2.
Необычно большое количество клеток Лейдига у домашних хряков и жеребцов послужило основанием для гипотезы о том, что это может быть связано со значительной секрецией эстрогенов у обоих видов,75 однако значение огромного количества эстрогенов, вырабатываемых этими двумя видами, остается невыясненным. Предполагается, что эстрогены действуют синергично с тестостероном, усиливая как секреторную активность добавочных половых желез, так и половое поведение хряков, кастрированных после полового созревания.76 Эстрогены относятся к C18-стероидам и образуются при превращении андрогенов под действием ферментной системы ароматазы: из андростендиона образуется эстрон, а из тестостерона — эстрадиол. Особый интерес у хряка представляют имеющие мускусный запах Δ16-андростеновые стероиды (феромоны), которые в количественном отношении считаются наиболее распространенными стероидами, вырабатываемыми семенником хряка, и обусловливают характерный «запах хряка» у свинины.77 Однако нет достаточных доказательств того, что семенники быка вырабатывают эстрогены в количествах, обнаруживаемых у хряка и жеребца; нет также данных о том, что у быка в значительных количествах секретируются
Δ16-андростеновые стероиды. Вместе с тем в настоящее время достоверно установлено, что тестостерон — наиболее сильнодействующий андроген, вырабатываемый клетками Лейдига в семенниках млекопитающих; он действует главным образом на клетки-мишени семенных канальцев, влияя тем самым на редукционное деление сперматогенных клеток.78 Андрогены стимулируют выработку клетками Сертоли андрогенсвязывающего белка (ABP),79 который служит внутриклеточным переносчиком тестостерона и DHT в клетках Сертоли. Тестостерон также является важнейшим фактором, определяющим скорость образования фруктозы в семенных пузырьках человека, быка и барана, а также лимонной кислоты в предстательной железе и семенных пузырьках быка, барана и человека.78
Окситоцин — нейропептидный гормон, состоящий из девяти аминокислот. Обычно его связывают с гипоталамо-нейрогипофизарной системой и регуляцией родов и лактации у самок, однако показано, что он также играет эндокринную и паракринную роль в репродуктивной функции самцов.19, 80 В литературе имеются данные о том, что окситоцин вырабатывается и секретируется органами репродуктивной системы самцов, включая семенники.81, 82 Более того, в настоящее время имеются данные, свидетельствующие о местной выработке окситоцина в семеннике и его паракринной роли в регуляции стероидогенеза в семеннике и сократительной активности органов репродуктивной системы самцов.83 Кроме того, показано, что в семеннике этот гормон вырабатывается клетками Лейдига, а окситоцин действует как паракринный гормон, влияющий на сократительную активность перитубулярных миоидных клеток.19 Предполагается, что сокращение миоидных клеток эпителия семенных канальцев способствует продвижению сперматозоидов через паренхиму семенника в сеть семенника и далее в систему придатка семенника. Показано, что в предстательной железе тестостерон под действием 5α-редуктазы превращается в DHT, который стимулирует рост этой железы. Николсон83 выдвинул гипотезу, согласно которой окситоцин повышает активность 5α-редуктазы, что приводит к увеличению концентрации DHT и росту предстательной железы, тогда как андрогенная обратная связь снижает концентрацию окситоцина в предстательной железе и тем самым регулирует ее рост. Убедительные доказательства синтеза окситоцина в семеннике быка получены в исследованиях экспрессии гена окситоцина в семенных канальцах.84,85
Релаксин и INSL-3
Инсулиноподобный пептид 3 (INSL3; ранее известный как релаксиноподобный фактор) — пептидный гормон, принадлежащий к семейству пептидных гормонов релаксина и инсулина.86, 87 Впервые он был обнаружен в семенниках свиней88 и в настоящее время считается важным фактором регуляции нормального опускания семенников,87 особенно на второй его стадии, когда он воздействует на направляющую связку семенника, что было продемонстрировано на мышах с выключенным геном. Этот пептидный гормон обнаружен в тканях самцов и самок других видов, в том числе человека, обыкновенной игрунки, овцы, козы, крупного рогатого скота, а также оленя, собаки и других видов.89 Он вырабатывается в больших количествах клетками Лейдига семенников как плодов, так и взрослых особей; концентрации циркулирующего INSL3 измерены в крови взрослых самцов млекопитающих, включая крысу (5 нг/mL),90 мышь (2 нг/mL)90 и человека (0.8–2.5 нг/mL).91,92 Хотя INSL3 был успешно выделен из семенника быка93 и обнаружен
в амниотической жидкости плодов мужского пола человека,94 лишь недавно Ананд-Айвелл и соавторы .95 с помощью нового иммуноанализа с временным разрешением флуоресценции для непосредственного выявления INSL3 в крови и биологических жидкостях жвачных сообщили, что в середине стельности (день 153) концентрация INSL3 в крови коров, вынашивающих плод мужского пола, была значительно выше, чем у коров, вынашивающих плод женского пола. Авторы предполагают, что INSL3 представляет собой первый пример полоспецифического гормона плода, потенциально способного влиять на физиологию как плаценты, так и матери. В недавнем обзоре сообщается, что INSL3 является одним из основных продуктов секреции интерстициальных клеток Лейдига зрелых семенников у всех самцов млекопитающих.96 Кроме того, имеющиеся данные указывают на его аутокринную, паракринную и эндокринную функции, опосредованные рецептором 2 семейства релаксиновых рецепторов, сопряженным с G-белком (RXFP2), хотя для подробного изучения этих функций необходимы дальнейшие исследования. В частности, недавние исследования выявили наличие в сперматозоидах свиней рецепторов RXFP1 и RXFP2,97 что позволяет предположить важную роль релаксина в подвижности сперматозоидов.98 Однако у крупного рогатого скота еще предстоит подтвердить наличие рецепторов релаксина, способность сперматозоидов связывать релаксин и повышение их подвижности под его действием; с появлением новых технологий это может стать возможным.99
Семенные канальцы, клетки Сертоли, герминативная ткань
В участках паренхимы семенника расположены семенные канальцы, первоначально образующиеся из первичных половых тяжей. Семенные канальцы содержат клетки Сертоли, также известные как клетки-кормилицы развивающихся половых клеток, и сперматогонии — удлиненные клетки, находящиеся внутри канальцев. Клетки Сертоли были впервые описаны итальянским физиологом Энрико Сертоли в начале 1860-х годов. Эти клетки имеют большое структурное значение: они образуют гематотестикулярный барьер, отделяющий интерстициальное кровеносное пространство семенника от адлюминального пространства семенных канальцев. Помимо того что клетки Сертоли обеспечивают развитие и созревание половых клеток на различных стадиях сперматогенеза, они действуют как фагоциты, удаляя или поглощая остаточную цитоплазму и избыточный материал сперматозоидов. Клетки Сертоли также активно выполняют секреторную функцию: они вырабатывают антимюллеров гормон (AMH) — гликопротеин, который секретируется семенником на ранних стадиях внутриутробного развития и направляет формирование мужского репродуктивного тракта, вызывая регрессию мюллеровых протоков.100,101 Мутации гена AMH приводят у мужчин к синдрому персистенции мюллеровых протоков;102 наблюдается ли то же явление у крупного рогатого скота, не сообщалось. Однако в недавних исследованиях профили AMH успешно использовали в качестве нового биомаркера для определения наличия функционального семенника при крипторхизме у телят японской черной породы.103 Более подробный обзор цитологии клеток Сертоли содержится в работе де Кретсера и Керра.33
Кроме того, клетки Сертоли секретируют два близкородственных белковых комплекса из надсемейства цитокинов — трансформирующих факторов роста (активин и ингибин), которые оказывают противоположное регулирующее действие на синтез и секрецию гипофизарного FSH. Активин усиливает, а ингибин
подавляет синтез и секрецию FSH.104,105 Оба этих гормона секретируются после полового созревания и играют важную роль в размножении млекопитающих, которое координируется различными путями межклеточной коммуникации: нервными, нейроэндокринными, эндокринными и паракринными.106 Предполагается также, что активин способствует синтезу андрогенов в семеннике, усиливая действие LH и тем самым стимулируя сперматогенез. Считается, что у самцов млекопитающих выработку ингибина стимулируют андрогены семенника и что ингибин может действовать местно, помогая регулировать сперматогенез. О механизме действия ингибина известно значительно меньше, однако предполагается, что он может конкурировать с активином за связывание с рецептором активина и/или связываться со специфическим рецептором ингибина.105 Однако Филлипс107 в обзоре литературы отмечает, что ингибин не только регулирует секрецию FSH у самцов по механизму обратной связи, но и может быть важным паракринным и аутокринным регулятором функции семенника. Молекулярные исследования показали, что семенник быка вырабатывает обе формы ингибина (A и B) и что по мере взросления быков доля зрелых форм ингибина A и ингибина B возрастает, тогда как общая выработка ингибина клетками Сертоли снижается.108 В более позднем исследовании Канеко и соавторы .109 сообщили, что в ходе постнатального развития быков содержание ингибинов A и B в семеннике увеличивалось и что иммунореактивный ингибин A обнаруживался в плазме этих быков. Другие исследователи пытались использовать концентрацию ингибина в крови и экспрессию его гена наряду с другими эндокринными и генетическими маркерами для прогнозирования фертильности быков породы брахман.110 К сожалению, в современной литературе, по-видимому, мало сведений о роли активина у самцов крупного рогатого скота. Предполагается, что он действует как паракринный регулятор в семеннике, но для домашних животных это окончательно не доказано, хотя исследования in vitro на клетках Лейдига свиней указывают на его возможную роль в синтезе андрогенов.107 Вместе с тем считается, что у самок крупного рогатого скота он является важным внутрифолликулярным фактором, регулирующим отбор фолликулов.111,112 Также выдвинута гипотеза об участии активина в воспалительных процессах.107
К другим веществам, секретируемым клетками Сертоли, относятся ABP, эстрадиол (образующийся при превращении тестостерона под действием ферментного комплекса ароматазы), нейротрофический фактор глиальных клеток, трансферрин113 и недавно идентифицированный фактор транскрипции ERM. Трансферрин семенника и ABP — два гликопротеина, которые вырабатываются клетками Сертоли и секретируются ими в просвет канальца; они оказывают важное биологическое влияние на дифференцировку и созревание сперматозоидов.114,115 ABP — гликопротеин, специфически связывающий тестостерон, DHT и 17β-эстрадиол. При связывании с ABP стероидные гормоны тестостерон и DHT становятся менее липофильными и накапливаются в более высокой концентрации в просвете семенных канальцев, способствуя тем самым сперматогенезу. Синтез ABP регулируется действием FSH на клетки Сертоли, которое может усиливаться инсулином и тестостероном. В частности, ABP может связываться с тестостероном, поддерживая высокую концентрацию андрогена в семенном канальце, что способствует развитию и созреванию сперматогенных клеток. Андроген переносится в клетки-мишени, а затем посредством механизма ядерного транспорта — в ядро, где связывается с андрогенными рецепторами, регулирующими трансляцию генов-мишеней. Способность ABP связываться с андрогеном свидетельствует о его участии в половой дифференцировке и созревании половых клеток.113
Продукты экспрессии генов клеток Сертоли включают факторы роста, метаболические ферменты, транспортные белки (напримерg, трансферрин и ABP), ингибин, протеазы, антипротеазы, энергетические метаболиты и структурные компоненты.116 Трансферрин — один из основных продуктов секреции дифференцированных клеток Сертоли; предполагается, что он переносит железо, изолированное гематотестикулярным барьером, к развивающимся половым клеткам. Fe3+ в крови переносится в клетки Сертоли, связывается с трансферрином, синтезируемым клетками Сертоли, а затем поступает к развивающимся сперматогенным клеткам, способствуя росту и созреванию половых клеток. Известно, что синтез и секреция трансферрина и ABP регулируются FSH и андрогенами. Гонадотропин FSH — важный эндокринный гормон, необходимый для регуляции функции клеток Сертоли.117 Показано, что FSH регулирует экспрессию большинства генов клеток Сертоли, в том числе генов рецептора FSH, ABP, трансферрина, активатора плазминогена и ароматазы.118–121
Нейротрофический фактор глиального происхождения (GDNF) — небольшой белок, обычно связанный с поддержанием выживаемости нейронов.122 Его роль в функции семенников изучена не полностью, однако некоторые данные указывают на то, что он может способствовать сохранению недифференцированных сперматогониев, обеспечивая самообновление стволовых клеток в перинатальный период.123 Кроме того, Джонстон и соавт. .124 показали на взрослых крысах, что циклические изменения экспрессии GDNF клетками Сертоли определяют зависящие от стадии размножение и дифференцировку стволовых сперматогониев — клеток, лежащих в основе сперматогенеза. Согласно недавно опубликованным данным, GDNF не столько вызывает пролиферацию стволовых клеток сперматогониев, сколько усиливает их самообновление и повышает выживаемость сперматогониев крупного рогатого скота в культуре.125 Интересное наблюдение описали Харикаэ и соавт. .126 Это редкий случай рождения телёнка-фримартина, у которого наблюдалась трансдифференцировка соматических клеток яичника в соматические клетки семенника, в том числе клетки Сертоли, клетки Лейдига и перитубулярные миоидные клетки; при этом клетки Сертоли давали положительную реакцию при окрашивании на белок GDNF. Авторы предполагают, что эти наблюдения свидетельствуют о высоком потенциале половой пластичности яичников млекопитающих с набором хромосом XX. За более подробным обзором функций и регуляции клеток Сертоли читатель может обратиться к обстоятельной обзорной работе Расселла и Грисволда.127
Сперматогенез и созревание сперматозоидов
Первые исследования процесса сперматогенеза и сперматогониев домашнего быка были опубликованы во второй половине XIX века,128 но лишь в 1931 было определено число хромосом в сперматогониях и сперматоцитах и установлено, что диплоидное число составляет 60.129 В последующих исследованиях, проведённых после Второй мировой войны, половые клетки и их цитоплазматические структуры были описаны более подробно.128 В настоящее время установлено, что сперматогенез — сложный клеточный процесс, в ходе которого из диплоидных стволовых клеток-сперматогониев путём последовательных клеточных преобразований образуются сперматозоиды — гаплоидные мужские половые клетки, или гаметы. Эти сложные преобразования происходят в извитых семенных канальцах млекопитающих и могут занимать продолжительное время, зависящее от вида животного. С морфологической точки зрения сперматогенез описывают как последовательность чётко различимых клеточных
