
120
96
100 90
80 75
60
40
27
20
0
3 6 9 >9
Недель после отела
(%)Начало цикличности
50 46
45
39
40
35 32
30
25 23
20
15
10
5
0
0–3 >3–6 >6–9 >9
Интервал в неделях от отела до первой овуляции
(%)Оплодотворяемость
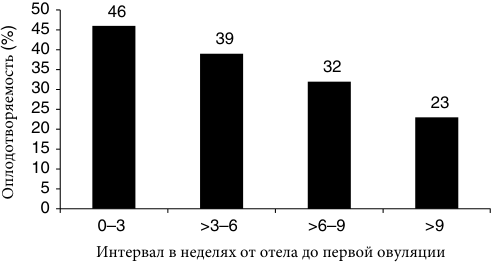
Рисунок 52.2 Оплодотворяемость по первому осеменению в зависимости от дней до первой послеотельной овуляции, определенной на основе повышения концентрации прогестерона в молоке. Пробы молока брали у 637 коров (23 стада) в период от 7 до 120 дней после родов или до первого осеменения. Первый рост прогестерона был показателем овуляции. У коров, у которых был первый рост прогестерона в течение 3-х недель после отела, был самый высокий (P <0,03) коэффициент зачатия по первому осеменению. Воспроизведено с разрешения Ambrose D, Colazo M. Репродуктивный статус молочных стад в Альберте: подробное рассмотрение. В: Достижения в Молочной Технологии, Труды Западно-канадского Молочного Семинара, 2007, с. 227–244.
Следует учитывать, что высокопродуктивные молочные коровы, которые не способны прийти в охоту и забеременеть вскоре после окончания периода добровольного ожидания, могут продолжать оставаться прибыльными в течение определенного периода времени, в то время как коровы с более низкой продуктивностью, которые остаются ациклическими и соответственно, нестельными в течение длительного периода, часто убыточны и становятся потенциальными претендентами на выбраковку.
Физиологические основы послеродового анэстрального периода и возобновления цикличности
Эндокринные события, ведущие к анэструсу
Во время беременности циркулирующие концентрации прогестерона и эстрогена остаются высокими, оказывая подавляющее влияние на гипоталамо-гипофизарную ось.29 Хотя концентрации периферического прогестерона в поздней беременности не намного выше, чем в середине или в начале гестационного периода,30,31 циркулирующие эстрогены прогрессивно увеличиваются начиная примерно через 60 дней после осеменения, достигая в 50-1000 раз более высоких концентраций в дни, непосредственно предшествующие родам.30,32 Непрерывное длительное воздействие высоких концентраций эстрадиола, либо само по себе, либо в сочетании с прогестероном, ингибирует секрецию гонадотропин-рилизинггормона гипоталамуса (ГнРГ), что отрицательно влияет на синтез лютеинизирующего гормона (ЛГ) и, следовательно, приводит к постепенному истощению запасов ЛГ в гипофизе. Хотя механизмы высвобождения ЛГ из передней доли гипофиза остаются неповрежденными и функциональными на протяжении всей беременности29 , отсутствие пульсирующей секреции ГнРГ из гипоталамуса, по-видимому, негативно влияет на выработку ЛГ.
В отличие от ЛГ изменения концентрации фолликулостимулирующего гормона (ФСГ) во время поздней беременности менее заметны. В то время как средние концентрации ФСГ не различаются в предродовом и послеродовом периоде30,33 , периодические подъемы и падения (всплески) ФСГ, которые обычно происходят каждые несколько дней у циклирующих и стельных коров, в основном отсутствуют30 или замедляются33 в течение последних недель, предшествующих родам. Следовательно, соответствующее появление новой фолликулярной волны также отсутствует в течение последних 30 дней до родов.33
Не смотря на то, что можно восстановить пульсирующее высвобождение ЛГ в экспериментальных условиях путем введения инъекций малых доз ГнРГ с частыми интервалами (1-2 часа), не все коровы реагируют на такое лечение. Из-за противоречивой реакции на такой подход считается, что ингибирование секреции ГнРГ, возможно, не единственный механизм, участвующий в анэструсе..5
Эндокринные события, ведущие к возобновлению цикличности
По мере приближения родов наблюдается постепенное снижение концентрации прогестерона. Напротив, концентрации эстрогена продолжают расти и достигать пика за счет двукратного увеличения в течение последних 24 часов до отела. Поскольку почти все циркулирующие эстрогены имеют плацентарное происхождение, их концентрации резко снижаются после изгнания концепта в течение 1 дня после отела.32 В отсутствие прогестерона и эстрадиола в ближайшем послеродовом периоде ось гипоталамус-гипофиз «освобождается» от подавляющего воздействия этих стероидов, что приводит к восстановлению нормальной функции генератора импульсов ГнРГ и, как следствие, к импульсному высвобождению ГнРГ, который действует на гипофиз и восстанавливает нормальный характер выделения ФСГ. Нормальные импульсы ФСГ возобновляются в течение 3-х дней после отела, вызывая появление фолликулярной волны.30 Хотя ранние стадии развития фолликула не зависят от гонадотропина, поддержка ФСГ необходима для роста фолликулов от 4 до 9 мм, а импульсы ЛГ необходимы для продолжения роста фолликулов диаметром более 9 мм.34,35
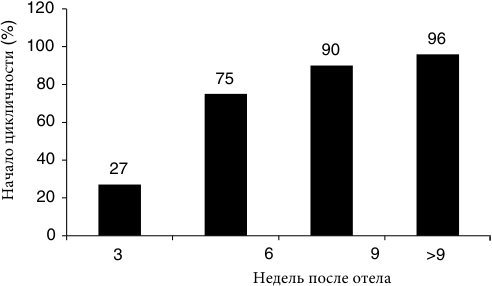
В раннем послеродовом периоде частота импульсов ЛГ остается очень низкой, обычно менее одного импульса каждые 4 часа, но впоследствии увеличивается до примерно одного-двух импульсов в час по мере увеличения пульсации ГнРГ. Восстановление функции гипофиза и повторное накопление ЛГ может занять до 3 недель или дольше в зависимости от некоторых факторов. Таким образом, когда условия для пополнения запасов ЛГ в гипофизе оптимальны, нормальная пульсирующая способность ЛГ восстанавливается, что приводит к росту и формированию доминантных фолликулов, способных продуцировать большее количество эстрадиола.
Высокая концентрация эстрадиола, секретируемого доминантным фолликулом необходима для запуска всплеска ЛГ, что имеет решающее значение для возникновения первой овуляции. Хотя первая овуляция сигнализирует о возобновлении цикличности, не все коровы возобновляют нормальные овариальные циклы после первой овуляции и могут вернуться к анэструсу.36 Если коров стимулируют экзогенным ГнРГ или эстрадиолом в раннем послеродовом периоде, не только значительно уменьшается выброс ЛГ из-за отсутствия запасов ЛГ в гипофизе, но и снижается его биологическая активность.5
Судьба первого доминантного фолликула
Судьба первого доминантного фолликула у послеродовой коровы определяется пульсирующей поддержкой ЛГ, которую он получает, и его собственной стероидогенной способностью вырабатывать эстрадиол. В зависимости от этих факторов первый доминантный фолликул может: 1) овулировать и образовать желтое тело (ЖТ); 2) стать ановуляторным, и, возможно, переродиться в кистозный фолликул; или 3) регрессирует, освобождая место для нового доминирующего фолликула.37,38
Классификация послеродового анеструса
Послеродовой анэструс может быть классифицирован на различные типы на основе фолликулярной динамики яичника или профилей прогестерона.
Категоризация анэструса на основе фолликулярной динамики яичника
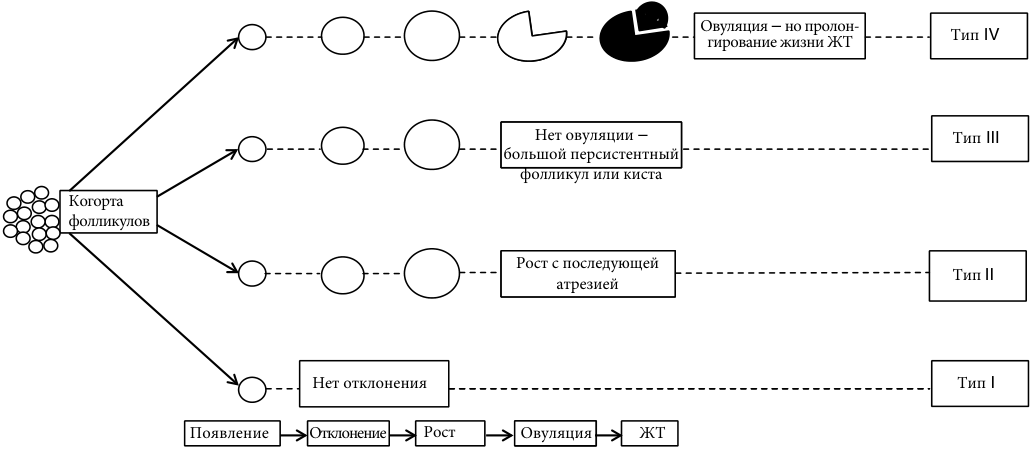
Предложена классификация ановуляторных состояний у крупного рогатого скота на основе трех функционально критических диаметров фолликулов, связанных с появлением (~ 4 мм), отклонением (~ 9 мм) и овуляцией (10–20 мм).39 В приведенной выше классификации в качестве основы Peter и соавт.13 взяли четыре типа анэструса, типы I-IV (рис. 52.3).
При анэструсе типа I наблюдается рост фолликулов вплоть до появления, но отклонения в росте не происходит, что приводит к отсутствию отбора доминирующего фолликула. Предполагается, что этот тип анэструса обусловлен чрезмерным недоеданием, которое может оказать негативное влияние на выработку ФСГ, подавляя рост фолликулов, хотя также могут быть вовлечены и другие факторы. Яичники этого типа во время ректального исследования могут быть описаны как «неактивные» или «гладкие», что означает отсутствие ощутимых яичниковых структур. В израильском исследовании40 1980-х годов сообщалось о 8,5% неактивных яичников из 7751 лактаций. В то время как анэструс типа I слабо распространен среди молочного скота развитых стран, он может быть более распространенным среди молочных стад в регионах мира, где отсутствует сбалансированное по энергии кормление.
При анеструсе типа II наблюдаются как фолликулярное отклонение, так и рост, но затем происходит регрессия, причем в некоторых случаях, после того, как фолликул достиг доминирования. Регрессия доминантного фолликула обычно сопровождается появлением новой фолликулярной волны через 2–3 дня. В этом типе анэструса может быть последовательное появление фолликулярных волн вплоть до появления первой овуляции. В одном исследовании сообщалось о девяти волнах роста фолликулов.41
При анэструсе типа III имеет место отклонение, рост и установление доминантного фолликула, но доминантный фолликул не может овулировать, становясь персистентной структурой, которая может либо задерживаться в виде ановулярного фолликула, либо продолжать расти с развитием в кистозный фолликул. Считается, что ановулярные фолликулы отличаются от кистозных фолликулов, потому что у коров с последним состоянием происходит нарушение механизмов обратной связи в оси гипоталамус-гипофиз.42 Секреторная картина ЛГ у коров с кистозным фолликулом яичника довольно сильно отличается от таковой у нормальных циклических коров тем, что средние концентрации ЛГ, частота импульсов ЛГ и амплитуда импульсов ЛГ у них выше;43 кроме того, у коров с активно растущим кистозным фолликулом концентрация эстрадиола также значительно выше.44 Кистозный фолликул, который активно растет, обычно оказывает доминирующее влияние, подавляя рост других фолликулов.
Овуляция – но пролон- Тип IV
гирование жизни ЖТ
Нет овуляции – Тип III
большой персистентный
фолликул или киста
Когорта
фолликулов
Рост с последующей
Тип II
атрезией
Нет отклонения Тип I
П оявление Отклонение Рост Овуляция ЖТ
Рисунок 52.3 Схематическое изображение типов анэстральных состояний на основе фолликулярной динамики яичника. Воспроизводится с разрешения Peter A, Vos P, Ambrose D. Послеродовый анэструс у молочного скота. Териогенология 2009;71:1333–1342.
Ретроспективный анализ данных ультразвукового исследования два раза в неделю в период с 7 до 35 дней после отела, проведенный на восьми лактирующих молочных коровах, у которых развились кистозные фолликулы яичника, показал, что доминантный фолликул первой волны стал кистозным у семи коров, а доминантный фолликул второй волны стал кистозным у одной коровы. Никакого другого фолликула диаметром более 5–6 мм не было обнаружено ни в одном яичнике коров, пока не исчез кистозный фолликул. У пяти коров киста сохранялась до (возможно, после) 35-го дня; у двух коров исходный кистозный фолликул сменился другим; у одной коровы два фолликула от второй фолликулярной волны стали доминирующими примерно на 30-й день, когда исходная киста регрессировала до диаметра менее 20 мм, дав возможность обоим доминирующим фолликулам созреть и овулировать (Divakar J. Ambrose, личные наблюдения).
При анеструсе типа IV доминантный фолликул овулирует и образуется ЖТ, но лютеиновая фаза продлевается из-за отсутствия своевременного лютеолиза с последующей регрессией ЖТ. Аберрантные (отклоняющиеся от нормы) паттерны роста фолликулов, приводящие к отсутствию эстрогенного доминантного фолликула в идеальное для запуска лютеолиза время, могут быть причиной этого состояния персистентного ЖТ.39
Категоризация анэструса на основе профилей прогестерона
Коров с анэструсом также можно классифицировать по различным категориям на основе уровня прогестерона в молоке или крови, измеренного, по крайней мере, два раза в неделю. Opsomer и др.45 сообщили, что, дважды в неделю измеряя уровень прогестерона в молочном жире у 334 молочных коров из шести стад, они обнаружили, что у 51% коров был нормальный прогестероновый профиль, причем первое повышение уровня прогестерона происходило до 50 дней после отела, после чего следовала правильная цикличность. Среди оставшихся коров 21,5% имели задержку цикличности (анэструс в течение первых 50 дней после отела, характеризующийся постоянным низким прогестероном в течение всего этого периода), 21,5% имели продолжительную лютеиновую фазу (прогестерон оставался повышенным в течение >20 дней без предшествующего осеменения), 4% имели прекращение цикличности (нормальные циклы были прерваны по меньшей мере на 14 дней с постоянно низкими концентрациями прогестерона), 0,5% имели короткие лютеиновые фазы (характеризуются наличием более одной лютеиновой фазы, не считая первой, которая длилась менее 10 дней), и 1,5% коров имели нерегулярные профили прогестерона (нетипичные профили, которые не принадлежали ни к одной из ранее описанных категорий).
Факторы, способствующие послеродовому анэструсу
Причины послеродового анэструса у крупного рогатого скота зачастую многофакторны,5,8,10,12,13,38,46–50 но их можно подразделить на физиологические, пищевые, управленческие, экологические и патологические, как подробно показано в таблице 52.1. Среди многочисленных потенциальных факторов, сосание и кормление (отрицательный энергетический баланс) считаются наиболее важными.
Сосание
Наличие подсосного теленка является основным источником анэструса у мясного скота,46 но обычно он не считается причиной анэструса у молочного скота из-за преобладающей в отрасли практики отделения молочных телят вскоре после рождения.
Тем не менее, в условиях эксперимента, когда идентичные пары близнецов молочных коров разделили на группы, к одной из которых приставили несколько подсосных телят, а вторую доили два раза в день, у кормящих коров интервал до первой охоты после отела был на 5–9 недель больше, чем у их близнецов на машинном доении. Базальные концентрации ЛГ в плазме не различались у близнецов с подсосом и на машинном доении, однако, индуцированное ГнРГ высвобождение ЛГ постепенно увеличивалось у коров с машинным доением с 0 до 6 недель после отела, а реакция ЛГ через 2 недели после отела у них была значительно выше.73 У кормящих коров эстрадиол-17β-индуцированное высвобождение ЛГ в течение 24 часов после обработки не проявлялось вплоть до 6 недель по сравнению с их близнецами на машинном доении, что указывает на то, что реакция оси гипоталамус-гипофиз как на ГнРГ, так и на эстрадиол-17β ухудшается при сосании. В другом исследовании 74 кормящие молочные коровы имели более низкие средние концентрации ЛГ на 13-й день после отела, чем некормящие контрольные животные. Это уменьшение концентрации произошло в результате снижения частоты импульсов ЛГ на 60% и амплитуды на 40%. Авторы исследования пришли к выводу, что снижение частоты и амплитуды эпизодической секреции ЛГ и снижение способности гипофиза реагировать на ГнРГ может объяснить вызванное сосанием ингибирование послеродовой овуляции. Для дальнейшего изучения последствий сосания при послеродовом анэструсе у крупного рогатого скота, пожалуйста, обратитесь к обзорам по теме 46, 49, 50 и Главе 23.
Кормление
Недостаточное потребление сухого вещества (то есть энергии), приводящее к отрицательному энергетическому балансу, является важным фактором, способствующим анэструсу у молочного скота.11,38,48 Потребности в энергии у новотельной лактирующей коровы резко возрастают из-за более высоких затрат энергии, связанных с выработкой молока, что подталкивает корову к катаболическому метаболизму. Энергетический баланс - это потребленная энергия минус энергия, затраченная на поддержание жизни, рост и производство молока. В то время как сухостойные молочные коровы редко переходят в состояние отрицательного энергетического баланса, за исключением непосредственно предродового периода, когда потребление сухого вещества снижается, большинство лактирующих молочных коров не в состоянии удовлетворить свои потребности в энергии после отела и всегда испытывают дефицит энергии. Физическая наполняемость рубца является одним из факторов, ограничивающих максимальное потребление сухого вещества новотельными молочными коровами. Даже если потребление сухого вещества максимально, коровы, выведенные для производства высокого молока (например, североамериканские голштины), выборочно используют все доступные питательные вещества для производства молока в ущерб упитанности.65 Таким образом, распределение питательных веществ предотвращает прекращение катаболического состояния коров, поскольку вся доступная глюкоза в первую очередь используется для синтеза молока.75 Несмотря на успехи, достигнутые в кормлении молочных коров и доступность высокоточного программного обеспечения для балансировки рациона, удовлетворение всех энергетических потребностей лактирующей молочной коровы продолжает оставаться проблемой, вводящей коров в состояние отрицательного энергетического баланса, которое длится в течение 10– 12 недель после отела.11
Молочные коровы с отрицательным энергетическим балансом имеют более низкие концентрации инсулина и инсулиноподобного фактора роста IGF-1 в крови. Низкие циркулирующие концентрации IGF-1 ослабляют отрицательную обратную связь с гормоном роста (GH), что приводит к увеличению концентрации GH.
