
SC
35 8.5
TVCD
TVCF
7.5
30
6.5
25
5.5
20
4.5
15
3.5
10
2.5
5 1.5
10 14 18 22 26 30 34 38 42 46 50 54 58 62 66 70
Возраст (недели)
SC
35 8.5
TVCD
TVCF
7.5
30
6.5
25
5.5
20
4.5
15
3.5
10
2.5
5 1.5
10 14 18 22 26 30 34 38 42 46 50 54 58 62 66 70
Возраст (недели)
Толщина жировой ткани в области сосудистого конуса (mm)
Окружность мошонки/диаметр сосудистого конуса (mm)
Толщина жировой ткани в области сосудистого конуса (mm)
Окружность мошонки/диаметр сосудистого конуса (mm)
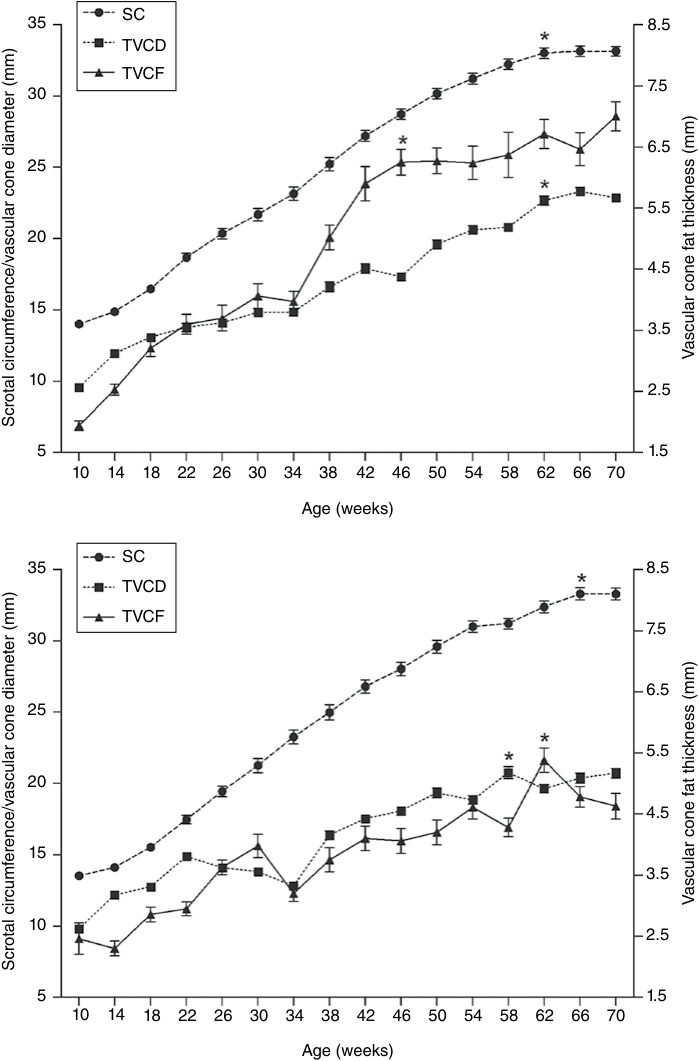
Рисунок 5.9 Средние значения (± стандартная ошибка среднего) окружности мошонки (SC), диаметра сосудистого конуса семенника (TVCD) и толщины жировой ткани в области сосудистого конуса (TVCF) у быков пород ангус и ангус × шароле в возрасте 2 лет ( сверху : n = 37; снизу : n = 33). Диаметр сосудистого конуса семенника увеличивался с возрастом по мере развития семенника, тогда как толщина жировой ткани в области сосудистого конуса увеличивалась по закономерности, сходной с наблюдаемой для толщины подкожного жира на спине. Звёздочки в верхнем индексе при средних значениях обозначают последнее значимое ( P < 0.05) изменение с возрастом. Адаптировано по: Brito L, Barth A, Wilde R, Kastelic J. Развитие сосудистого конуса семенника и его связь с температурой мошонки, качеством спермы и продукцией сперматозоидов у быков мясных пород. Anim Reprod Sci 2012;134:135–140. Публикуется с разрешения Elsevier.
в результате истончения стенки артерии (317 и 195 мкм в возрасте 6 и 36 месяцев соответственно) и сокращения расстояния между артерией и ближайшими венами.62
Придаток семенника у быков голштинской породы продолжает расти по меньшей мере до 6-летнего возраста, а его масса увеличивается с 9 g в возрасте 8 месяцев до 15, 23, 27 и 38 g в возрасте 12,
18, 25–48 и 73–96 месяцев соответственно.48,66 Наибольший размер хвоста придатка семенника, измеренный при ультразвуковом исследовании в косой плоскости вблизи нижнего полюса семенника у быков фризской породы, увеличивался с 0.9 cm в возрасте 3 месяцев до 1.8 и 2.7 cm в возрасте 12 и 24 месяцев соответственно.67 Трубчатые пузырьковидные железы у новорождённых
телят по мере развития удлиняются и приобретают дольчатое строение. Масса пузырьковидных желёз у быков голштинской породы увеличивалась примерно до 4-летнего возраста: с 13 g в возрасте 8 месяцев до 26, 35, 54 и 78 g в возрасте 12, 18, 25–48 и 73–96 месяцев соответственно.48,66 Максимальный диаметр пузырьковидных желёз у быков фризской породы значимо увеличивался лишь между возрастом 3 месяцев (1.1 cm) и 9 месяцев (1.6 cm), что позволяет предположить, что дальнейший прирост массы желёз обусловлен их удлинением.67 Диаметр предстательной железы также значимо увеличивался лишь до возраста 12 месяцев (до 0.85 cm с 0.49 cm в возрасте 3 месяцев), тогда как максимальный диаметр бульбоуретральных желёз увеличивался с 1.2 cm в возрасте 3 месяцев до 1.5 и 2.1 cm в возрасте 12 и 24 месяцев соответственно.67
У быков вида Bos taurus сигмовидный изгиб полового члена начинает формироваться примерно в возрасте 3 месяцев; к наступлению половой зрелости длина полового члена увеличивается до пяти раз и продолжает увеличиваться до достижения полной половой зрелости.68 Длина полового члена у быков фризской породы в возрасте 13–19 месяцев составляла 73–89 cm,69 тогда как у быков голштинской породы в возрасте 25 месяцев и старше она составляла 95–106 cm.66 Первое выведение полового члена из препуция при садке наблюдали примерно в возрасте 8 месяцев, тогда как полное отделение полового члена от препуция у быков пород ангус, шароле и герефорд наблюдали примерно в возрасте 8.5 месяцев.44,70 Полное отделение препуция от полового члена, оцениваемое при электроэякуляции, наблюдали примерно ко времени наступления половой зрелости, тогда как первое завершённое спаривание при проверке полового влечения отмечали лишь приблизительно через 1 месяц после её наступления.45
Развитие полового поведения
Развитие полового поведения изучали у быков герефордской породы. Садки в ответ на присутствие самки в состоянии половой охоты впервые наблюдали к возрасту 3, 6 и 9 месяцев у 18.5, 26 и 48% быков соответственно. К возрасту 12 месяцев первая эякуляция произошла у 59% быков, тогда как к 15 месяцам завершённое спаривание было зарегистрировано у 78% быков. Число спариваний увеличивалось с возрастом до 18 месяцев.71 У быков пород ангус, бурая швицкая, герефорд, ангус × герефорд и красная безрогая первое завершённое спаривание наблюдали примерно в возрасте 11 месяцев.45 По-видимому, условия выращивания влияют на развитие полового поведения: телята герефордской породы, выращенные в индивидуальных загонах, при первом испытании совершали больше спариваний, чем быки, выращенные в группах, хотя после объединения этих быков различия быстро исчезали.72 В другом исследовании оценивали влияние присутствия самок во время выращивания быков. За первые 2 часов контакта с самками в состоянии половой охоты самцы, выращенные вместе с самками, совершили на 73% больше спариваний, чем быки, выращенные изолированно. Однако в последующих испытаниях быки, выращенные изолированно, показали сопоставимые результаты, что свидетельствует о довольно быстром обучении после контакта с самками.73
Возраст и опыт оказывают существенное влияние на результаты проверки полового влечения и способности к спариванию. В нескольких исследованиях при повторном тестировании годовалых быков через относительно короткие промежутки времени отмечалось общее повышение оценок, указывающее на то, что созревание и/или
обучение после контакта быков с самками происходит быстро. Контакт годовалых быков, отнесённых к категории с низкой способностью к спариванию, с самками в состоянии половой охоты в течение 4 дней приводил к повышению оценки этой способности при повторном испытании в течение следующей недели; 85% этих быков перешли в категорию со средней или высокой способностью к спариванию.74 У быков герефордской породы не выявили корреляции между числом спариваний в возрасте 12 месяцев и половым поведением в более старшем возрасте. Лишь по достижении быками возраста 18 месяцев индивидуальные различия в способности к спариванию оставались устойчивыми при переходе от одного возраста к другому, то есть в 18, 21 и 24 месяцев.75 В одном исследовании лишь 53% из 113 годовалых быков завершили спаривание за 10 мин проверки полового влечения,76 тогда как в другом исследовании годовалых быков пород ангус и герефорд разброс оценок, полученных в ходе восьми проверок полового влечения за 2-месячный период, составлял от 69 до 73%.77 Эти наблюдения позволяют предположить, что попытки прогнозировать половую активность, вероятно, будут безрезультатными до тех пор, пока быки не смогут в полной мере проявить свойственные им половое поведение и способность к спариванию. При оценке взрослых быков породы ангус время, необходимое для совершения шести спариваний при индивидуальном контакте с 10 самками в состоянии половой охоты, увеличивалось с возрастом: с 31 мин у быков в возрасте 2 лет до 43, 55 и 67 мин у быков в возрасте 3, 4 и 5 лет соответственно.78 Однако в другом исследовании различий в оценках полового влечения или результатах проверки способности к спариванию между быками пород ангус и герефорд в возрасте 2 и 3 лет не наблюдали.79
Влияние питания на половое развитие
Влияние питания от рождения до достижения зрелости на половое развитие и репродуктивную функцию быков оценивалось лишь в очень немногих исследованиях. У быков голштинской породы, с рождения получавших недостаточное питание (около 60–70% от потребности), первые эякуляты, содержащие подвижные сперматозоиды, получали в более позднем возрасте, а семенники были меньше. Напротив, у быков, получавших обильное питание (около 160% от потребности), половая зрелость наступала раньше и семенники были крупнее, чем у быков с контрольным уровнем питания (100% от потребности).80, 81 Эти наблюдения были подтверждены и дополнены в серии более поздних экспериментов, которые также показали, что наиболее выраженное влияние питание оказывает в допубертатный период. Эти исследования продемонстрировали, что неблагоприятные последствия недостаточного питания в допубертатный период нельзя компенсировать улучшением питания в период полового созревания, а благоприятное действие обильного питания в допубертатный период сохраняется, даже если впоследствии животных кормят рационами, обеспечивающими лишь поддержание жизнедеятельности. Недостаточное питание быков мясных пород в околопубертатный период снижало секрецию гонадотропинов, задерживало повышение концентрации тестостерона в крови и наступление половой зрелости и приводило к уменьшению размеров семенников в возрасте 16 месяцев, тогда как обильное питание давало противоположные результаты,82–84
Влияние питания на половое развитие и репродуктивную функцию быков опосредуется гипоталамо-гипофизарно-тестикулярной осью. Питание влияет на генератор импульсов гонадотропин-рилизинг-гормона (GnRH) в гипоталамусе, поскольку различия в импульсной секреции лютеинизирующего
гормона (LH) у быков с разным уровнем питания можно наблюдать даже при отсутствии различий в способности гипофиза секретировать LH, определяемой с помощью пробы с GnRH.83,84 Интересно, однако, что при ограничении питания быков путём снижения содержания питательных веществ в рационе, скармливаемом вволю , наблюдали только снижение частоты импульсов секреции LH, тогда как при ограничении питания путём сокращения доступного количества корма снижались частота импульсов секреции LH, средняя и пиковая концентрации LH, а также его секреция в ответ на введение GnRH.82 Эти результаты, по-видимому, указывают на то, что ограниченная доступность питательных веществ тормозит секрецию LH только на уровне гипоталамуса, тогда как сочетание ограниченной доступности питательных веществ и чувства голода, испытываемого быками при ограниченном потреблении корма, влияет на функции и гипоталамуса, и гипофиза, вызывая гораздо более сильное подавление секреции LH. Влияние питания на число и/или функцию клеток Лейдига у быков, получавших разные рационы, проявлялось в различиях секреции тестостерона в ответ на введение GnRH даже при отсутствии различий в секреции LH после введения GnRH.83,84
Различия в окружности мошонки годовалых быков мясных пород, обусловленные возрастом матери, также можно рассматривать как указание на то, что питание до отъёма влияет на половое развитие, хотя возможное влияние внутриутробных факторов нельзя полностью исключить. Окружность мошонки у быков мясных пород вида Bos taurus увеличивается с возрастом матери до достижения ею 5–9 лет, а у более старых матерей уменьшается. Для окружности мошонки годовалых быков, выращенных матерями в возрасте 2, 3, 4 и ≥10 лет соответственно, предложены поправочные коэффициенты 0.7–1.4, 0.2–1.0, 0.1–1.0 и 0.3–0.75 cm.18–22,85 В этих исследованиях включение массы тела в качестве ковариаты в модели, описывающие окружность мошонки, уменьшало выраженность влияния возраста матери. Это указывает на то, что влияние возраста матери на рост семенников, по-видимому, в основном обусловлено его влиянием на массу тела быка, вероятно связанным с различиями в молочной продуктивности. Эту гипотезу также подтверждают сообщения о том, что, как и у быков с недостаточным питанием, секреция LH в ответ на введение GnRH в возрасте от 3.5 до 6 месяцев была выше у быков, выращенных многократно телившимися самками, чем у быков, выращенных первотёлками.86
В ряде опубликованных исследований описано влияние питания только в период полового созревания, то есть после первоначальных гормональных изменений, регулирующих половое развитие. В целом эти исследования показывают, что недостаточное питание неблагоприятно влияет на рост и половое развитие. В одном исследовании у быков, получавших треть количества корма, предоставляемого их близнецам из контрольной группы, были ниже масса тела и масса пузырьковидных желёз, содержание фруктозы и лимонной кислоты в пузырьковидных железах, а также концентрации тестостерона в крови и семенниках, тогда как концентрация андростендиона в крови была повышена.87 В другой серии экспериментов у быков мясных пород в возрасте 8–12 месяцев, получавших в течение 3–6 месяцев рационы с низким содержанием сырого протеина (8, 5 и 1.5%), масса семенников, их придатков и семенных желёз была значительно ниже, чем у быков контрольной группы, получавших рационы с содержанием сырого протеина 14%. Кроме того, у быков с ограниченным потреблением протеина были меньше диаметр семенных канальцев и толщина сперматогенного эпителия.88,89
Хотя недостаточное питание в период полового созревания отрицательно влияет на репродуктивную функцию, возможная польза усиленного питания после отъёма в лучшем случае сомнительна. В исследовании быков симментальской и герефордской пород, получавших с 7 до 14 месяцев рационы с низким, средним или высоким содержанием энергии (приблизительно 14, 18 и 23 Mcal/day соответственно), влияние энергетической обеспеченности на половое развитие было неодинаковым. Содержание энергии в рационе влияло на половое развитие симментальских быков, но не герефордских. Симментальские быки из группы с высокоэнергетическим рационом были тяжелее, имели большую окружность мошонки и более высокую концентрацию тестостерона, чем быки из группы с низкоэнергетическим рационом (показатели группы со средней энергетической обеспеченностью в целом занимали промежуточное положение). Однако увеличение содержания энергии в рационе не ускоряло наступление половой зрелости. Единственным показателем спермы, на который влияло содержание энергии в рационе, был объём эякулята: у симментальских быков из группы со средней энергетической обеспеченностью он был снижен. У герефордских быков на высокоэнергетическом рационе способность к садке была выше, однако у симментальских быков рационы со средним и высоким содержанием энергии были связаны со снижением числа садок между двумя периодами испытаний. У симментальских быков, получавших низкоэнергетический рацион, отмечалась тенденция к снижению подвижности сперматозоидов и доли сперматозоидов с нормальной морфологией.90,91
У быков голштинской породы, от которых получали сперму для искусственного осеменения, высокое потребление энергии после 3 лет сопровождалось видимыми признаками слабости конечностей и увеличением времени реакции.81В производственных условиях высокоэнергетические рационы после отъёма часто связаны с нарушением репродуктивной функции у быков, вероятно вследствие изменения терморегуляции семенников из-за избыточного отложения жира над семенниками и вокруг них в мошонке. Согласно одному сообщению, у герефордских быков, которых кормили с расчётом на прирост более 1.75 kg/day, с возрастом снижалась подвижность сперматозоидов и увеличивалась доля сперматозоидов с дефектами. Эти показатели достоверно отличались от показателей быков, которых кормили с расчётом на прирост приблизительно 1 kg/day (контрольная группа). Даже после перевода быков с усиленного питания на контрольный рацион качество спермы у них оставалось ниже. У быков из группы усиленного питания вокруг сосудистого конуса семенника в области шейки мошонки откладывалось больше жира, а разница между температурой тела и семенников была меньше, чем у быков контрольной группы. Эта разница сохранялась и после изменения высокоэнергетического рациона, когда быки значительно потеряли в весе. Это указывает на то, что от жира, накопившегося в мошонке, избавиться труднее, чем от жира в других частях тела.92
В другой серии экспериментов быки ангусской, герефордской и симментальской пород приблизительно с 6.5 до 12–24 месяцев получали рацион с высоким уровнем питания (80% зерна и 20% кормовых растений) или со средним уровнем питания (только кормовые растения). В целом быки, получавшие усиленное питание, имели большую массу тела и толщину подкожного жира на спине, однако масса обоих семенников от рациона не зависела. Кроме того, у быков на усиленном питании были ниже суточная выработка сперматозоидов и их запасы в придатках семенников, а доля сперматозоидов с аномалиями была выше. Авторы указали, что увеличение содержания энергии в рационе может отрицательно влиять на выработку сперматозоидов и качество спермы из-за отложения жира в мошонке. Это уменьшает отдачу тепла через кожу мошонки и тем самым повышает температуру семенников и
