
число жизнеспособных клеток, поэтому признаки, из-за которых эмбрионам присваивают более низкие категории качества, после такого цикла становятся более выраженными. Таким образом, криоконсервацию обычно применяют только к эмбрионам более высоких категорий качества (категории 1 или 2).
Хотя стадия развития влияет на криоконсервацию эмбрионов некоторых видов (например, человека, свиньи и лошади), при обычной пересадке эмбрионов она не имеет большого значения для криоконсервации эмбрионов крупного рогатого скота. У эмбрионов крупного рогатого скота наблюдались различия в способности переживать криоконсервацию в зависимости от стадии развития,4 однако эмбрионы на всех стадиях, обычно получаемые при нехирургическом извлечении на 7-й день (при этом 0-й день — день наблюдаемой или ожидаемой охоты), одинаково хорошо переживают криоконсервацию. Возможное исключение составляют вылупившиеся бластоцисты, которые, по наблюдениям, плохо переносят криоконсервацию. На 7-й день у крупного рогатого скота вылупившиеся бластоцисты обычно не получают, но иногда их обнаруживают, если извлечение откладывают до 8-го дня.
Криопротекторы
Криопротектором называют любое вещество, способствующее выживанию клеток при замораживании и оттаивании. Криопротекторы можно разделить на две основные группы: проникающие и непроникающие. Проникающие криопротекторы проходят через клеточную мембрану и действуют внутри клетки. Эти соединения имеют низкую молекулярную массу и полярную структуру молекулы, благодаря которой могут имитировать воду. При медленном, или традиционном, замораживании эмбрионов крупного рогатого скота обычно используют один из двух проникающих криопротекторов: глицерин или этиленгликоль (EG). Для витрификации в качестве проникающих криопротекторов часто используют глицерин и EG, а также диметилсульфоксид (DMSO) и изопропиловый спирт. Непроникающие криопротекторы не проходят через клеточную мембрану и действуют вне клетки. Эти соединения влияют на осмолярность раствора для замораживания и способствуют стабилизации мембраны. Как правило, это сахара, в том числе сахароза, галактоза и трегалоза. Обычно такие криопротекторы не включают в растворы для медленного замораживания, но часто используют для регулирования перемещения воды через клеточную мембрану после оттаивания (об этом речь пойдет ниже). Непроникающие криопротекторы часто включают в растворы для витрификации. Растворы для медленного замораживания обычно содержат только один криопротектор, а растворы для витрификации — несколько.
Растворы для замораживания готовят, добавляя криопротектор в буферный раствор. Традиционно для этого используют фосфатно-солевой буфер с добавлением сыворотки или бычьего сывороточного альбумина (BSA). В последнее время в продаже появились готовые растворы для замораживания. В них вместо фосфатного буфера часто используют цвиттер-ионный буфер, например MOPS или HEPES, а вместо сыворотки или BSA — синтетическую макромолекулу, например поливиниловый спирт. Последняя замена крайне важна для международного перемещения криоконсервированных эмбрионов. Проникающие криопротекторы обычно добавляют в концентрации 1.4 mol/L для глицерина или 1.5 mol/L для EG.
Медленное замораживание
При методе криоконсервации, обычно называемом медленным замораживанием, температуру снижают медленно или с контролируемой скоростью, чтобы кристаллы льда росли вне клеток и вытягивали из них воду, а внутри клеток кристаллы не образовывались. Как отмечалось выше, это название не вполне точно: медленное охлаждение продолжается лишь короткое время, после чего происходит очень быстрое охлаждение и витрификация оставшейся воды. Скорость охлаждения необходимо каким-либо образом контролировать; обычно для этого используют тот или иной электронный аппарат для замораживания.
Добавление криопротекторов
Описанные выше растворы для замораживания явно гипертоничны: при первом контакте с ними клетки сжимаются, а затем медленно возвращаются к исходному размеру по мере проникновения криопротекторов внутрь. Первоначально считалось, что такой осмотический стресс снижает жизнеспособность эмбрионов, поэтому их помещали в растворы криопротекторов поэтапно. Эмпирические исследования показали, что поэтапное добавление криопротектора не требуется. Особенно это справедливо для EG. Эмбрионы помещают в раствор для замораживания и выдерживают до установления равновесия с криопротектором. Поскольку в такой концентрации криопротекторы не обладают высокой токсичностью, точная продолжительность выдержки не имеет решающего значения: установление равновесия продолжается, пока эмбрионы «загружают» в соответствующую «упаковку», а также в начале замораживания. Помещенные в раствор для замораживания эмбрионы сначала плавают из-за гипертоничности раствора, а затем медленно опускаются по мере проникновения криопротекторов в клетки. Обычно загружать эмбрионы начинают, как только они опустятся на дно чашки; перед началом замораживания их выдерживают для установления равновесия не менее 10 мин.
Упаковка эмбрионов для криоконсервации
Контейнер, в который загружают эмбрионы для замораживания, должен отвечать нескольким требованиям. Его материал должен эффективно проводить тепло и выдерживать перепад от температуры тела до температуры жидкого азота (LN). Желательно также, чтобы контейнер было удобно маркировать и чтобы он не занимал слишком много места при хранении в LN. Криоконсервированные эмбрионы хранят в жидкой фазе LN, где пространство ограничено, поэтому важно, чтобы LN не проникал внутрь контейнера. Если при хранении LN попадет в контейнер, быстрое нагревание при оттаивании может повредить контейнер и привести к потере эмбрионов. На начальном этапе применения криоконсервированных эмбрионов крупного рогатого скота для пересадки часто использовали стеклянные ампулы, помещая в каждую по несколько эмбрионов. Однако из-за медленной теплопередачи, особенно при оттаивании, и большого объема, занимаемого стеклянными ампулами в LN, для этой цели вскоре стали применять пайеты для спермы. По мере распространения метода криоконсервации с «непосредственной пересадкой» (рассматривается ниже) предпочтительным контейнером стала пайета для спермы 0.25-mL. При непосредственной пересадке контейнер для криоконсервации используют и для пересадки, поэтому в каждом
Пайета Воздушный промежуток Эмбрион Герметизирующая
пробка
в среде для
замораживания
Среда для замораживания Среда для замораживания
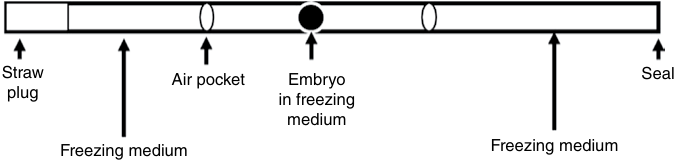
Рисунок 77.1 Эмбрионы в пайетах со средой для замораживания, разделенной небольшими воздушными промежутками, или «пузырьками воздуха».
контейнере находится один эмбрион. Эмбрионы загружают в пайеты, втягивая несколько столбиков среды для замораживания, разделенных небольшими воздушными промежутками, или «пузырьками воздуха». Первый столбик не содержит эмбриона и герметизирует конец пайеты с пробкой. Во втором столбике находится эмбрион; от первого и третьего столбиков он отделен воздушными промежутками (рисунок 77.1).
Один из важных аспектов упаковки эмбрионов для замораживания — возможность их маркировки. Объем сведений, необходимых для надлежащей маркировки криоконсервированных эмбрионов, может значительно различаться. Руководство IETS рекомендует указывать определенные сведения о криоконсервированных эмбрионах. Как минимум следует указать отца и мать эмбриона и дату его замораживания. Дополнительно можно указать специалиста или компанию, проводивших замораживание, породы отца и матери, регистрационные номера, а также стадию развития и категорию качества эмбриона на момент замораживания. IETS предоставляет своим членам «коды замораживания», по которым можно определить специалиста или компанию, проводивших замораживание. Эти сведения можно напечатать непосредственно на пайете. Существуют принтеры для печати на пайетах, но при работе с эмбрионами их используют нечасто, поскольку сведения могут быть индивидуальными для каждого эмбриона. Надпись можно нанести от руки, но тогда она может оказаться неразборчивой. Один из способов маркировки — термосваркой прикрепить пайету 0.5-mL к пайете 0.25-mL и нанести маркировку на пайету 0.5-mL. Другой способ — использовать пластиковые стержни для идентификации и герметизации. Такие стержни крепятся к концу пайеты для спермы и могут служить для маркировки. В обоих случаях сведения можно напечатать на самоклеящихся этикетках и обернуть ими маркировочную пайету или пробку. Не рекомендуется наклеивать этикетки на пайету с эмбрионом: это может препятствовать эффективной теплопередаче при замораживании и оттаивании. Еще одно преимущество размещения маркировки отдельно от пайеты с эмбрионом состоит в том, что ее можно прочитать, не извлекая пайету с эмбрионом из LN.
Процесс замораживания
Медленное замораживание часто называют замораживанием с контролируемой скоростью, поскольку на большей части процесса скорость охлаждения контролируют. Выдержку для установления равновесия с криопротектором и упаковку для замораживания обычно проводят при температуре окружающей среды, или комнатной температуре. После того как эмбрионы загружены в пайеты, пайеты надлежащим образом промаркированы и герметизированы, температуру снижают до уровня на 1 или 2 °C ниже фактической температуры замерзания раствора для замораживания. Для обычно используемых растворов эта температура составляет приблизительно –6 °C. Поскольку льда еще нет
образования кристаллов льда на этом этапе, скорость охлаждения в течение этой фазы не имеет значения. Обычно эмбрионы помещают в соответствующие контейнеры в аппарат для замораживания с регулируемой скоростью охлаждения и снижают температуру на 1–2 °C в минуту до целевой температуры –6 °C. Затем в растворе для замораживания вызывают образование кристаллов льда — процесс, называемый «затравкой». Затравка, как правило, необходима, поскольку при таком охлаждении растворы переохлаждаются и остаются жидкими при температуре ниже истинной точки замерзания. Если допустить переохлаждение, то в момент начала образования кристаллов льда температура на короткое время резко снизится. Скорость этого снижения может легко превысить скорость, при которой вода успевает выходить из клеток, и внутри клеток образуются кристаллы льда. Образование кристаллов льда инициируют при температуре на 1 или 2 °C ниже истинной точки замерзания, охлаждая раствор в части контейнера, удалённой от эмбриона. Прикосновение к контейнеру пинцетом, охлаждённым в жидком азоте, или ватным тампоном, смоченным жидким азотом, — простой и эффективный способ вызвать образование кристаллов льда при условии, что температура остаётся немного ниже температуры замерзания раствора. После затравки температуру поддерживают в течение нескольких минут, чтобы между клетками эмбриона и раствором для замораживания, содержащим кристаллы льда, установилось осмотическое равновесие. Затем начинается собственно замораживание с регулируемой скоростью: температуру снижают со скоростью 0.3–0.5 °C в минуту. Во время этой фазы кристаллы льда растут в растворе вне клеток и вытягивают из них воду. Скорость охлаждения, при которой вода успевает выходить из клеток без образования кристаллов льда внутри них, определяется сочетанием проницаемости мембраны и размера клеток. Для клеток эмбриона крупного рогатого скота на стадии от морулы до бластоцисты эта скорость охлаждения составляет 0.3–0.5 °C. Охлаждение с регулируемой скоростью продолжают примерно до –35 °C. К этому моменту количество воды уменьшается настолько, а концентрации криопротектора и солей становятся достаточно высокими, чтобы при быстром снижении температуры произошла витрификация. После короткого периода уравновешивания при –35 °C температуру резко снижают, непосредственно погружая контейнер в жидкий азот. Охлаждение с регулируемой скоростью прекращают при температуре, допускающей витрификацию, поскольку наряду с концентрацией криопротектора повышается и концентрация солей. Продолжение охлаждения с регулируемой скоростью усиливает повреждение клеток вследствие ионного стресса и токсического действия криопротектора. После охлаждения эмбрионов до температуры жидкого азота их хранят в его жидкой фазе до размораживания. Разработано множество аппаратов для замораживания эмбрионов, некоторые из них выпускаются серийно. В большинстве таких аппаратов для охлаждения используют жидкий азот, а скорость охлаждения регулируют подводом тепла. Серийно выпускаемые аппараты оснащены тем или иным компьютерным интерфейсом, позволяющим регулировать скорость охлаждения в соответствии с программой замораживания, заданной оператором.
Размораживание
Хотя на начальном этапе охлаждение проводят медленно, на заключительном этапе применяют высокую скорость охлаждения, в результате чего оставшаяся в клетках вода витрифицируется. Поэтому размораживание должно быть быстрым. При медленном размораживании образуются кристаллы льда, вызывающие повреждение клеток. Быстрое нагревание обеспечивают погружением контейнеров в тёплую воду (35–37 °C) до полного таяния льда. Замечено, что если быстрое нагревание начинают непосредственно после извлечения из жидкой фазы азота, часто повреждается блестящая оболочка эмбриона. Эмпирические исследования показали, что нагревание на воздухе в течение примерно 30 с перед переносом в тёплую воду снижает частоту повреждения блестящей оболочки. При этом прохождение критического диапазона температур выше примерно –60 °C остаётся быстрым, что позволяет избежать повреждения клеток вследствие образования кристаллов льда при размораживании.
Удаление криопротектора
С самого начала применения криоконсервации эмбрионов для трансплантации эмбрионов крупного рогатого скота удаление криопротекторов после размораживания оставалось одной из основных проблем. Она связана с тем, что вода проходит через биологические мембраны быстрее большинства криопротекторов. При удалении криопротекторов вода поступает в клетки быстрее, чем криопротектор выходит из них, вызывая набухание клеток. Клетки гораздо менее устойчивы к набуханию, чем к сжатию, а степень набухания при обычных концентрациях DMSO и глицерина может быть весьма губительной. Первоначально эту проблему обходили, удаляя криопротектор путём последовательного уравновешивания в растворах со всё более низкой его концентрацией. Применялись различные подходы с использованием сахарозы, в том числе «одноэтапный» метод, при котором используют раствор сахарозы с осмотическим давлением, равным осмотическому давлению раствора для замораживания.5 При таком подходе криопротектор может выходить из клеток без поступления в них воды, поэтому набухания не происходит. После удаления криопротектора эмбрионы можно поместить в физиологический раствор, и вода вновь поступит в клетки. При других подходах используют более низкие концентрации сахарозы,6 что позволяет удалять криопротектор в два этапа. Такой подход также предотвращает набухание клеток и ограничивает степень их сжатия и обезвоживания. Все эти подходы позволяют сохранить жизнеспособность криоконсервированных эмбрионов, однако требуют перемещения эмбрионов между разными растворами, а значит, на этапе между размораживанием и переносом необходимы определённые навыки работы с эмбрионами и соответствующее оборудование.
Прямой перенос
Методы предотвращения повреждения клеток при удалении криопротектора требуют перемещения эмбрионов между разными растворами. Поэтому при переносе криоконсервированных эмбрионов необходимы определённые навыки работы с эмбрионами и соответствующее оборудование. Описан ряд методов криоконсервации эмбрионов, при которых между размораживанием и переносом не требуется никаких дополнительных манипуляций. Это позволяет размораживать криоконсервированные эмбрионы и переносить их подходящим реципиентам в том же контейнере, в котором они
были заморожены; такой способ называют «прямым переносом». Описан ряд подходов с использованием сахарозы, однако в 1992 году Фёлкель и Ху7 сообщили, что криопротектор EG очень быстро проходит через мембраны клеток эмбриона крупного рогатого скота на 7-й день развития. Скорость его проникновения настолько высока, что эмбрионы, замороженные в растворе 1.5 mol/L EG, можно переносить непосредственно реципиентам без потери жизнеспособности. При такой концентрации EG является эффективным криопротектором, а отсутствие необходимости в манипуляциях между размораживанием и переносом позволяет избежать потери жизнеспособности из-за набухания клеток. Метод криоконсервации с использованием раствора для замораживания, содержащего 1.5 mol/L EG, стал стандартным в практике трансплантации эмбрионов крупного рогатого скота.
Витрификация
Метод криоконсервации, обычно называемый витрификацией, отличается от медленного замораживания в двух основных отношениях: (i) применяются более высокие концентрации криопротектора; (ii) очень быстрое охлаждение начинают при более высокой температуре. Конкретные процедуры витрификации существенно различаются, и «универсальный» метод витрификации эмбрионов крупного рогатого скота пока не разработан. Здесь рассматриваются только общие аспекты процедуры.
Растворы для витрификации
Чтобы витрификация происходила при сравнительно высоких температурах (20–25 °C), концентрация криопротектора должна быть выше, чем при описанном медленном замораживании. Большинство растворов для витрификации эмбрионов крупного рогатого скота содержат сочетание двух или более проникающих криопротекторов и непроникающего криопротектора, например сахарозы или трегалозы. Типичный раствор для витрификации эмбрионов крупного рогатого скота содержит 15–20% EG, 15–20% DMSO и 0.3– 0.5 mol/L сахарозы или трегалозы. Суммарная концентрация EG и DMSO как минимум втрое превышает концентрацию EG или глицерина, применяемую при медленном замораживании. Длительное воздействие криопротекторов в таких концентрациях может быть токсичным, поэтому эмбрионы последовательно подвергают воздействию растворов со всё более высокой концентрацией, а время выдержки в конечном растворе для витрификации ограничивают 40–45 с.
Быстрое охлаждение
Чтобы витрификация происходила при высоких температурах, скорость охлаждения должна быть очень высокой — порядка 1000 °C в минуту или выше. Для достижения такой скорости, даже при непосредственном погружении в жидкий азот, отношение площади поверхности к объёму должно быть выше, чем у соломины для спермы размером 0.25-mL. Один из способов увеличить это отношение — использование «открытой вытянутой соломины»,8 которую успешно применяют для витрификации эмбрионов крупного рогатого скота. Для её изготовления пластиковую соломину для спермы осторожно нагревают и вытягивают, значительно уменьшая её диаметр и тем самым увеличивая отношение площади поверхности к объёму. К другим средствам достижения сверхвысокой скорости охлаждения относятся Cryoloop™, Cryotop™, Cryoleaf™ и другие.9 Они представляют собой различные подложки или носители, на которых можно разместить эмбрион в минимальном количестве раствора для витрификации. Это обеспечивает
