
Ii
Aa
Um V
Ov
Uv
Uu
Uo
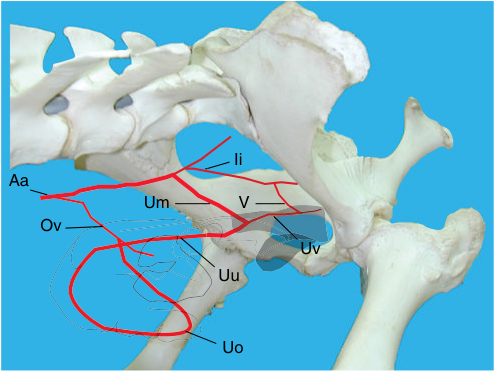
Рис. 21.11 Кровоснабжение: Аа - брюшная аорта; Оv - яичниковая артерия; Um - пупочная артерия; Ii - внутренняя подвздошная артерия; V - вагинальная артерия; Uv - маточная ветвь вагинальной артерии; Uu - маточная ветвь пупочной артерии; Uo - маточная ветвь яичниковой артерии.
Вагинальная артерия берет начало непосредственно из внутренней подвздошной артерии. Вагинальная артерия испускает маточную ветвь, которая анастомозируется с маточной ветвью пупочной артерии. Маточная артерия, образованная этим анастомозом, в свою очередь анастомозирует с маточной ветвью яичниковой артерии, завершая артериальную петлю, которая снабжает все внутренние компоненты репродуктивной системы. Внутренняя срамная артерия является прямым продолжением внутренней подвздошной артерии. Она идет каудально после того, как вагинальная артерия ответвляется в пределах седалищной ямки. Внутренняя срамная артерия оканчивается в виде вентральных промежностных и дорсальных губных ветвей.4
Плацента
Котиледонная ( десмохориальная ) плацента крс состоит из котиледонов плода и материнских карункулов, которые сливаются и образуют плацентомы.4 Плацентомы являются участками для передачи материнских питательных веществ в систему кровообращения плода. Мембраны плода состоят из двух заполненных жидкостью мешочков. Самым внутренним мешком является амнион, который окружает развивающийся зародыш; самым внешним мешочком является хориоаллантоис, который окружает амнион и состоит из двух отдельных слоев, которые сливаются по мере развития эмбриона. Наружный слой - это хорион, который развивается из трофобласта - наружного слоя бластоцисты эмбриона. По мере развития эмбриона аллантоис - мешочек, возникающий из задней кишки эмбриона, расширяется и в конечном итоге сливается с хорионом, образуя хориоаллантоис.
Ссылки
-
Ross M, Kaye G, Pawlina W.Гистология: учебник и атлас, 4-е изд. Филадельфия: Lippincott Williams & Wilkins, 2003, с. 875.
-
Schaller O, Constantinescu G.Иллюстрированная ветеринарная анатомическая номенклатура. Штутгарт: F. Enke Verlag, 1992, с. 614.
-
Budras KD.Анатомия крупного рогатого скота: иллюстрированный учебник. Ганновер, Германия: Schlütersche, 2003, с. 138.
-
Nickel R, Schummer A, Seiferle E, Sack WO.Внутренние органы домашних млекопитающих. Берлин: Verlag Paul Parey; Нью-Йорк: SpringerVerlag, 1973, с. 401.
-
Pineda M, Dooley M.Ветеринарная эндокринология и репродукция Макдональда, 5-е изд. Эймс, Айова: Iowa State Press, 2003, с. 597.
-
Mullins K, Saacke R.Иллюстрированная анатомия репродуктивных органов самцов и самок крупного рогатого скота: от макроскопического до микроскопического строения . Блэксберг, Виргиния: Germinal Dimensions, с. 79.
Иннервация наружных половых органов коровы состоит из срамного нерва и его ветвей. Срамной нерв несет двигательные, сенсорные и парасимпатические нервные волокна2 . Он проходит через полость таза, медиально к крестцово-седалищной связке, и разделяется по мере приближения к малой седалищной вырезке таза на проксимальные и дистальные кожные ветви, которые снабжают кожу ягодиц и бедра.2,3 Срамной нерв продолжается через седалищную ямку и оканчивается дорсальным нервом клитора и ветвью молочной железы3 .
Парасимпатические отделы срамного нерва проходят через тазовый нерв, который возникает как слияние ветвей крестцовых нервов позвоночника в крестцовом сплетении.4 Симпатические отделы срамного нерва возникают из парных подчревных нервов, которые отдают симпатические волокна из каудального брыжеечного сплетения к половой системе.4
Начало полового созревания телок
Charles T. Estill
Отделение клинических наук, Колледж ветеринарной медицины, Орегонский государственный университет, Корваллис, штат Орегон, США
Введение
Половое созревание является важной физиологической вехой в репродуктивной жизни телки. В общих чертах, половое созревание можно определить как процесс, при котором животные становятся способными к самовоспроизводству.1 В период полового созревания концентрации прогестерона в плазме указывают на циклическую активность яичников до первого наблюдаемого эструса. Таким образом, половое созревание определяется как первый день, когда уровень прогестерона в сыворотке крови (определяемый в образцах крови, собранных с недельными интервалами) превышает 1 нг / мл3 . Что касается телок, половое созревание у них было определено как первый эструс, за которым следует нормальная лютеиновая фаза.4 Это включает в себя сложную серию взаимодействий генетических факторов и факторов окружающей среды, которые направляют эндокринные процессы, достигающие кульминации в период полового созревания. У телок период полового созревания наступает, когда гипоталамус-гипофиз-гонадная ось впервые теряет чувствительность к эффектам отрицательной обратной связи эстрадиола-17β, вызывающего выброс лютеинизирующего гормона (ЛГ)4 . В настоящее время принято считать, что половое созревание и первая овуляция не обязательно совпадают, поскольку у большинства телок имею место «тихие» овуляции и короткие лютеиновые фазы во время перипубертатной фазы.4
Эндокринные процессы
Половое созревание включает в себя переход из ановулярного состояния в состояние регулярных овуляций. Механизм того, как ось гипоталамус-гипофиз теряет чувствительность к эффекту обратной связи с эстрадиолом-17β был предметом исследований в течение многих лет. Классическая теория «гонадостаза», первоначально разработанная на модели грызунов, кажется вполне применимой и к крупному рогатому скоту.5 Было высказано предположение, что первая овуляция возникает, когда чувствительность к стероидной отрицательной обратной связи уменьшается, что позволяет достаточному выходу гонадотропина стимулировать фолликулярное созревание. Гипоталамо-гипофизарная ось самки крупного рогатого скота в процессе своего развития претерпевает ряд изменений. Внутриутробно плод выделяет гонадотропины в течение первых 7 месяцев беременности. После этого периода уровень циркулирующих гонадотропинов существенно снижается под воздействием центральной нервной системы плода (ЦНС) .6
У овец было продемонстрировано, что вызванное ЦНС снижение выброса гонадотропина, которое происходит на позднем сроке беременности, опосредовано ингибированием N-метил-dl-аспартатных рецепторов, которые, как было показано, стимулируют ядро генератора импульсов гонадотропин-рилизинг-гормона (ГнРГ) в гипоталамусе плода.7 В постнатальном периоде средние концентрации ЛГ в плазме достигают максимума в возрасте около 3 месяцев, затем медленно снижаются, а затем снова повышаются и достигают кульминации к овуляции, как правило, в возрасте около 10–11 месяцев. Это раннее преходящее увеличение циркулирующей концентрации ЛГ связано с ранним развитием фолликулов, и как считается, чтобы регулировать время полового созревания. В попытке ускорить наступление половой зрелости Madgwick и соавт.9 инъекцировали телятам ГнРГ два раза в день в возрасте от 4 до 8 недель и отметили более раннее повышение концентрации ЛГ. Лечение ГнРГ увеличило средние циркулирующие концентрации ЛГ в возрасте 8 недель, частоту пульсации ЛГ в возрасте 4 и 8 недель и снизило средний возраст наступления пубертатного периода на 6 недель. Прибавка массы тела была выше у телят, получавших GnRH, чем у контрольных телят, и было показано, что скорость прибавки в весе является значительной ковариацией ( линейной зависимостью двух случайных величин ) с возрастом в период полового созревания. Это раннее преходящее повышение циркулирующего ЛГ стимулирует развитие фолликулов яичников, что приводит к синтезу эстрадиола-17β, который оказывает отрицательное влияние на секрецию гонадотропина. Хотя увеличение циркулирующего эстрадиола-17β не было продемонстрировано последовательно в течение этого периода времени,11,12 предполагается, что последующее снижение ЛГ связано с повышенной чувствительностью к воздействию отрицательной обратной связи эстрадиола-17β на гипоталамус-гипофиз.11,12 С этого момента и до полового созревания эстрадиол-17β продолжает поддерживать отрицательную обратную связь, после чего чувствительность постепенно снижается. Этот период известен как перипубертатный период и начинается примерно за 50 дней до полового созревания.10,13 Снижение чувствительности к отрицательной обратной связи эстрадиола-17β связано с уменьшением количества цитозольных рецепторов к эстрадиолу-17β в переднем и медиобазальном (туберальном, среднем ) отделе гипоталамуса.13 В результате эстрадиол-17β становится неэффективным в плане подавления секреции ЛГ, что приводит к предовуляционному всплеску ЛГ.14 В перипубертатном периоде уровни прогестерона очень низки (300 нг/мл), но есть два отчетливых повышения уровня прогестерона до первого преовуляторного пика ЛГ.15 После первого повышения уровня прогестерона и возврата его к базовым уровням всегда следует незначительный всплеск ЛГ, в то время как второе повышение уровня прогестерона предшествует пубертатному пику ЛГ.15
Профиль концентраций ЛГ между двумя основными пиками ЛГ, следующими за повышением уровня прогестерона, определяется как переход между препубертатной и постпубертатной базовой концентрацией ЛГ. Это говорит о том, что прогестерон играет ключевую роль в изменениях, ведущих к установлению фазового высвобождения ЛГ, характерного для постпубертатной телки.15 По совпадению, сигналы, связанные с ростом тела, контролируют и регулируют активность генератора импульсов ГнРГ. Когда достаточный размер тела/строение достигнут, частота импульсов ЛГ увеличивается, потому что снижается чувствительность к ингибирующей обратной связи эстрадиола-17β.10 Высокочастотные ЛГ импульсы стимулируют созревание фолликулов и рост уровня эстрадиола-17β, который ускоряет генерацию импульсов ГнРГ, что приводит к выбросу ЛГ и овуляции.16
Первая овуляция не является синонимом полового созревания, а первая лютеиновая фаза обычно короткая. За уменьшение продолжительности лютеиновой фазы (преждевременный лютеолиз) после первой овуляции у телок ответственен простагландин PGF2α, высвобождаемый эндометрием.17,18 Предположительно, это происходит из-за обилия рецепторов к окситоцину в эндометрии, которые обеспечивают высвобождение PGF2α.19 Впоследствии концентрация рецепторов к окситоцину снижается при воздействии прогестерона в течение 12–14 дней. Частота импульсов ЛГ увеличивается в течение 50 дней, предшествующих первой овуляции, и достигает примерно одного импульса в час во время первой овуляции.14 Амплитуда импульсов ЛГ также увеличивается в течение этого времени, но частота импульсов, по-видимому, является решающей для запуска овуляции.14 Концентрация фолликулостимулирующего гормона (ФСГ) в крови в перипубертатном периоде колеблется не так сильно, как ЛГ, что позволяет предположить, что ФСГ играет второстепенную роль в начале полового созревания.
Другие гормоны, несомненно, тоже играют роль в начале полового созревания, но ЛГ, по-видимому, имеет первостепенное значение. Пролактин может иметь значение в период полового созревания, но его концентрация в крови не изменяется в период полового созревания, как у быков. Существует множество свидетельств того, что телки действительно способны овулировать с самого раннего возраста, но не могут этого сделать из-за недостаточной гонадотропной стимуляции. На практике, McLeod и соавт.21 смогли индуцировать преовуляторные выбросы гонадотропина у обработанных ГнРГ 5-месячных телок. Еще более впечатляющим было исследование Seidel и соавт.22 , которое вызвало овуляцию у телок в возрасте 1 месяца после введения гонадотропина. Хотя овуляция может быть искусственно вызвана гонадотропинами, следует отметить, что гипоталамус-гипофиз становится все более чувствительным к стимуляции ГнРГ с приближением времени полового созревания. Было показано, что эффект от влияния положительной обратной связи эстрадиола-17β на выброс ЛГ становится функциональным в возрасте от 3 до 5 месяцев.23
В совокупности имеющиеся данные указывают на то, что телки способны овулировать задолго до полового созревания, но не могут делать это самопроизвольно до тех пор, пока ингибирующее действие эстрадиона-17β на высвобождение ГнРГ не уменьшится.
Развитие репродуктивного тракта
Общий рост тела и развитие репродуктивного тракта происходит в асинхронном режиме. Например, до полового созревания яичники растут со скоростью в 2,7 раза быстрее, чем туловище, тогда как трубчатый репродуктивный тракт растет
примерно с той же скоростью, что и тело, до возраста примерно 6 месяцев, а затем вступает в период ускоренного развития до полового созревания. Фолликулы яичников макроскопически не видны при рождении, но их число увеличивается до максимума к 4 месяцам, уменьшается до 8 месяцев и после этого остается относительно постоянным.24 Число растущих и антральных фолликулов увеличивается в течение первых 3-4 месяцев, что соответствует кратковременному увеличению концентрации циркулирующего ЛГ.
Рост эпителия в просвете трубчатого репродуктивного тракта стимулируется при рождении, но снижается к 1 или 2 месяцам. После этого увеличение высоты эпителия происходит наиболее быстро после 6 месяцев. Из этой информации можно сделать вывод, что, по крайней мере, для телок голштинской породы, быстрый перипубертатный рост репродуктивного тракта начинается в течение седьмого месяца и в основном прекращается к 10 месяцам.
Факторы, влияющие на возраст полового
созревания
Общеизвестно, что половое созревание у крупного рогатого скота происходит около 9 или 10 месяцев. Тем не менее, имеются сообщения о наступлении периода полового созревания в возрасте от 6 до 24 месяцев,1 с анекдотическими сообщениями об отелах телок в 13 месяцев, указывающими на то, что половое созревание может наступить уже в возрасте 4 месяцев. Возраст в период полового созревания зависит от массы тела и его состава, породы, питания, генетики и времени года. Любой неблагоприятный фактор, снижающий рост в препубертатном периоде, например, понос, пневмония, паразиты или суровые погодные условия, приводит к задержке наступления половой зрелости.
Вес и состав тела
Раннее исследование Sorensen26 показало, что на достижение половой зрелости у телок больше влияет вес, чем возраст. Он обнаружил, что телки на более высоком уровне питания достигают половой зрелости в более раннем возрасте, чем аналогичные телки с более низким среднесуточным приростом. Однако, у телок может быть одинаковый вес, но разный размер тела, что указывает на разный состав тела. При любом данном размере, более тяжелые телки достигают половой зрелости в более раннем возрасте. Вес тела в период полового созревания имеет коэффициент наследуемости 0,4027 . В целом, в период полового созревания телки, выращенные на рационах с более высокой питательностью, тяжелее, но моложе, чем животные, ограниченные в питании.28 Разницы в наступлении полового созревания не наблюдается при сходном составе тела или метаболическом статусе у всех телок29 , но оно положительно коррелирует с процентным содержанием телесного жира и отрицательно коррелирует с процентным содержанием влаги в туше.29 Точные механизмы, связанные с соотношением состава тела и периода полового созревания, четко не определены. Однако известно, что в этом участвуют соматотропин и система инсулиноподобного фактора роста (IGF) -I.
