
Однако исследования, в которых изучалась реакция на замену эстрадиола и ингибина у овариэктомизированных овец, указывают на то, что для полной блокировки подъема концентрации ФСГ после овариоэктомии необходима комбинация отрицательной обратной связи эстрадиола и ингибина.59 Дополнительные гормоны яичников также могут способствовать регуляции секреции ФСГ в течение эстрального цикла. Активин - димер ингибина β- субъединиц (βAβA, βAβB и βBβB) и фоллистатин - β-субъединицсвязывающий белок, продуцируются в фолликулярных клетках и могут регулировать секрецию ФСГ. Хотя эндокринная активность активина и фоллистатина овариального происхождения неясны, эти белки, так же как и ингибин, синтезируются в аденогипофизе и могут контролировать синтез и высвобождение ФСГ с помощью паракринных механизмов.60,61
Активин стимулирует синтез и высвобождение ФСГ, в то время как фоллистатин ингибирует действия активина, предотвращая связывание активина с рецептором. Ингибин, с другой стороны, нарушает действия активина, связываясь с рецептором активина и индуцируя внутриклеточную передачу сигналов через β-гликанопосредованный путь. Следовательно, постовуляторное повышение циркулирующих концентраций ФСГ, наблюдаемое вскоре после преовуляторных скачков ЛГ и ФСГ (рис. 23.1), в значительной степени объясняется изменениями в активности обратной связи гонадных гормонов на уровне аденогипофиза, которые следуют за исчезновением доминантного фолликула после овуляции и снижением циркулирующих концентраций эстрадиола и ингибина. Увеличение ФСГ в кровообращении в это время способствует рекрутированию (отбору) первой фолликулярной волны, наблюдаемой во время ранней лютеиновой фазы, и последующих волн в течение оставшейся части цикла.
Предполагается существование отдельной молекулы гипоталамического происхождения со способностью регулировать секрецию ФСГ. Доказательства в поддержку этой гипотезы включают наблюдения, согласно которым абляция ( разрушение) передних гипоталамических нейронов и их отростков нарушает высвобождение ФСГ без явного влияния на высвобождение ЛГ.62,63 Кроме того, у овец наблюдается блокирование секреции ЛГ без заметных эффектов на секрецию ФСГ после иммунизации против ГнРГ и ингибирования действия ГнРГ путем введения его антагонистов41,64 . Тем не менее, для подтверждения этой гипотезы потребуется выделение и идентификация молекулы, которая может быть охарактеризована как ФСГ-высвобождающий фактор, отличный от ГнРГ.
Влияние кормления на
гипоталамо-гонадотропную функцию
Пищевой контроль высвобождения гонадотропина происходит главным образом посредством регуляции высвобождения ГнРГ в срединном возвышении. Сильное ограничение питательных веществ подавляет секрецию ЛГ у репродуктивно зрелого и препубертатного крупного рогатого скота.65,66 Однако, кратковременное ограничение потребления корма оказывает дифференциальное ( различающееся) влияние на выброс гонадотропина у зрелых и незрелых коров. У коров 2–3 дня голодания не влияют на частоту пульсации ЛГ.66–68 У препубертатных телок, напротив, голодание в течение 48–72 часов снижает пульсацию ЛГ69,70 Гонадные стероиды оказывают заметное влияние на пищевую регуляцию выброса гонадотропина. Импульсное высвобождение ЛГ подавляется у овариоэктомированных крыс, обработанных эстрадиолом, голодавших в течение 48 часов.71 Однако, острое ограничение питания не подавляет секрецию ЛГ у овариоэктомированных крыс без заместительной обработки эстрадиолом.71
Таким образом, гонадальные стероидные гормоны взаимодействуют с пищевыми и метаболическими сигналами, регулируя высвобождение гонадотропина.
Исследования, в которых определялись концентрации ГнРГ в образцах крови, взятых из гипоталамо-гипофизарной портальной сосудистой сети у овец с нормальным и с ограниченным кормлением, продемонстрировали значительное снижение частоты импульсов ГнРГ в ответ на ограничение корма.72 Снижение частоты пульсации ЛГ было сильнее, чем снижение пульсации ГнРГ, потому что некоторые импульсы ГнРГ с низкой амплитудой не сопровождались импульсом ЛГ. Следовательно, уменьшенная амплитуда импульсов ГнРГ может также играть роль в общем снижении средних концентраций ЛГ, наблюдаемых во время недостаточного питания. Основным следствием низкой частоты стимуляции ГнРГ гонадотропов в ответ на пищевое ограничение является снижение синтеза рецепторов ЛГ и ГнРГ в аденогипофизе.
Импульсное введение ГнРГ овцам на ограниченном рационе восстанавливает циркулирующие концентрации ЛГ до нормы и увеличивает гипофизарную экспрессию генов ЛГ-β и ЛГ-α.74 Эти наблюдения согласуются с гипотезой о том, что высокая частота ГнРГ-стимуляции необходима для оптимальной экспрессии общей для аденогипофизарных гликопротеиновых гормонов α- субъединицы и специфической β-субъединицы ЛГ.75 Следовательно, в условиях низкого синтеза и накопления гонадотропинов в аденогипофизе и уменьшенного количества рецепторов к ГнРГ в гонадотропах, импульсов ГнРГ малой амплитуды может быть не достаточно, чтобы стимулировать четкий импульс ЛГ. Это можно объяснить тем, что некоторые импульсы ГнРГ малой амплитуды не сопровождаются эпизодом высвобождения ЛГ.72 Кроме того, возможно, что импульсы гонадолиберина малой амплитуды активируют аденогипофиз для повышения чувствительности к импульсам большой амплитуды, которые вызывают отчетливые эпизоды высвобождения гонадотропина.76
Пищевой и метаболический статус воспринимаются в основном на уровне гипоталамуса, хотя интеграция с сигналами, контролирующими другие области мозга и периферические органы, важна для точного контроля секреции и активности гонадотропина в тканях-мишенях. Сигналы, которые обеспечивают контроль за высвобождением гонадотропина, включают питательные вещества (например, глюкозу, жирные кислоты, аминокислоты) и метаболические гормоны (например, лептин, инсулин, грелин). Глюкоза служит основным источником энергии для центральной нервной системы и, наряду с жирными кислотами и аминокислотами, служит сигнальными молекулами для контроля клеточных метаболических путей.77-79 У овец индуцированная инсулином гипогликемия80 и лечение 2- дезоксиглюкозой81 - конкурентным антагонистом метаболизма глюкозы, ингибируют секрецию ЛГ. У крупного рогатого скота, гипогликемия, вызванная флоризином - ингибитором переносчика глюкозы, который увеличивает почечную экскрецию глюкозы, приводит к аналогичному снижению концентрации ЛГ.82 Хотя общепринято, что глюкоза необходима для нормальной функции гипоталамуса, механизмы, с помощью которых дефицит глюкозы ухудшает высвобождение ЛГ, неясны. Восстановление пульсирующей способности ЛГ у голодных обезьян происходит не только после кормления углеводами, которые повышают уровень циркулирующей глюкозы, но и после кормления белками/жирами, которые не повышают уровень глюкозы в крови.83 Аминокислоты и жирные кислоты, помимо того, что служат важными молекулами-предшественниками для клеточного биосинтеза, повидимому, также служат и в качестве сигнальных молекул для контроля репродуктивной нейроэндокринной функции.77
Контроль NPY
18 18 * ГнРГ пульсация
ингибирована
16 16
14 14
* * * *
12 12
10 10
8 8
6 6
4 4
2 2
0 0
10 * * * 10
8 8
6 6
4 4
2 2
0 0
0 120 240 0 120 240
Время (мин) Время (мин)
)ГнРГ (пг/мл
)ЛГ (нг/мл
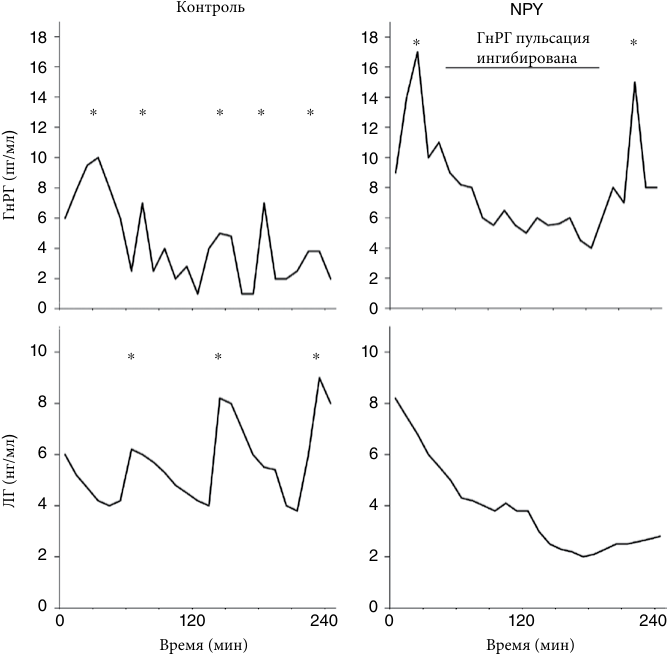
Рис. 23.5 Нейропептид Y (NPY) подавляет высвобождение гонадотропин-рилизинг-гормона (ГнРГ) у коров. Пульсирующее высвобождение ГнРГ (верхняя панель) и лютеинизирующего гормона (ЛГ) (нижняя панель) ингибируется после интрацеребровентрикулярного введения NPY (панели справа). Звездочкой обозначены обнаруженные импульсы ГнРГ и ЛГ. Модифицировано с разрешения Gazal и др.5
Глутамат и полученная из глутамата ГАМК (y (гамма)аминомасляная кислота) являются нейротрансмиттерами, которые воздействуют непосредственно на нейроны ГнРГ, регулируя их активность и высвобождение ГнРГ.84,85
Гормоны, такие как инсулин, инсулиноподобный фактор роста IGF-1, грелин и лептин, являются надежными маркерами качества кормления и, по-видимому, играют важную роль в опосредовании метаболического контроля секреции гонадотропина.86 Лептин - белковый гормон, синтезируемый и секретируемый главным образом адипоцитами, был тщательно исследован как метаболический сигнал, контролирующий репродуктивную нейроэндокринную функцию у различных видов животных, в том числе у крупного рогатого скота.87 Циркулирующие концентрации лептина положительно коррелируют с ожирением88 и увеличиваются с увеличением массы тела.89 Напротив, недостаточное питание снижает концентрацию лептина в кровотоке. Лечение лептином предотвращает вызванное голоданием уменьшение пульсации ЛГ у перипубертатных телок.70 Хоть у зрелых коров кратковременное голодание и не влияет на частоту высвобождения ЛГ, лептин усиливает секрецию ЛГ68 , воздействуя как на гипоталамус, увеличивая амплитуду импульса ГнРГ90 , так и на аденогипофиз, повышая его чувствительности к ГнРГ.91
Медиаторы действия лептина включают нейроны нейропептида Y (NPY) и проопиомеланокортина (POMC , кортикотропин-подобный иммунный пептид ) в дугообразном ядре. Эти нейроны содержат рецепторы к лептину.92 NPY является мощным стимулятором потребления корма, и ограничение корма увеличивает экспрессию гена NPY.93 Анорексигенное ( подавляющее аппетит) действие лептина, вероятно, связано с его способностью уменьшать экспрессию NPY.94 NPY ингибирует высвобождение ГнРГ у коров5 (Рисунок 23.5).
В отличие от своего ингибирующего воздействия на экспрессию гена NPY, лептин усиливает экспрессию POMC.95 Было показано, что один из пептидных продуктов гена POMC - α-меланоцит-стимулирующий гормон (α-MSH), также оказывает прямое стимулирующее действие на ГнРГнейроны.96 Таким образом, влияние лептина на стимуляцию секреции ГнРГ, по-видимому, включает подавление ингибирующего действия NPY и стимуляцию возбуждающих эффектов α-MSH. Хотя NPY и POMC, как полагают, являются основными путями, участвующими в контроле высвобождения ГнРГ, вполне вероятно, что другие нейронные сети вносят вклад в пищевой контроль репродуктивной нейроэндокринной функции.
Пубертатное развитие
Половое созревание - это процесс, посредством которого особи приобретают репродуктивную зрелость. Он включает физиологические и поведенческие изменения, которые в значительной степени обусловлены активацией функции половых желез. У самок млекопитающих активация гипоталамо-аденогипофизарной оси и последующее влияние гонадотропинов на функцию половых желез поддерживают усиленный фолликулогенез и стероидогенез (прежде всего синтез эстрадиола) и приводят к первой овуляции.97 Начало полового созревания характеризуется увеличением эпизодического высвобождения ЛГ в результате повышения частоты высвобождения ГнРГ и стимуляции им гонадотропов.98
Нейроэндокринология послеродового периода
Интересно, что экзогенное введение эстрадиола вызывает скачкообразное высвобождение ЛГ у самок в препубертатном возрасте99,100 , что указывает на то, что положительная обратная связь эстрадиола является функциональной еще до завершения репродуктивного созревания. Следовательно, основным ограничивающим фактором для начала полового созревания является отсутствие высокочастотного эпизодического высвобождения ЛГ, необходимого для усиленного синтеза эстрадиола, приводящего к преовуляторному выбросу ГнРГ и высвобождению ЛГ. В препубертатном периоде отрицательная обратная связь эстрадиола, ингибирующая эпизодическое высвобождение ЛГ, усиливается. Овариэктомия у препубертатных телок и, следовательо, удаление основного источника эстрадиола, приводит к быстрому увеличению циркулирующих концентраций ЛГ.101 Заместительная терапия эстрадиолом до физиологических уровней у овариэктомизированных телок предотвращает это увеличение и поддерживает пульсирующее высвобождение ЛГ на низких частотах. Приблизительно во время ожидаемого пубертатного перехода частота секреторных эпизодов ЛГ возрастает до частоты, сходной с периодичностью овариэктомированной телки, не получавшей экзогенного эстрадиола. Таким образом, предполагается, что снижение чувствительности к эстрадиольной отрицательной обратной связи во время пубертатного перехода приводит к увеличению эпизодического высвобождения ЛГ, характерного для зрелого состояния. Хотя механизмы, участвующие в снижении чувствительности к эстрадиольной отрицательной обратной связи, остаются неясными, они могут включать изменения в связывании эстрадиола в гипоталамусе.102 По последним наблюдениям популяция нейронов, которые синтезируют нейропептид кисспептин, участвует в опосредовании влияния эстрадиола на секрецию ГнРГ.105 Кисспептин является сильным секреторогенным (усиливающим секрецию) агентом ГнРГ/ЛГ.106,107 Кроме того, эстрадиол регулирует экспрессию гена, кодирующего кисспептин, вероятно, посредством прямого воздействия на нейроны кисспептина.103
Интервал от родов до возобновления цикличности яичников у самки крупного рогатого скота представляет физиологически обособленный, и экономически значимый период репродуктивного жизненного цикла. Поэтому неудивительно, что исследования, направленные на понимание
эпизодическогобиологической основы послеродовой ановуляции, были предметом усиленного синтезаинтенсивных исследований на протяжении более 50 лет.116–120 У коровы развитию и поддержанию состояния покоя яичников после родов способствуют три основных фактора: 1) заметное истощение обратная запасов ЛГ в передней доли гипофиза во время поздней беременности, 2) эпизодическое пищевой статус в перипартальный ( послеродовой) период и 3) подавление Овариэктомия у высокочастотных импульсов ГнРГ из-за сосания теленком вымени при основного наличии связи между матерью и потомством. Рисунок 23.6 суммирует увеличению влияние различных факторов, которые способствуют поддержанию Заместительная терапия ановуляции у послеродовой коровы и физиологических событий во время уровней у послеродовой ановуляции.
Истощение высвобождающих ЛГ пулов в аденогипофизе происходит как у овец, так и у коров в течение последней трети беременности и является вполне очевидным во время родов.12,121 В его основе лежит способность хронически повышенного эстрадиола плацентарного происхождения подавлять синтез гонадотропами передней доли гипофиза α- и β-субъединиц ЛГ и, в определенной степени, ФСГ.122,123 . Однако это, по-видимому, не обусловлено изменениями экспрессии мРНК для субъединиц гонадотропина. В экспериментах с овариэктомированными овцами, в которых моделировалась эстрогенная среда, характерная для поздних сроков беременности, содержание в гипофизе как в ЛГ, так и в ФСГ было заметно снижено, но количество мРНК для α-субъединицы или β-субъединицы ЛГ и ФСГ не изменилось или увеличилось. Более того, лечение экзогенным ГнРГ у этих овец не восстановило синтез гонадотропинов в гипофизе. Таким образом, был сделан вывод о том, что отрицательные эффекты от хронически повышенного эстрадиола находятся на более низком уровне, чем экспрессия мРНК и представляют собой посттрансляционную регуляцию синтеза гонадотропина.122,123 . При рассмотрении этой модели следует отметить, что у беременных коров
124
ни аденогипофизарная емкость, ни ФСГ- высвобождающие пулы39 в значительной степени не меняются в послеродовом периоде. Это может быть результатом более быстрого восстановления β-субъединицы ФСГ гонадотропами после родов.125 Таким образом, негативное влияние высоких циркулирующих концентраций эстрадиола во время беременности у коровы и в послеродовой период, в первую очередь опосредуется через воздействие на ЛГ.
Половое созревание у телок пород Bos taurus обычно происходит в возрасте приблизительно 10–15 месяцев. У пород Bos Indicus и их производных половое созревание обычно наступает позднее и в более широком интервале времени (15–27 месяцев).108,109 Однако, пубертатный возраст в значительной степени зависит от питания.110 Недоедание задерживает половое созревание у телок.65 Напротив, повышенный прирост массы тела в препубертатном периоде способствует наступлению половой зрелости.111–113 Ускорение полового созревания в ответ на увеличение прироста веса у телок было связано с более ранним снижением чувствительности к отрицательной обратной связи с эстрадиолом и ускорением перипубертальной активации репродуктивной нейроэндокринной оси.114 Как обсуждалось ранее в этой главе, пищевые сигналы, которые опосредуют диетологический контроль полового развития, включают питательные вещества и метаболические гормоны. Лептин, гормон, секретируемый главным образом адипоцитами, повидимому, является основным пермиссивным ( разрешающим) сигналом для прогрессирования пубертатного периода. У телок экспрессия гена лептина в жировой ткани и циркулирующие концентрации лептина увеличиваются по мере приближения полового созревания.89 Кроме того, вызванное голоданием снижение пульсирующей способности ЛГ предотвращается лечением лептином70 Однако, при хроническом введении лептина в препубертатном периоде у телок период полового созревания не наступает115 , что указывает на то, что лептин может быть необходим, но его одного недостаточно для развития половой зрелости у телок.
Хотя прогестерон также повышается во время беременности, он не оказывает значительного прямого влияния на гипофиз.121 Основное влияние высокие концентрации прогестерона оказывают на секрецию ГнРГ в гипоталамусе, и это торможение снимается при родах. Более того, содержание ГнРГ в гипоталамусе не изменяется с 1 по 35 день после родов у коров или овец.121,126 Возможно, более важным для послеродового выздоровления является стимулирующее повышение прогестерона на низком уровне, наблюдаемое во время возобновления овариальных циклов. Кратковременные лютеиновые фазы, созданные преждевременной регрессией желтых тел в течение первых 30 дней после родов, предшествуют установлению циклов нормальной длины.129 В этой роли прогестерон служит позитивным модулятором репродукции после родов, путем примирования ( повышает чувствительность, сенсибилизирует) всей гипоталамо-гипофизарно-яичниково-маточной оси для нормальной секреции гонадотропина,43 нормальных сроков высвобождения маточного простагландина,130 и нормальной лютеиновой функции.131–133 В течение 2–3 дней после родов высокие гестационные уровни плацентарных стероидов выводятся из кровообращения как у овец, так и у коров.128,134 Это сопровождается значительным увеличением концентрации мРНК для α- и β-субъединиц ЛГ.121 В течение 2–3 недель после родов общее содержимое передней доли гипофиза и выделяемые запасы ЛГ изобилуют как у молочных, так и у мясных коров.39,124,135
