
График Посредническое влияние Физиологическое событие
Поздняя стельность Производство плацентой Ингибирование синтеза ЛГ и
эстрадиола ФСГ-субъединиц
Роды Устранение высоких Истощение запасов ЛГ и ФСГ
циркулирующих передней доли гипофиза
концентраций эстрадиола
Первые несколько дней
Быстрый синтез ФСГ- Пополнение запасов ФСГ
после родов субъединиц
2-3 недели после родов Медленный синтез ЛГ β- Пополнение запасов ЛГ
субъединиц
Подавление
Новотельный период
Сосание; низкая упитанность; секреции ГнРГ / ЛГ
до физиологического
отрицательный энергетический
восстановления или баланс Анэструс/ановуляция
отлучения от вымени
Физиологическое
4-12 недель после родов
избавление от эффектов Увеличение секреции ГнРГ/
сосания ЛГ
2-6 дней (хорошая Резкое отлучение от вымени; Возобновление овариальной
упитанность) отъем теленка цикличности
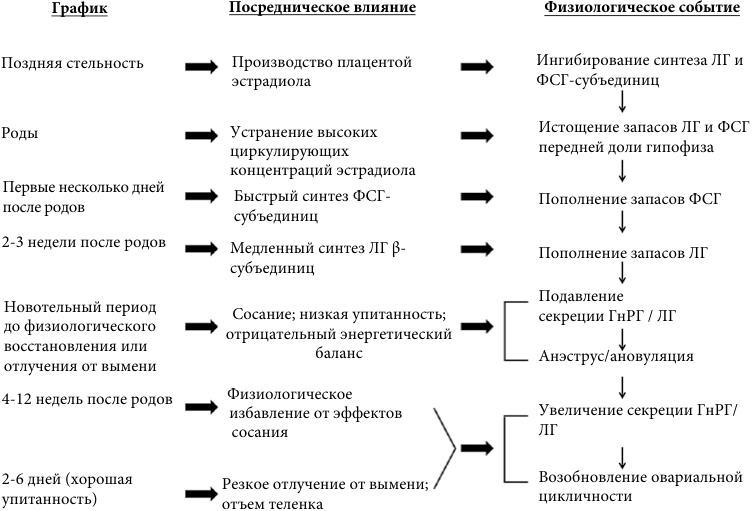
Рис.23.6. Временная шкала и опосредующие влияния, лежащие в основе послеродового ановуляторного периода коровы с акцентом на подсосных мясных коров. У высокопродуктивной молочной коровы отрицательный энергетический баланс, в отличие от сосания, является преобладающим фактором, препятствующим повторной инициации эстральной цикличности после отела.
Этот процесс протекает в присутствии сосания, хотя амплитуда и/или частота импульсов ГнРГ остается низкой5 . Таким образом, в отсутствие повышенных концентраций эстрадиола в кровотоке, гонадотропам жвачных животных, по-видимому, требуется очень слабый стимул ГнРГ для синтеза и хранения ЛГ.121 Через 30 дней после родов высвобождение ЛГ в ответ на фармакологическое лечение ГнРГ заметно выше у подсосных, чем у отъемных (после отъема теленка) коров.39 Это происходит потому, что у отъемных коров пульсирующий выброс ЛГ из гипофиза резко возрастает в течение первых 2 недель после отела из-за отсутствия сосания.136,137 Соответственно, у подсосных коров в течение этого периода накапливается больше ГнРГ в срединном возвышении, чем у неподсосных коров.138 Таким образом, в течение первых несколько недель после отела у подсосных по сравнению с отъемными коровами доступно большее количество ЛГ в ответ на воздействие ГнРГ.
Поскольку восполнение запасов аденогипофизарного ЛГ по существу завершено по истечении 3-х недель после отела, разумно предположить, что нормальный паттерн ( характер) секреции ЛГ и начало овариальных циклов также могут возобновиться. Тем не менее, хотя у дойных молочных коров и отъемных мясных коров первая овуляция часто происходит в течение 2–3 недель после родов, она задерживается на разные по длительности периоды при наличии сосания.118,119 Частота сосания должна быть снижена до не более одного раза в день для снижения продолжительности послеродовой ановуляции.139,140 Кроме того, требуется до 6 дней, чтобы эффект отъема подействовал на секрецию ЛГ и привел к возобновлению овуляторных циклов у большинства коров.141,142 Время сосания в течение светового дня не влияло на продолжительность послеродового ановуляторного интервала.5 Однако, плохая кондиция при отеле и недостаточное питание в послеродовом периоде вкупе с сосанием усугубляет его негативное влияние на репродукцию в послеродовом периоде.
В некоторых случаях период ановуляции, вызванной сосанием, может продлиться до 100 и более дней из-за этого взаимодействия, хотя в среднем у зрелых коров, отелившихся с хорошей упитанностью - 60-70 дней. Дополнительный интерес представляет биостимулирующее влияние быка на возобновление функции яичников в послеродовом периоде.144,145 Данные показывают, что феромональный компонент мочи быка может ускорить восстановление пульсирующего паттерна секреции гонадотропина у послеродовых коров и, соответственно, наступление первого эструса, хотя нейроэндокринный механизм этого не выяснен.
Как сосущий теленок влияет на нейроэндокринную регуляцию секреции ГнРГ и ЛГ? В 1980-х и 1990-х годах на этом вопросе сосредоточились несколько лабораторий по всему миру. Основываясь на исторических данных в литературе, предполагалось, что сосущий теленок ингибирует секрецию ГнРГ и/или гонадотропинов посредством нервных сигналов, возникающих после тактильной стимуляции соска.146,147 Недавняя работа, связанная с эндокринной системой, была сосредоточена на потенциальной роли нейрогуморальных медиаторов в этом процессе, включая пролактин128,148,149 и кортизол.149,150 Теперь ясно, что ни один из этих гормонов не объясняет подавляющее воздействие сосания на ось гипоталамус-гипофиз у коров в послеродовом периоде. Дополнительные исследования посвящены роли овариального эстрадиола. Результаты показали, что повышенная чувствительность к отрицательной обратной связи эстрадиола играет роль в опосредовании эффекта сосания.151,152 Однако, отрицательная обратная связь эстрадиола не требуется для проявления ингибирующего эффекта сосания.153 Сопутствующим с этим эффектом является очевидное повышение эндогенного опиоидного тонуса, который уменьшается по мере увеличения послеродового интервала и в ответ на отлучение от вымени.154,155
Чтобы более четко определить, могут ли физические манипуляции с соском самостоятельно объяснить ингибирующее влияние сосания на секрецию гонадотропина, была проведена серия экспериментов для изучения влияния различных экстероцептивных стимулов.
Они включали в себя постоянное доение вручную, а также механическую, электрическую и термическую стимуляцию сосков овариоэктомированных коров. Ни один из этих стимулов не смог воссоздать или смоделировать эффект сосания.149,156,157 В контрастных исследованиях пытались смоделировать «эффект отлучения от вымени» путем механического маскирования вымени во время сосания158 или с использованием полной мастэктомии, либо денервации молочных желез.159,160 Ни один из подходов не изменил секрецию гонадотропина в организме у коров, которых сосали их собственные телята. Денервация молочных желез действительно нарушала секрецию окситоцина и выделение молока после сосания, но этот физиологический дефицит был только временным. Однако, денервация не влияла на секрецию пролактина или выработку молока у мясных коров. В совокупности вышеприведенные исследования привели к заключению, что хроническая тактильная стимуляция соматосенсорных путей молочных желез не требуется для проявления эффекта сосания,160 и породили новый путь исследований, направленных на оценку роли материнского поведения в регуляции послеродовой ановуляции.
Первоначальные эксперименты по изучению материнского поведения однозначно продемонстрировали, что если корова вынуждена кормить выменем «чужого» теленка в контролируемых условиях, нейроэндокринная система реагирует так, как если бы корова была после отъема: пульсирующая секреция ЛГ увеличивается, и происходит первая послеродовая овуляция в течение 2–6 дней.142 Это привело к дальнейшим экспериментальным наблюдениям, в которых коровы должны были идентифицировать теленка как «собственного», используя зрение или обоняние, для того, чтобы сосание могло подавлять генератор импульсов ГнРГ и поддерживать ановуляторное состояние. Устранение обоих чувств предотвратило идентификацию теленка и вместе с этим негативное влияние сосания собственного теленка на репродуктивную нейроэндокринную систему коровы. На нейроэндокринном уровне сосание, по-видимому, подавляет секрецию ЛГ путем демпфирования ( гашения) амплитуды отдельных импульсов ГнРГ (на основе измерений секреции ГнРГ в спинномозговой жидкости третьего желудочка), а не путем уменьшения количества обнаруживаемых импульсов. Это привело к выводу, что количество биологически эффективных импульсов ГнРГ, достигающих аденогипофизарных портальных сосудов, уменьшается, что уменьшает частоту импульсов ЛГ, выделяемых передней долей гипофиза.
В дополнение к фундаментальным исследованиям было опубликовано множество прикладных исследований, в которых использовалось временное отлучение от вымени, сосание чужим теленком и ограниченное сосание для ускорения сроков появления первого послеродового эструса и овуляции, а также для улучшения синхронизации течки и овуляции. Подробное рассмотрение этой темы выходит за рамки этой главы. Здесь читатель отсылается на опубликованные обзоры119 и другие недавние доклады, в которых эта тема рассматривается более подробно.
Новые нейроэндокринные регуляторы нейрональной функции ГнРГ
В последнее десятилетие был исследован ряд нейропептидов на предмет их потенциальной роли в контроле репродуктивной функции. Особый интерес, связанный с регуляцией секреции ГнРГ, представляют пептиды кисспептин162–164 и аргинин-фенилаланин-амид-связанный пептид (RFRP), первоначально названный гонадотропин-ингибирующим гормоном. Эти пептиды синтезируются в гипоталамусе и проецируются на тела и/или терминалы нейрональных клеток ГнРГ в срединном возвышении, где они, вероятно, осуществляют непосредственный контроль над нейрональной активностью ГнРГ и его секрецией .
Кисспептин является продуктом гена Кисс-1, который экспрессируется в двух дискретных популяциях нейронов, расположенных в преоптической / перивентрикулярной области и в дугообразном ядре гипоталамуса. Все биологически активные формы кисспептина содержат последовательность С-окончания, общую для всех форм. Декапептидная форма кисспептина, по-видимому, является самой короткой изоформой с полной способностью стимулировать секрецию ГнРГ. Роль кисспептина в регуляции репродуктивной функции впервые была охарактеризована в исследованиях, посвященных мутациям в гене рецептора кисспептина (Кисс1r).168,169 У людей и мышей с потерей функции рецепторов кисспептина наблюдается гипогонадотропный гипогонадизм. После этих исследований действие кисспептина как мощного секреторогена ГнРГ было описано у нескольких видов, включая крупный рогатый скот.107,170
Поскольку нейроны ГнРГ содержат рецептор кисспептина, считается, что кисспептин действует непосредственно на нейроны ГнРГ на уровне клеточного тела и дендритов, а также на уровне терминалов срединного возвышения. Также сообщалось о косвенных эффектах кисспептина посредством модуляции других нейрональных входов в нейроны ГнРГ,171 и прямого действия на аденогипофизарные клетки in vitro,172 . Тем не менее, физиологическая значимость прямого действия кисспептина на аденогипофиз неясна, поскольку ему не удалось стимулировать высвобождение ЛГ у овец с нарушенной гипоталамо-гипофизарной связью.173
Эстрадиол оказывает сильное влияние на экспрессию гена Кисс-1, но это влияние различается между двумя популяциями нейронов кисспептина. В преоптической/перивентрикулярной области эстрадиол стимулирует экспрессию гена Кисс-1. Напротив, в дугообразном ядре эстрадиол ингибирует экспрессию гена Кисс-1.174,175 Этот эффект эстрадиола на регуляцию экспрессии Кисс-1 может быть вовлечен в действие эстрадиольной обратной связи по высвобождению гонадотропина. У овец эстрадиол индуцирует активацию нейронов кисспептина в преоптических/ перивентрикулярных областях, что указывает на то, что эта популяция нейронов может быть важна для обеспечения положительной обратной связи с эстрадиолом и начала преовуляторного всплеска ЛГ.176,177 Несмотря на споры, популяция нейронов кисспептина в дугообразном ядре также может быть активирована во время преовуляторного выброса ГнРГ/ЛГ. Тем не менее, наблюдение того, что постоянное экзогенное лечение кисспептином индуцирует непрерывное замедленное высвобождение ЛГ у анэстральных овец и синхронизирует выброс ЛГ178,179 , показывает, что кисспептин или его аналоги можно использовать для фармакологического контроля эстрального цикла у жвачных животных.
Хотя исследования по изучению физиологического действия RFRP у крупного рогатого скота ограничены, данные исследований у крс180 и других видов166 указывают на то, что RFRP-3 действует как ингибитор высвобождения ЛГ, возможно, на уровне гипоталамуса и гипофиза. Птичий гомолог RFRP-3 млекопитающих был первым пептидом этого семейства, выделенным у позвоночных.181 Поскольку птичий пептид ингибировал синтез и секрецию ЛГ,181–183 он был назван ГнИГ (гонадотропин-ингибирующий гормон ). У млекопитающих ген, который кодирует RFRP-3, может продуцировать более одного биоактивного пептида семейства RFRP.184 У овец экспрессия гена RFRP локализована в паравентрикулярном и дорсомедиальном ядрах гипоталамуса.175
Наблюдается, что нейронные волокна, содержащие иммунореактивность RFRP, простираются до срединного возвышения, где они находятся в непосредственной близости от волокон, содержащих ГнРГ.182,185
Нейрональные проекции, содержащие RFRP, также наблюдаются в непосредственной близости от тел клеток ГнРГ и проксимальных дендритов.175 Таким образом, RFRP-3 может контролировать высвобождение гонадотропина, воздействуя на нейроны ГнРГ и/ или на уровне гонадотропа, после его высвобождения в гипоталамо-гипофизарную сосудистую сеть. Присутствие GPR147 рецептора RFRP-3 в гипоталамусе и аденогипофизе поддерживает действия RFRP-3 на обоих уровнях. Исследования на овцах185 и свиньях186 показывают, что RFRP-3 ингибирует высвобождение ЛГ in vivo. Тем не менее, ведется дискуссия о влиянии RFRP-3, потому что исследования на овцах,187 свиньях,188 крысах,189 и лошадях190 не смогли подтвердить явный эффект RFRP. Тем не менее, наблюдение, что RF9, антагонист RFRP, увеличивает высвобождение гонадотропина у лабораторных грызунов,191,192 овец,187 и кобыл190 , указывает на то, что RFRP-3 может функционировать в сложной биологической системе, вызывая регуляцию высвобождения гонадотропина.
Ссылки
-
Hansel W, Convey E. Физиология эстрального цикла. J Anim Sci 1983;57(прил. 2):404–424.
-
Rahe C, Owens R, Fleeger J, Newton H, Harms P. Характер изменения концентрации лютеинизирующего гормона в плазме крови коровы в течение эстрального цикла: зависимость от его фазы. Endocrinology 1980;107:498–503.
-
Fortune J, Sirois J, Turzillo A, Lavoir M. Отбор фолликулов у домашних жвачных животных. J Reprod Fertil Suppl 1991;43:187–198.
-
Ginther O, Bergfelt D, Kulick L, Kot K. Отбор доминантного фолликула у крупного рогатого скота: роль эстрадиола. Biol Reprod 2000;63:383–389.
-
Gazal O, Leshin L, Stanko R и др. . Секреция гонадотропин-рилизинг-гормона в спинномозговую жидкость третьего желудочка мозга крупного рогатого скота: соответствие тоническому и пиковому высвобождению лютеинизирующего гормона и тоническое подавление его секреции сосанием и нейропептидом Y. Biol Reprod 1998;59:676–683.
-
Moenter S, Caraty A, Locatelli A, Karsch F. Характер секреции гонадотропин-рилизинг-гормона (GnRH) перед овуляцией у овцы: наличие предовуляторного пика GnRH. Endocrinology 1991;129:1175–1182.
-
Dees W, McArthur N. Иммуногистохимическая локализация гонадотропин-рилизинг-гормона (GnRH) в гипоталамусе и воронке мозга крупного рогатого скота. Anat Rec 1981;200:281–285.
-
Leshin L, Rund L, Crim J, Kiser T. Иммуноцитохимическая локализация нейронов, вырабатывающих люлиберин и проопиомеланокортин, в преоптической области и гипоталамусе головного мозга крупного рогатого скота. Biol Reprod 1988;39:963–975.
-
Molnár J, Köves K, Marton J, Halász B. О происхождении люлиберина и соматостатина в срединном возвышении гипоталамуса крысы. Acta Biol Acad Sci Hung 1982;33:255–268.
-
Clarke I, Cummins J, de Kretser D. Функция гипофиза овцы после прекращения прямого воздействия гипоталамуса. Neuroendocrinology 1983;36:376–384.
-
Herbison A. Физиология нейронной сети гонадотропин-рилизинг-гормона. В: Neill JD (ред.) Физиология размножения Кнобиля и Нилла , 3-е изд. Нью-Йорк: Academic Press, 2006, с. 1415–1482.
-
Ojeda S, Lomniczi A, Sandau U. Взаимодействия глиальных клеток и нейронов гонадотропин-рилизинг-гормона (GnRH) в срединном возвышении и регуляция секреции GnRH. J Neuroendocrinol 2008;20:732–742.
-
Prevot V. Глиально-нейронно-эндотелиальные взаимодействия участвуют в регуляции секреции GnRH. J Neuroendocrinol 2002;14:247–255.
-
Bergfeld E, Kojima F, Cupp A и др. . Изменение дозы прогестерона приводит к резким изменениям частоты импульсов секреции лютеинизирующего
гормона и секреции 17-бета-эстрадиола у самок крупного рогатого скота. Biol Reprod 1996;54:546–553.
-
Karsch F, Cummins J, Thomas G, Clarke I. Подавление импульсной секреции гонадотропин-рилизинг-гормона у овцы по механизму стероидной обратной связи. Biol Reprod 1987;36:1207–1218.
-
Skinner D, Evans N, Delaleu B, Goodman R, Bouchard P, Caraty A. Отрицательное обратное воздействие прогестерона на секрецию гонадотропин-рилизинг-гормона опосредуется классическим рецептором прогестерона. Proc Natl Acad Sci USA 1998;95:10978–10983.
-
Goodman R, Bittman E, Foster D, Karsch F. Эндокринные механизмы синергического подавления секреции лютеинизирующего гормона эстрадиолом и прогестероном. Endocrinology 1981;109:1414–1417.
-
Kesner J, Padmanabhan V, Convey E. Эстрадиол вызывает, а прогестерон подавляет предовуляторные выбросы лютеинизирующего и фолликулостимулирующего гормонов у тёлок. Biol Reprod 1982;26:571–578.
-
Kasa-Vubu J, Dahl G, Evans N и др. . Прогестерон блокирует вызванный эстрадиолом выброс гонадотропинов у овец, подавляя выброс гонадотропин-рилизинг-гормона. Endocrinology 1992;131:208–212.
-
Caraty A, Skinner D. Предварительное воздействие прогестерона необходимо для полного проявления положительной обратной связи эстрадиола при индукции предовуляторного выброса гонадотропин-рилизинг-гормона у овец. Endocrinology 1999;140:165–170.
-
Goodman R, Gibson M, Skinner D, Lehman M. Нейроэндокринная регуляция пульсирующей секреции GnRH в течение яичникового цикла: данные, полученные на овцах. Reprod Suppl 2002;59:41–56.
-
Whisnant C, Goodman R. Влияние антагониста опиоидных рецепторов на пульсирующую секрецию лютеинизирующего гормона у овец меняется в зависимости от изменений отрицательной обратной связи, опосредованной стероидными гормонами. Biol Reprod 1988;39:1032–1038.
-
Goodman R, Coolen L, Anderson G и др. . Данные о том, что динорфин играет важную роль в опосредовании отрицательной обратной связи прогестерона с нейронами, секретирующими гонадотропин-рилизинг-гормон, у овец. Endocrinology 2004;145:2959–2967.
-
Boukhliq R, Goodman R, Berriman S, Adrian B, Lehman M. Часть нейронов, секретирующих гонадотропин-рилизинг-гормон, в медиобазальном гипоталамусе овец активируется при усилении пульсирующей секреции лютеинизирующего гормона. Endocrinology 1999;140:5929–5936.
-
Stumpf T, Roberson M, Wolfe M, Hamernik D, Kittok R, Kinder J. Прогестерон, 17 бета-эстрадиол и опиоидные нейропептиды модулируют характер изменения концентрации лютеинизирующего гормона в крови коров. Biol Reprod 1993;49:1096–1101.
-
Goubillon M, Forsdike R, Robinson J, Ciofi P, Caraty A, Herbison A. Выявление нейронов, экспрессирующих нейрокинин B, как группы клеток дугообразного ядра гипоталамуса овец с высокой чувствительностью к эстрогенам и выраженным половым диморфизмом. Endocrinology 2000;141:4218–4225.
-
Foradori C, Coolen L, Fitzgerald M, Skinner D, Goodman R, Lehman M. Совместная локализация рецепторов прогестерона и динорфина в мелкоклеточных нейронах преоптической области и гипоталамуса овец. Endocrinology 2002;143:4366–4374.
-
Scott C, Pereira A, Rawson J и др. . Распределение иммунореактивности рецепторов прогестерона и их мРНК в преоптической области и гипоталамусе овец: повышение экспрессии мРНК рецепторов прогестерона в медиобазальном гипоталамусе под действием эстрогена. J Neuroendocrinol 2000;12:565–575.
-
Evans N, Dahl G, Glover B, Karsch F. Центральная регуляция эстрадиолом пульсирующей секреции гонадотропин-рилизинг-гормона (GnRH) у овец в период, предшествующий предовуляторному выбросу GnRH. Endocrinology 1994;134:1806–1811.
-
Herring R, Hamernik D, Kile J, Sousa M, Nett T. Длительное введение эстрадиола оказывает трёхфазное влияние на концентрацию гонадотропинов в сыворотке крови и количество матричной рибонуклеиновой кислоты субъединиц гонадотропинов, но не на содержание гонадотропинов в гипофизе у овец после удаления яичников. Biol Reprod 1991;45:151–156.
-
Cupp A, Kojima F, Roberson M и др. . Повышение концентрации 17 бета-эстрадиола по-разному влияет на секрецию лютеинизирующего и фолликулостимулирующего гормонов и количество мРНК субъединиц гонадотропинов в течение
