
(a) (e)
CC
Z P
2 мм M v
(b) G
200 мкм
G V
(c)
V
20 мкм L
(d) M
GV
КК
10 мкм 2 µm
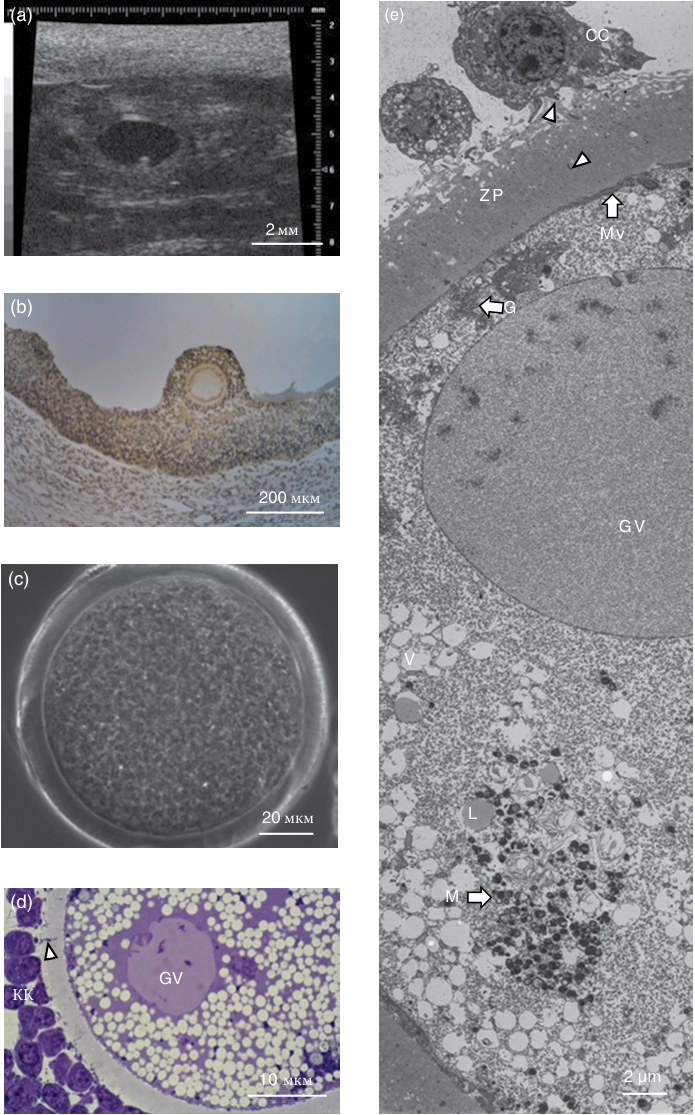
Рис. 24.12 Изображения кумулюс-ооцитарного комплекса коровы. (а) Ультразвуковая биомикроскопия с использованием датчика с частотой 40 МГц. (б) Гистологический срез (сечение 5 мкм), окрашенный трихромом по Массону. (c) Фазово-контрастная микроскопия оголенного ооцита (40 ×). (г) Полутонкий срез (сечение 1 мкм) кумулюс-ооцитного комплекса из доминантного фолликула в фазе роста, окрашенного толуидиновым синим ( краситель Ниссля ). (е) Просвечивающая электронная микроскопия (d). СС - кумулюсные клетки ( клетки лучистого венца) ; ZP — блестящая оболочка (zona pellucida) (г ликопротеиновая оболочка, окружающая ооцит ) ; V - везикулы ооцитов; L - липидные капли; М - закрытые и нормальные митохондрии; стрелками указаны проекции кумулюсных клеток; Mv - микроворсинки на поверхности ооплазмы ( цитоплазма яйцеклетки) ; G - Гольджи; GV - Зародышевый пузырек.
Эти наблюдения ставят под сомнение старую догму о том, что ранний рост фолликулов не зависит от гонадотропина. Если маленькие фолликулы реагируют на ФСГ, логично предположить, что динамика их развития имеет волнообразный характер в ответ на периодические эндогенные выбросы ФСГ. До недавнего времени отсылка к фолликулярной волне была ограничена фолликулами диаметром 4 мм или более, просто исходя из предела разрешения существующего ультразвукового оборудования.
На микроскопическом уровне нет морфологического различия между антральными фолликулами средней и поздней стадии менее 4 мм и 4 мм и более.7,8 На клеточном уровне обе размерные категории фолликулов не только экспрессируют ( приобретают ) рецепторы ФСГ, но и имеют сходный уровень экспрессии на гранулезно-клеточной основе (обзор в 78).
Периодическое появление волн фолликулов размером 4 мм и более в ответ на периодические скачки ФСГ51 и постоянство количества фолликулов 2 мм или более102 , либо 3 мм или более59 , набранных в последовательные волны, указывает на то, что фолликулы могут постепенно примыкать к волнам, начиная с самых ранних стадий развития.
Овуляция и созревание яйцеклетки
Овуляция включает в себя ряд событий, которые завершаются эвакуацией содержимого антрального фолликула, включая его зрелый кумулюс-ооцитный комплекс (рис. 24.12), и инициацией развития желтого тела. Ряд событий происходит последовательно и они тесно координируются на системном, клеточном и молекулярном уровнях. Процесс начинается с эндокринных изменений, вызванных лютеолизом. Снижение циркулирующих концентраций прогестерона во время лютеолиза устраняет негативные эффекты обратной связи на гипофиз и гипоталамус, что приводит к увеличению частоты и амплитуды импульса ЛГ. Наличие ЛГ приводит к окончательному созреванию доминантного фолликула с увеличением выработки эстрадиола и активацией рецепторов ЛГ на клетках гранулезы. Преовуляторное увеличение ЛГ приводит к обширному ремоделированию матрикса яичника (сосудистые изменения, распад базальной мембраны и разрыв стенки фолликула), реакциям гранулезы и тека-клеток (экспансия кумулюсных клеток, лютеинизация) и возобновлению мейоза яйцеклеткой. При эструсе высокая циркулирующая концентрация эстрадиола в отсутствие прогестерона вызывает резкий скачок ЛГ и эстральное поведение (повышенная локомоция, мычание, вспрыгивание на других коров и рефлекс неподвижности при садках) .
Хотя ЛГ-рецепторы присутствуют как на гранулезных, так и на тека-клетках,103 но в клетках гранулезы их распределение ограничено клеточными стенками. Кроме того, рецепторы ЛГ наиболее выражены в тех слоях, которые расположены ближе к базальной мембране, чем к полости. Следовательно, ЛГ нуждается во вторичных мессенджерах, чтобы иметь возможность воздействовать на весь фолликул и ооцит. Действие вторичных мессенджеров облегчается тесной взаимосвязью между клетками гранулезы, кумулюсными клетками и ооцитом через щелевые контакты ( межклеточные контакты, обеспечивающие прямой перенос ионов и небольших молекул между соседними клетками) ( см. Рис. 24.4).105 Двумя основными вторичными мессенджерами для ЛГ являются циклический АМФ ( аденозинмонофосфат )106,107 и внутриклеточный кальций.108 Связывание ЛГ с рецепторами G-белка на поверхности клетки г ранулезы приводит к активации аденилциклазы ( фермент, который ускоряет превращение АТФ в цАМФ ), увеличению циклического АМФ и стимуляции протеинкиназы А и С. Стимуляция протеинкиназы А и С вызывает фосфорилирование и активацию транскрипционных факторов (Egr-1, C/EBPβ, CREB, Fos, Jun, Fra2, JunD) в течение 4 часов после выброса ЛГ. Экспрессия некоторых из этих генов является временной, в то время как другие сохраняются до овуляции (обзор в 109). C/EBPβ контролирует экспрессию COX2 - ключевого гена на пути синтеза простагландина. Продукты гранулезных клеток под влиянием эпидермального фактора роста (ЭФР) (эпирегулин, амфирегулин и бетацеллюлин) повышаются через 1-3 часа после выброса ЛГ и участвуют в передаче овуляторного сигнала клеткам кумулюса. Всплеск ЛГ также косвенно индуцирует активацию путей синтеза прогестерона и простагландина111 , которые модифицируют функцию фибробластов к образованию хемокинов, которые рекрутируют (привлекают) , воспалительные клетки и факторы роста, инициирующие ангиогенез (например, VEGF - фактор роста эндотелия сосудов).
Индуцированная ЛГ внеклеточная протеаза ADAMTS1 синтезируется в клетках гранулезы, но белок транслоцируется ( перемещается) во внеклеточный матрикс для индукции выработки версикана (хондроитинсульфат протеогликана 2 или внеклеточный матричный протеогликан из семейства аггреканов; рассмотрено в ссылке 112), и участвует в активации тканевых протеаз, таких, как металлопротеиназы, необходимых для разрыва фолликула.
Внеклеточный матрикс, который окружает и поддерживает клетки, является основным компонентом соединительной ткани (см. Рисунок 24.4). Он состоит в основном из структурных белков (эластин и коллагены), специализированных белков (фибриллин, фибронектин, ламинин) и протеогликанов. Он играет важную роль в функции яичников, участвуя в таких процессах, как миграция клеток, пролиферация, рост и гибель клеток во время развития фолликула, овуляции и образования желтого тела. Во время овуляции деградацию эпителия яичников регулируют два семейства ферментов: металлопротеиназы и активаторы плазминогена ( белки, превращающие профермент плазминоген в активную форму — плазмин, являющийся фибринолитическим ферментом ) . Экспрессия обоих этих семейств ферментов индуцируется выбросом ЛГ. Об изменениях в экспрессии генов и ингибиторов металлопротеиназ в течение эстрального цикла коров не сообщалось, но одним фактором, который может индуцировать экспрессию, является фактор некроза опухоли TNF-α, который секретируется преовуляторными фолликулами.113 Гепараназа (кодируется HPSE) расщепляет гликозаминогликаны гепарансульфат во время ремоделирования (перестройки ) матрикса и может также играть основную роль в разрыве фолликула во время овуляции у крупного рогатого скота.114 ЛГ-индуцированная овуляция также связана с увеличением экспрессии еще одной группы протеаз, называемых калликреинами.115 Похоже, что многие паракринные факторы, провоспалительные цитокины и семейства протеазных ферментов действуют совместно друг с другом, приводя к деградации внеклеточной соединительной ткани и, в конечном счете, к разрыву фолликула в среднем через 30 часов после всплеска ЛГ.116
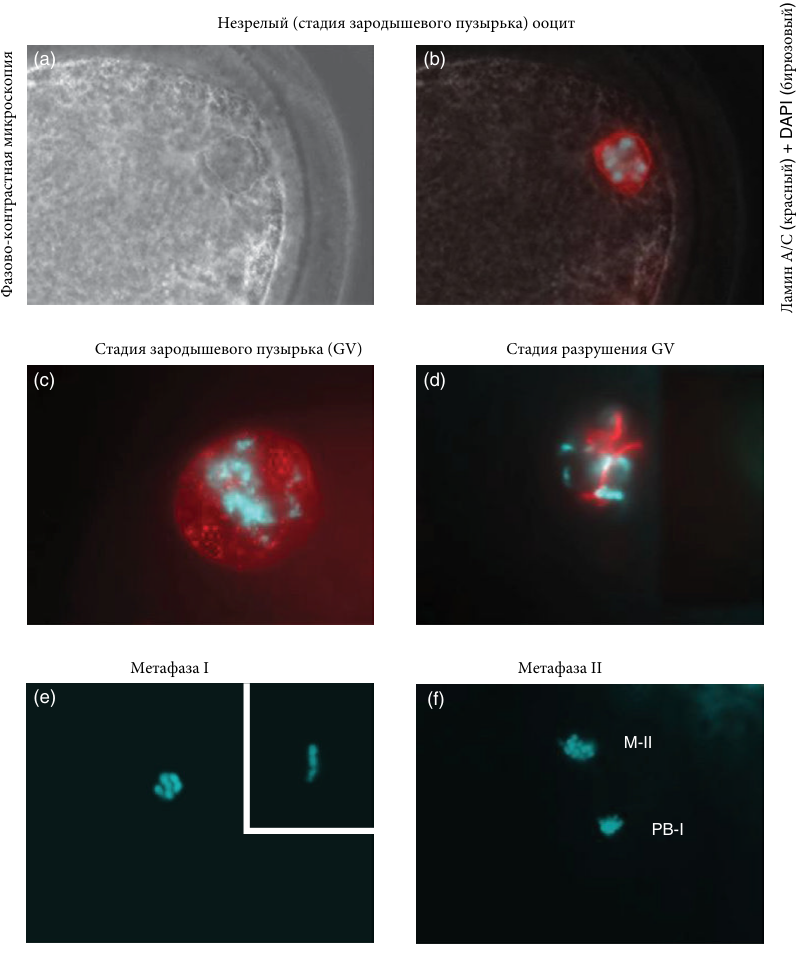
Мейотическое деление яйцеклетки задерживается в профазе I (первый мейотический арест или остановка) во время развития зародышевых фолликулов у плода. Процесс возобновления мейоза, разъединение половины набора хромосом в виде полярного тела и перехода к метафазе II называют ядерным созреванием (рис. 24.13). Вскоре после всплеска ЛГ щелевые контакты между клетками кумулюса и ооцитом разрушаются.117,118 Потеря связи между клетками устраняет ингибирующую передачу сигналов, и затем ооцит может возобновить мейоз. Тем не менее, мейоз снова останавливается в метафазе II (второй мейотический арест) до оплодотворения, когда мейоз, наконец, завершен. Ооциты млекопитающих имеют склонность к возобновлению мейоза, если они удалены из антрального фолликула, в котором они находятся,119–121 или, если они находятся в преовуляторных фолликулах под влиянием выброса ЛГ117,122 . У крупного рогатого скота основная доля ооцитов достигала метафазы II через 20 часов созревания in vitro117 или 20 часов после спонтанного или индуцированного всплеска ЛГ.122–124 Циклические АМФ и ГМФ считаются основными ингибиторами возобновления мейоза в ооците.118 Считается, что циклический ГМФ ( гуанозинмонофосфат) , продуцируемый клетками гранулезы, входит в ооцит через щелевые контакты между клетками ооцита и кумулюса для поддержания низких уровней цАМФфосфодиэстеразы 3А (ФДЭ3A) в ооците.125 Низкий уровень ФДЭ3A, как полагают, поддерживает высокий уровень цАМФ, вырабатываемый в ооците126 , и, таким образом, поддерживает мейотическую остановку ( арест ). Воздействие ЛГ снижает выработку цГМФ клетками гранулезы с помощью пока неизвестных механизмов и разъединяет щелевые соединения (путем фосфорилирования коннексина-43) с помощью митоген-активируемой протеинкиназы (МАРК).125,127,128
Незрелый (стадия зародышевого пузырька) ооцит
(a) (b)
Стадия зародышевого пузырька (GV) Стадия разрушения GV
(c) (d)
Метафаза I Метафаза II
(e) (f)
M-II
PB-I
Фазово-контрастная микроскопия
() + DAPI ()бирюзовыйЛамин А/С красный
Рис. 24.13 Стадии ядерного созревания ооцитов крупного рогатого скота. (а) Фазово-контрастное изображение незрелого ооцита с неповрежденной ядерной мембраной (стадия зародышевого пузырька или GV), полученное из 4-мм фолликула. (b) Анти-ламин A/C (окрашивает ядерную мембрану в красный цвет) и DAPI (окрашивает ДНК в голубой цвет), объединенные с фазово-контрастным изображением в (a). (с) Ядро незрелого ооцита с неповрежденной ядерной мембраной (стадия GV). (d) Созревание ооцита, показывающее разрушение зародышевого пузырька (стадия GVBD). (е) Метафаза I; на вставке показана метафазная пластинка под прямым углом. (f) Метафаза II и первое полярное тело (PB-I). Адаптировано из Prentice-Biensch J, Singh J, Alfoteisy B, Anzar M. Простой и высокопроизводительный метод для оценки стадии созревания бычьих ооцитов: сравнение анти-ламин A/C-DAPI с техникой окрашивания ацетоорсеином. Териогенология 2012;78:1633–1638.
Снижение производства и поступления циклического ГМФ в ооцит, в свою очередь, увеличивает ФДЭ3A, который в конечном итоге гидролизует циклический AMP и позволяет возобновить мейоз.
Лютеиновая динамика
Основываясь на состоянии желтого тела, эстральный цикл можно разделить на четыре последовательные фазы: 1) проэструс, когда желтое тело регрессирует и развивается овуляторный фолликул; 2) эструс - отсутствие функционального желтого тела и период половой восприимчивости, когда происходит окончательное созревание фолликулов и овуляция; 3) метэструс - период образования желтого тела; и 4) диэструс, когда желтое тело является зрелым и активно продуцирует прогестерон.129
Проэструс и эструс называют фолликулярной фазой, а метэструс и диэструс - лютеиновой фазой, хотя «лютеиновая фаза» не подразумевает отсутствие развития фолликула. Напротив, фолликулярные волны продолжают развиваться в течение фолликулярной и лютеиновой фаз эстрального цикла, как описано выше.
Происхождение желтого тела
Рост и гибель желтого тела в течение эстрального цикла представляет собой один из самых быстрых динамических процессов в организме. Во время овуляции антральное содержимое овуляторного фолликула эвакуируется, и его стенка разрушается, сморщиваясь внутрь освобожденной полости. (Рисунок 24.14).
