
ФСГ ЛГ Эстрадиол Прогестерон
Количество фолликулов Фолликулярные продукты
≥4мм
ОВ ОВ
ОВ ОВ
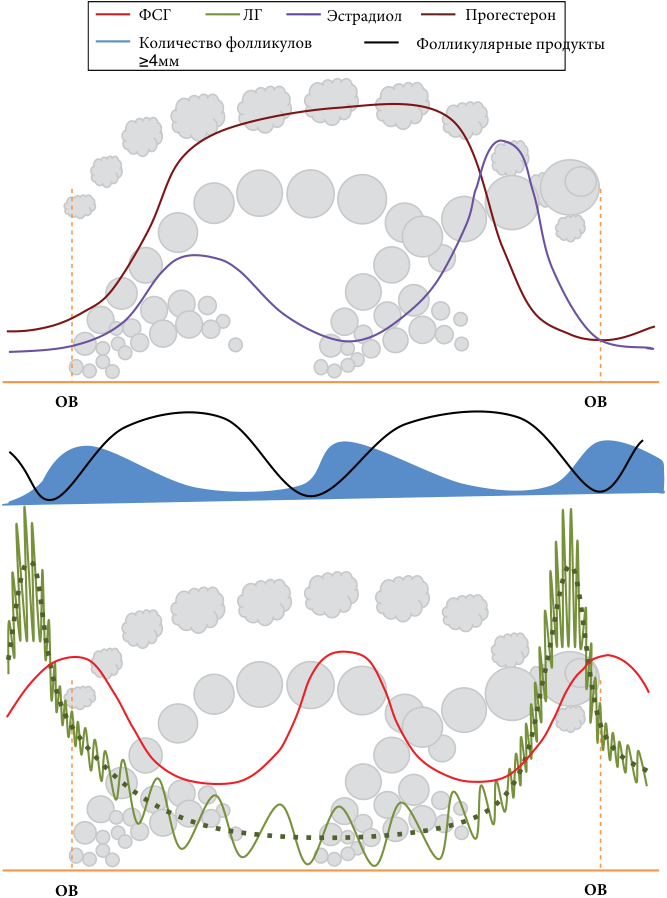
Рис. 24.9 Гормональное взаимодействие, контролирующее динамику фолликулярной волны в течение двухволнового интеровуляторного интервала у крупного рогатого скота. Доминирующие и подчиненные фолликулы каждой волны обозначены серыми кружочками, а желтое тело - серой неправильной формой, нарисованной над фолликулами. Всплеск циркулирующей концентрации ФСГ предшествует появлению каждой волны. Всплеск циркулирующей концентрации ЛГ предшествует овуляции. Перед всплеском ЛГ наблюдается период высокой частоты пульса ЛГ в результате низких циркулирующих концентраций прогестерона (то есть период лютеолиза и лютеогенеза соответственно). Число фолликулов ≥4 мм колеблется волнообразно в ответ на скачки ФСГ. Продукты фолликулов каждой волны (прежде всего, ингибин и эстрадиол) посредством обратной связи с гипоталамусом и гипофизом подавляют ФСГ. Концентрации ФСГ снижаются тогда, когда происходит дивергенция ( отклонение ) в скорости роста доминирующих фолликулов по сравнению с подчиненными, и количество фолликулов уменьшается. Доминантный фолликул каждой волны является основным источником эстрадиола, и его производство в овуляторном по сравнению с ановуляторным доминантным фолликулом в два раза выше. После гибели или овуляции доминирующего фолликула, фолликулярные продукты, ответственные за подавление ФСГ снижаются и циркулирующие концентрации ФСГ снова получают возможность расти, что приводит к появлению новой волны. Адаптировано из Adams G, Jaiswal R, Singh J, Malhi P. "Прогресс в понимании фолликулярной динамики яичников у крупного рогатого скота. Териогенология". 2008;69:72–80.
Дивергенция в профилях роста (определяемая как существенная разница в диаметре) самого большого и второго по величине фолликула является проявлением процесса отбора и проявляется через 2,5 дня после появления волны (Рисунки 24.8 и 24.9).77 Аналогично, «отклонение фолликула» (определяется как разница в скорости роста между доминантным и подчиненным фолликулами) проявляется через 2,5 дня после появления волны, когда будущий доминантный фолликул достигает среднего диаметра 8,5 мм у телок голштинской породы (рассмотрено в [80]). Продолжение развития доминантного фолликула за пределами 8- миллиметрового порога (точка, в которой становится очевидным расхождение в скорости роста двух самых крупных фолликулов), связано с переходом от ФСГ- к ЛГ-зависимости.66,68,81
Клетки гранулезы доминантного фолликула приобретают повышенную способность связывать ЛГ по сравнению с таковой у подчиненных и имеют более высокую экспрессию мРНК рецептора ЛГ.29,78,79,82,83 Хотя небольшое увеличение экспрессии мРНК рецептора ЛГ и обнаружено у клеток гранулезы самого большого фолликула за несколько часов до начала отклонения84 , еще не ясно, является ли наблюдаемое увеличение экспрессии в доминантном фолликуле причиной его доминантности или следствием процесса отбора. Возможно, повышенная экспрессия рецептора ЛГ является просто индикатором фолликула с преимуществом в развитии, прежде чем такое преимущество станет ультрасонографически различимо.
20
30 мг/день
(n = 6)
150
16 * мг/день
(n = 5)
12
* 300
мг/день
8
(n = 6) G: P < 0.0005
D: P < 0.0001
Высокий
4 Средний Низкий GD: P < 0.0001
0 4 8 12 16 20 24 28 32 36
Дни после появления волны
()Диаметр фолликула мм
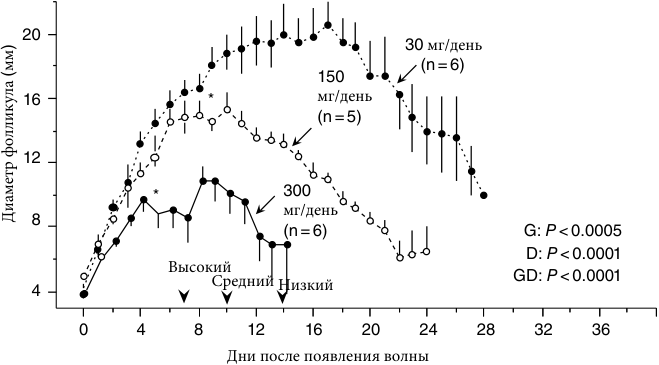
Рис. 24.10 Подавляющее влияние прогестерона на рост доминантного фолликула у коров. Экзогенный прогестерон, вводимый в низких (30 мг/день), средних (150 мг/день) и высоких (300 мг/день) дозах в течение 14 дней, приводил к постепенному усилению подавления роста доминантного фолликула и постепенному сокращению интервалов между волнами (стрелки на оси х). Максимальные концентрации прогестерона в плазме составляли 2, 9 и 17 нг/мл в группах с низкой, средней и высокой дозой, соответственно. Супрессивное влияние на фазу роста доминантного фолликула объясняется постепенным усилением подавления частоты импульсов ЛГ. Адаптировано из Adams G, Matteri R, Ginther O. "Влияние прогестерона на рост фолликулов яичника, появление фолликулярных волн и уровень циркулирующего ФСГ у телок". J Reprod Fertil 1992;96:627–640.
В связи с этим результаты критического исследования развития малых фолликулов подтверждают гипотезу о том, что фолликул, которому предназначено стать доминирующим, имеет преимущество в размере по сравнению с остальными фолликулами волны с момента его самого раннего обнаружения при d=1 мм (рис. 24.11) (см. Раздел " Малые антральные фолликулы" ) .
Дифференциальное ( неодинаковое) производство факторов фолликулярной жидкости у доминантных фолликулов по сравнению с подчиненными была связана с развитием большей чувствительности к ЛГ и ФСГ в развивающемся доминантном фолликуле, и тесная временная связь между изменением уровня ФСГ и диаметром фолликула, вероятно, объясняет увеличение скорости роста доминантного фолликула, прежде чем подчиненные фолликулы смогут достичь аналогичной стадии развития.66 В этом отношении внутрифолликулярная концентрация инсулиноподобного фактора роста (ИФР)-1 остается повышенной, а эстрадиол начинает увеличиваться в зарождающемся доминантном фолликуле, в то время как в зарождающихся подчиненных фолликулах оба фактора начинают уменьшаться.85 Более высокие концентрации свободного ИФР-1 в самом большом фолликуле перед самым началом отклонения связаны во времени с большей протеолитической деградацией в нем ИФРсвязывающего белка (IGFBP) -4 и -5.86 Одновременно, концентрации IGFBP-4, IGFBP-5,86 и IGFBP-284 повышаются во втором по величине фолликуле. Неудивительно, что более поздние транскриптомные исследования ( изучающие РНК клетки или группы клеток) подтвердили, что основные функциональные пути роста и отбора доминантных фолликулов у крупного рогатого скота включают гены, регулирующие дифференцировку/пролиферацию клеток и апоптоз/гибель клеток.82,87–89
Кодоминантность
Подчиненные фолликулы могут стать доминантными, если удалить исходный доминантный фолликул58,77 или ввести экзогенный ФСГ.52 Аналогичным образом, кодоминантность (более одного доминирующего фолликула в волне) связана с профилем меньшего диаметра52,90 , что предполагает конкуренцию за ограниченную доступность ЛГ. Двойная овуляция является результатом кодоминантности в течение овуляторной волны. В исследованиях с нелактирующими телками процент кодоминирования и двойной овуляции был низким или нулевым,26,31,91–93 , но у лактирующих молочных коров он колеблется от 21 до 36% фолликулярных волн.93
Высокая частота (10–39%) множественных овуляций у высокопродуктивных молочных коров была описана в нескольких исследованиях.90,94,95 У коров, у которых овулировало множество фолликулов, все овуляторные фолликулы возникли из одной и той же фолликулярной волны.93 У коров, у которых развивались множественные доминантные фолликулы, процесс отклонения ( момент отбора доминантного фолликула ) был связан с более низкими циркулирующими концентрациями ингибина и прогестерона по сравнению с коровами, у которых развился единственный доминантный фолликул90 . Эти эффекты дополняются более высокими циркулирующими концентрациями ФСГ и ЛГ во время ожидаемого отклонения, которые способствуют продолжению роста второго и третьего по величине фолликулов волны, и развитию множественных доминантных фолликулов.
Мелкие антральные фолликулы: когда фолликулы присоединяются к волне?
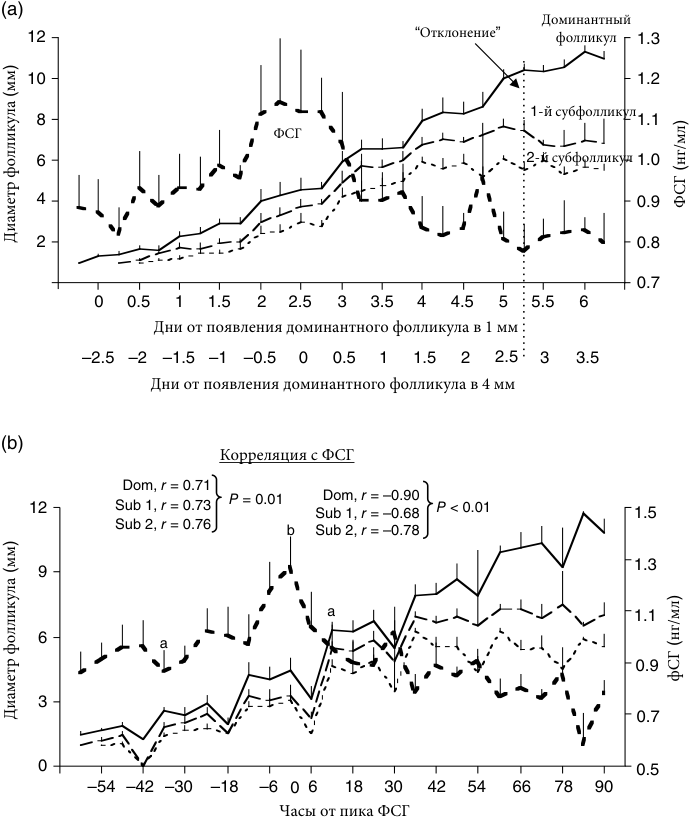
Предыдущие ультразвуковые исследования детализировали динамику развития фолликулов диаметром 4 мм и более (описано выше), но благодаря наличию более новых ультразвуковых сканеров, способных распознавать структуры размером до 1 мм, был подробно рассмотрен характер развития фолликулов 1-3 мм у крупного рогатого скота.96 Результаты выявили изменение количества фолликулов d=1–3 мм в течение нескольких дней, с максимумом за 1 или 2 дня до появления условно определенной волны (т.е. когда доминантный фолликул впервые обнаружен при d=4 мм), а следом, 3-4 дня спустя, максимальное количество фолликулов 4 мм и более. Будущий доминантный фолликул был впервые идентифицирован при диаметре 1 мм и появился на 6–12 часов раньше, чем первый подчиненный фолликул (P <0,01; Рисунок 24.11). После обнаружения доминантного фолликула в 1 мм (0 часов) его диаметр был больше диаметра первого и второго подчиненных фолликулов через 24 часа и 12 часов соответственно, когда доминантный фолликул был 2,4 ± 0,17 мм и 1,7 ± 0,14 мм. (Рисунок 24.11). Скорость роста доминантного фолликула была выше, чем у первого и второго подчиненных фолликулов через 120 и 108 часов соответственно, когда доминантный фолликул составлял 9,5 ± 0,30 мм и 8,8 ± 0,49 мм. Авторы пришли к выводу, что:
(a)
Доминантный
12 “Отклонение” 1.3
10 1.2
8
6 1.0
4 0.9
2 0.8
0.7
–2.5 –2 –1.5 –1 –0.5 0 0.5 1 1.5 2 2.5 3 3.5
Дни от появления доминантного фолликула в 4 мм
(b)
Корреляция с ФСГ
Доминантный, r = 0.71
P = 0.01 Доминантный, r = –0.90
12 Субдоминантный 1, r = 0.73 Субдоминантный 1, r = –0.68 P < 0.01 1.5
Субдоминантный 2, r = 0.76 b Субдоминантный 2, r = –0.78
1.3
9
a 1.1
6 a
0.9
3
0.7
0 0.5
–54 –42 –30 –18 –6 0 6 18 30 42 54 66 78 90
Часы от пика ФСГ
()ФСГнг/мл
()Диаметр фолликула мм
()фСГнг/мл
()Диаметр фолликуламм
| 1-й субфолликул ФСГ 2-й субфолликул | |
|---|---|
| 0 0.5 1 1.5 2 2.5 3 3.5 4 4.5 5 5.5 6 Дни от появления доминантного фолликула в 1 мм 2.5 |
Рис. 24.11 Рост (среднее ± SEM - стандартная ошибка среднего ) доминантных и подчиненных фолликулов у крупного рогатого скота (n = 9) относительно (а) появления волн (определяется как день, когда доминантный фолликул был обнаружен при диаметре 1 или 4 мм; двойная ось х) и (b) пика концентрации ФСГ в плазме (среднее значение ± SEM). (a) Будущий доминантный фолликул имел преимущество в размере по сравнению со всеми остальными фолликулами волны с момента его самого раннего обнаружения при d=1 мм (что намного раньше, чем было прежде задокументировано). Последующее ( или последовательное?) замедление скорости роста третьего, второго и первого по величине фолликулов волны во время спада всплеска ФСГ говорит о том, что механизм отбора включает последовательное подавление постепенно увеличивающихся фолликулов в течение 72 часового периода (то есть иерархия выбора). «Отклонение» определяется как первый день, в который скорость роста самого большого и второго по величине фолликулов различалась (P ≤ 0,05). (b) Концентрации ФСГ в плазме положительно коррелировали (P = 0,01) с диаметром фолликула от момента обнаружения фолликула при d=1 мм до момента, когда концентрации ФСГ достигали максимума. Временные повышения концентрации ФСГ в плазме сопровождались увеличением скорости роста фолликулов 1–3 мм в течение 6 часов. Для ФСГ значения без общего верхнего индекса (надписи a, b) различны (P ≤ 0,05). Адаптировано из Jaiswal R, Singh J, Adams G. "Характер развития малых антральных фолликулов в яичнике коровы". Biol Reprod 2004;71:1244–1251.
-
1–3 мм фолликулы развиваются волнообразно в связи со скачками концентрации ФСГ в плазме;
-
1–3 мм фолликулы прекрасно реагируют на кратковременные подъемы ФСГ (т.е. в течение 6 часов);
-
отбор доминантного фолликула проявляется намного раньше, чем было прежде задокументировано;
-
доминирование фолликулов характеризуется иерархической последовательностью в течение периода, охватывающего весь всплеск ФСГ (5 дней) (рис. 24.11);
-
дивергенция ( расхождение ) в темпах роста (называемая «отклонением»)80 доминантных и самых больших подчиненных фолликулов становится очевидна, когда самый большой фолликул достигает диаметра 8–9 мм.
Хотя динамика развития фолликулов размером 1 мм и более в настоящее время хорошо охарактеризована, динамика более мелких фолликулов остается загадкой. Раннее исследование продемонстрировало связывание ФСГ с гранулезой фолликулов только с одним слоем клеток гранулезы97 , но было доказано, что они могут не связываться с системой вторичного мессенджера аденилатциклазы на ранних стадиях фолликулогенеза и могут оставаться нефункциональными.98 Однако, стимулирующее воздействие ФСГ на рост преантральных и мелких антральных фолликулов у крупного рогатого скота, воспроизведенное in vitro99 и in vivo100, 101 , указывает на роль ФСГ в развитии ранних стадий преантральных и антральных фолликулов.
