
Доминантные фолликулы Желтое тело
Подчиненные фолликулы Регрессирующие фолликулы
0 10 20
Ов Дни Ов
0 8 16 22
Ов Дни Ов
Диаметр
Диаметр
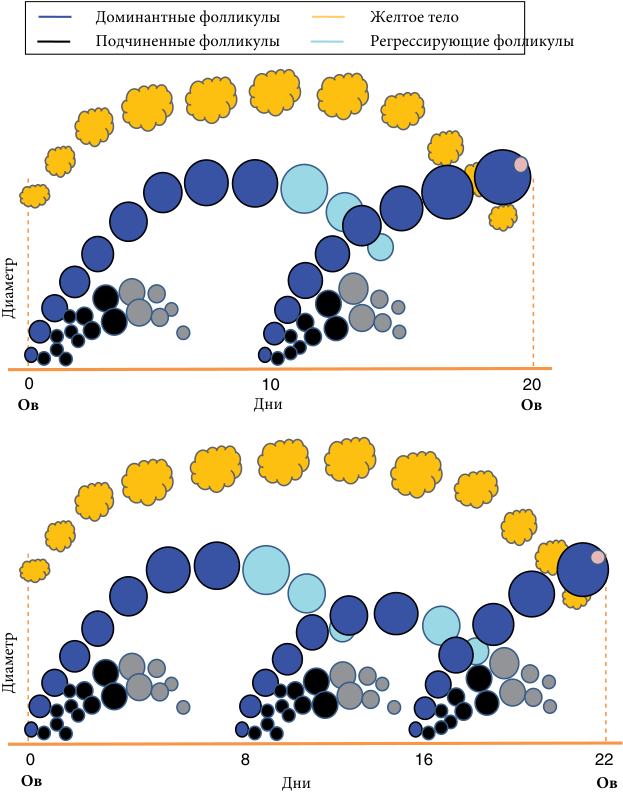
Рис. 24.7 Фолликулярная динамика в течение двухволнового (верхнего) и трехволнового (нижнего) эстральных циклов у крупного рогатого скота. Данные обоих яичников используются для идентификации доминантного фолликула каждой волны (растущий - темносиний; регрессивный - бледно-синий), подчиненных фолликулов каждой волны (растущий - черный; регрессивный - серый), возникновения овуляции, роста и регрессии желтого тела (темно-желтый). Фолликулярная волна у крупного рогатого скота характеризуется внезапным появлением (в течение 2–3 дней) группы небольших фолликулов (n = 8–41), которые растут с одинаковой скоростью в течение примерно 2–3 дней, затем один фолликул "выбирается" для продолжения роста (доминирующий фолликул), а остальные становятся атретичными и регрессируют (подчиненные фолликулы). Часто называемый «21-дневный» эстральный цикл у крупного рогатого скота существует только как среднее между двухволновыми (20 дней) и трехволновыми циклами (22 дня).
Сравнение двухволновых моделей с трехволновыми
Большинство эстральных циклов у крс (> 95%) состоят из двух или трех фолликулярных волн (рис. 24.7).34,35 По некоторым сообщениям преобладал (>80%) двухволновый или трехволновый интеровуляторный интервал, в то время как другие сообщили о более равномерном распределении. По-видимому, у Bos taurus отсутствует специфическая для породы или возраста склонность к конкретной волновой структуре. Тем не менее, увеличение доли трехволновых моделей было связано с низким уровнем питания36,37 и тепловым стрессом.38,39 У Bos indicus не было обнаружено сезонного влияния на волновую картину,40 но у этой модели есть закономерности. Большинство телок Нелоре (65%) демонстрировали трехволновую диаграмму, тогда как большинство коров (83%) демонстрировали двухволновую диаграмму41 . Другие сообщают, что до 27% эстральных циклов у коров Bos indicus состоят из четырех волн развития фолликулов, а у телок только только 7% (рассмотрено в 42 ссылке).
Прогностические факторы, связанные с двух- и трехволновым циклом, могут дать представление о механизмах, контролирующих эти явления, и могут впоследствии помочь в управлении воспроизводством и разработке эффективных протоколов для синхронизации яичников, суперстимуляции и искусственного оплодотворения в фиксированное время. Процент стельности у крупного рогатого скота с двумя или тремя волнами сравнивались43– 45 на основе представления о том, что преовуляторный фолликул в двухволновой структуре растет в течение более длительного периода31 и, следовательно, может содержать относительно старый ооцит. Тем не менее, результаты были противоречивы; в некоторых исследованиях частота беременности между двумя и тремя волнами не различалась,43,45 , тогда как в другом исследовании сообщалось о более низкой частоте беременности после овуляции в конце двухволнового цикла.44
В более позднем исследовании, включающем ультрасонографические данные 91-го интеровуляторного интервала, было проведено сравнение 35 двух- и трехволновых схем развития фолликулов для определения повторяемости и прогностических характеристик данной волновой картины.
Двухволновые циклы были на 3 дня короче трехволновых (19,8 ± 0,2 против 22,5 ± 0,3; P <0,01). Большинство циклов продолжительностью 21 день или менее были двухволновыми (88%; P <0,05), в то время как большинство циклов продолжительностью 22 дня и более были трехволновыми (78%; P <0,05). Доля последовательных циклов, в которых структура оставалась неизменной (то есть повторяемость), была более чем в два раза выше, чем доля циклов, которые меняли схемы (70% против 30%; P <0,01). Повторяемость волнового характера и соотношение двух- и трехволновых схем в стаде не зависели от времени года; другими словами, не зависели от пастбищных (весна и лето) и не пастбищных (осень и зима) сезонов. Интересно, что самая сильная корреляция была между количеством волн в интеровуляторном интервале и продолжительностью фолликулярного доминирования волны-1. Продолжительность доминирования доминирующего фолликула волны 1 была на 3 дня дольше, а начало регрессии было позже в двухволновых циклах, чем в трехволновых (P <0,01). Доминирование 1-й волны было связано с последующей задержкой достижения максимального диаметра доминирующим фолликулом 2-й волны, а также с ранним началом лютеолиза (рис. 24.7). Результаты подтвердили гипотезу о том, что факторы, которые влияют на развитие доминантного фолликула волны-1, ответственны за регулирование волновой картины (за количество волн ).
С другой стороны, желтое тело беременности было связано с отрицательным внутрияичниковым влиянием на доминантный фолликул.46,48 Доминирующие фолликулы последовательных волн были чаще (75–80%) обнаружены в яичнике, противоположном желтому телу во время беременности. Причина отрицательной локальной взаимосвязи между желтым телом и фолликулами неизвестна, но она может быть напрямую связана с концептусом ( развивающийся плод и окружающие его плодные оболочки ), а не с желтым телом. Это подтверждают наблюдения, согласно которым не возникало овариальной асимметрии во время первых двух фолликулярных волн у стельных коров или в 10-ти последовательных фолликулярных волнах у непокрытых телок, обработанных прогестероном.33 Последнее наблюдение, однако, опровергается тем фактом, что экзогенный прогестерон не предотвращал лютеолиз у обработанных телок; регрессия желтого тела произошла в ожидаемое для небеременных животных время, независимо от лечения прогестероном. Тем не менее, экспериментальный проект, включающий гистерэктомию ( удаление матки) во время середины диэструса, позволил провести прямое сравнение эффектов персистирующего желтого тела из-за гистерэктомии или беременности.49 Результаты показали, что одностороннее ослабление развития фолликула было обусловлено концептом или ипсилатеральным беременным рогом матки, а не желтым телом.
Два яичника, одна волна
Два яичника действуют как единое целое - фолликулярные волны одного яичника происходят во взаимосвязи с другим. Яичники реагируют в унисон ( совместно) на факторы, регулирующие динамику фолликулярной волны, поэтому фолликулярная волна - это результат роста множества фолликулов в обоих яичниках (рис. 24.6 и 24.7). В исследовании внутриовариальных отношений между фолликулами и желтым телом Ginther и соавт.46 пришли к выводу, что доминантный фолликул подавляет подчиненных и новая волна возникает скорее через системные, чем через локальные пути. Присутствие доминантного фолликула в одном яичнике не вызывало такую же картину в другом яичнике. Следовательно, не было обнаружено внутрияичниковых взаимоотношений, влияющих на выбор места возникновения последовательных доминантных фолликулов во время эстрального цикла; другими словами, сторона ановуляторных и овуляторных доминантных фолликулов была случайной. Эти наблюдения согласуются с результатами ранних исследований о воздействии односторонней овариэктомии. Удаление яичника с самым большим фолликулом привело к увеличению развития фолликула в оставшемся яичнике, но удаление яичника при отсутствии на нем самого большого фолликула не привело к такому компенсаторному эффекту (цитируется в [46]). В то время как внутрифолликулярные (аутокринные и паракринные) факторы важны для роста, развития и гибели отдельного фолликула, нет убедительной документации in vivo о непосредственном влиянии одного фолликула на развитие/регрессию его соседей.
Асимметрия в динамике фолликулов в левом и правом яичниках использовалась для выяснения разницы местных и системных механизмов контроля функции яичников, а некоторые сообщили о большей фолликулярной активности и доле овуляций в правом яичнике у крупного рогатого скота (~ 60%),12, 22 в то время как другие сообщают об отсутствии таких различий.26,31 Фолликулярная асимметрия яичников также объясняется наличием желтого тела. У овец47 и крупного рогатого скота было зарегистрировано положительное внутрияичниковое влияние желтого тела на развитие мелких антральных фолликулов (≤3 мм)21 , но положительный эффект не распространялся на крупные доминантные фолликулы.
Гормональное взаимодействие, контролирующее динамику фолликулярной волны
Результаты ранних исследований динамики фолликулов породили гипотезу о том, что доминантный фолликул подавляет рост подчиненных в существующей волне и подавляет появление следующей фолликулярной волны.31,32 В поддержку этой гипотезы выступает серия исследований, включающих системное лечение с использованием белковой фракции фолликулярной жидкости и электрокоагуляции доминирующего фолликула.50–52 Прикладные последствия этих результатов были немедленными и далеко идущими, и ознаменовали новую эру в синхронизации яичников и суперстимуляции крупного рогатого скота.53–55
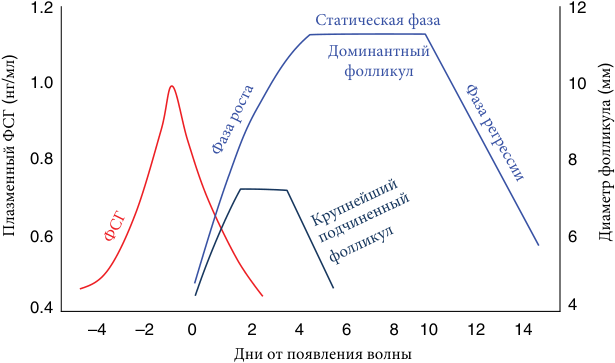
Появление фолликулярной волны и отбор доминантного фолликула имеют причинно-временную связь с повышением и понижением циркулирующих концентраций фолликулостимулирующего гормона (ФСГ)51 (рис. 24.8). Появлению фолликулярной волны предшествует всплеск концентрации ФСГ в плазме как спонтанных, так и индуцированных волн.51,56 Всплески ФСГ, предшествующие каждой волне, имеют одинаковую величину: скачки в середине цикла схожи по амплитуде и ширине с преовуляторным выбросом гонадотропина.51,56 Фолликулярные продукты, особенно из доминантного фолликула, ответственны за подавление высвобождения ФСГ и, следовательно, появление следующей фолликулярной волны57 (рис. 24.9). Прямая связь между числом фолликулов, возникающих в ответ на всплеск ФСГ, и последующей степенью подавления ФСГ58–60 подтверждает, что все фолликулы новой волны способствуют подавлению ФСГ.
Эстрадиол, ингибин-А и -В являются основными фолликулярными продуктами, ответственными за подавление ФСГ. 57,61–65 Ингибин-А вырабатывается всеми небольшими растущими фолликулами волны и, по-видимому, является наиболее важным супрессором ФСГ в течение первых 2-х дней появления волны; эстрадиол, секретируемый из доминантного фолликула, является наиболее важным супрессором ФСГ после этого периода.66–69 Надир (самый низкий уровень) в ФСГ достигается через 4 дня после появления волны, и уровни остаются низкими в течение следующих 2-3 дней.
1.2 12
Статическая фаза
Доминантный
фолликул
1.0 10
0.8 8
0.6 6
0.4 4
–4 –2 0 2 4 6 8 10 12 14
Дни от появления волны
Крупнейший
подчиненный
фолликул
Фаза роста Фаза регрессии
ФСГ
/ ()Плазменный ФСГнгмл ()Диаметр фолликуламм
Рис. 24.8 Временная и причинная взаимосвязь между скачками циркулирующих концентраций ФСГ и появлением фолликулярной волны у крупного рогатого скота. Пиковые концентрации ФСГ возникают за день до появления фолликулярной волны (4 мм) и снижаются до надира через 3 дня после появления волны в то время, когда доминантный фолликул можно отличить от подчиненных. Развитие доминантного или подчиненного фолликула может быть разделено на фазу роста (лучше всего характеризуемую квадратным уравнением), статическую фазу и фазу регрессии (лучше всего характеризуемую простыми линейными уравнениями). Данные Adams и др .51, 53
В конце периода доминирования (т.е. при овуляции или в середине статической фазы ановуляторного доминантного фолликула) циркулирующие концентрации ФСГ начинают расти в течение следующих 2-х дней и достигают пика примерно за 12–24 часа до визуального появления следующей фолликулярной волны, когда диаметр будущего доминантного фолликула составляет 4–5 мм. Если удаляется существующий доминантный фолликул (т. е. фолликулярная абляция), всплеск ФСГ начинается в течение следующих 12 часов и приводит к появлению новой фолликулярной волны в течение следующих 24 часов.52,70 Интересно, что ФСГ снова повышается только тогда, когда концентрации ингибина-A достигают надира, несмотря на то, что эстрадиол снижается за 2 дня до этого.63 Обратная связь между концентрацией циркулирующего прогестерона и ростом доминантного фолликула была предположена в результате ряда наблюдений: 1) в трехволновых эстральных циклах максимальный диаметр доминирующего ановуляторного фолликула был больше для волны-1 (при минимальном лютеиновом влиянии во время фазы роста) чем для волны-2 (при максимальном лютеиновом влиянии); 2) максимальный диаметр, достигаемый доминантным ановуляторным фолликулом, был больше для волны-1, чем для всех последующих волн у стельных и неосемененных телок, обработанных прогестероном; и 3) высокие концентрации прогестерона (эндогенный плюс экзогенный) привели к меньшему максимальному
диаметру доминантного фолликула волны-2 по сравнению с последующими волнами (только экзогенный прогестерон) у телок, обработанных прогестероном (пересмотрено в ссылке 71). Причинно-следственная связь была установлена в исследованиях, в которых было показано, что прогестерон подавляет доминантный фолликул во время фазы его роста дозозависимым образом71 благодаря отрицательному влиянию прогестерона на пульсирующее выделение лютеинизирующего гормона (ЛГ).72-74
И наоборот, низкие концентрации прогестерона приводили к чрезмерной персистенции доминантного фолликула, задержке роста ФСГ и задержке появления следующей волны.71 Слишком большой доминантный фолликул в ситуации с низким уровнем прогестерона считался бы патологической фолликулярной кистой из-за его размера и персистенции в течение более 10 дней при отсутствии желтого тела.75,76 Низкий уровень воздействия прогестерона (и, следовательно, более слабое ингибирование ЛГ) в то время, когда доминантный фолликул обычно перестает расти, является основным компонентом этиологии фолликулярных кист яичников.71
Отбор доминантного фолликула
У моноовулярных видов термин «отбор» относится к процессу, посредством которого отдельный фолликул становится функционально и морфологически доминирующим над другими фолликулами волны. У крупного рогатого скота механизм отбора доминантного фолликула основан на относительной зависимости фолликулов в волне от ФСГ и их относительной чувствительности к ЛГ. Временный подъем ФСГ обеспечивает достаточный рост фолликулов, так что некоторые (не все) фолликулы приобретают чувствительность к ЛГ. Способность реагировать на ЛГ наделяет фолликул способностью выживать без ФСГ. Пока неясно, когда именно начинается процесс, но выбор доминирующего фолликула связан со снижением уровня ФСГ в кровообращении в течение первых 3 дней волны.51,77 Небольшие фолликулы возникающей волны (<6 мм) зависят от повышенных циркулирующих концентраций ФСГ, необходимых для дальнейшего развития. На фоне пост-всплескового снижения ФСГ рост большинства фолликулов волны прекращается, и они начинают регрессировать в течение 2–5 дней после появления. И наоборот, фолликул, которому суждено стать доминантным, может поддерживать пролиферацию клеток и выработку эстрадиола, несмотря на снижение концентрации ФСГ. Эта способность, повидимому, достигается благодаря поддержанию высокой экспрессии мРНК рецептора ФСГ и аффинности ( прочности ) связывания ФСГ.28,29,78,79
