
Увеличение размера лютеиновых клеток во время фазы формирования и уменьшение во время фазы регрессии параллельно секреции прогестерона. Во время проэструса регрессирующее желтое тело уменьшается в весе, в объемной плотности лютеиновых клеток и компонентах кровеносных сосудов, а также в выработке прогестерона. Наблюдается одновременное увеличение соединительной ткани и гиалинизация кровеносных сосудов. Отдельные лютеиновые клетки претерпевают дегенеративные изменения, выражающиеся в уменьшении размера клеток и накоплении крупных липидных капель в цитоплазме. Эти морфологические изменения связаны с прогрессивными изменениями в концентрации прогестерона в плазме от менее 2 нг/мл через 3 дня после овуляции до примерно 4 нг/мл через 6 дней и пиковых концентраций более 6 нг/мл через 10 и 14 дней после овуляции с последующим снижением уровня через 16 дней из-за лютеолиза.71
Ультрасонографическое обнаружение и морфология желтого тела
Надежность и точность УЗИ в определении желтого тела и связь между атрибутами ультразвукового изображения и функцией желтого тела имеют важное значение в клинических условиях для оценки нормальности и стадии цикла. При сравнении ультразвукового исследования с грубой анатомической диссекцией ( препарированием ) результаты совпали у 83% неопытных операторов и 97% опытных операторов. Растущее желтое тело было обнаружено ко 2-му дню (день 0 = овуляция) в более чем 95% из 80 эстральных циклов, а регрессирующее желтое тело было обнаружено в среднем через 1,4 дня в следующем эстральном цикле.133
Большая часть (40–70%) нормальных желтых тел во время своего развития имеет центральную заполненную жидкостью полость; остальные являются плотными структурами (рассмотрено в ссылке 130). Полость желтого тела заполнена серозным транссудатом и остается безэховой в течение всего своего существования, в отличие от организованного сгустка и появления сети эхогенных линий в центральной полости желтого тела лошади. По мере созревания желтого тела центральная полость становится меньше и часто исчезает. Концентрации прогестерона в плазме при желтом теле с центральной полостью или без нее не отличаются. Профиль (площадь среза ) области лютеиновой ткани (минус площадь полости, если она имеется), обнаруженный с помощью ультразвука, соответствовал профилю концентрации прогестерона в плазме, за исключением того, что во время лютеолиза прогестерон начал уменьшаться за 1-2 дня до того, как регрессия стала видна на УЗИ.134
Изменения атрибутов ультразвукового изображения (эхотекстуры, характерных черт ) желтого тела также отражают функцию желтого тела крупного рогатого скота (рис. 24.14).130 Более высокие значения пикселей, полученные с помощью компьютерного количественного анализа эхотекстуры во время образования лютеиновой железы (метэструс) и регрессии (проэструс) имели схожие закономерности, наблюдаемые у лошадей и кобыл пони при субъективной оценке эхотекстуры135 и пиксельного анализа136 желтого тела, зарегистрированные in vivo с помощью трансректальной ультрасонографии. Для проверки гипотезы о том, что ультразвуковые изображения могут быть «окрашены» в цифровом виде, были разработаны компьютерные алгоритмы для создания «виртуальной гистологии» посредством тонких различий в эхотекстуре, возникающих из-за различных структур яичников.137 Количественный анализ показал, что алгоритмы «палочек» увеличивали статистические различия в эхотекстуре стромы яичника в сравнении с желтым телом, что стало первым шагом к виртуальной гистологии ультразвуковых изображений и пониманию динамических изменений в яичнике на микроскопическом уровне безопасным, повторяемым и неинвазивным способом.138
Динамика кровотока в желтом теле
Основные изменения в микроциркуляторном русле яичника присходят во время роста и регрессии крупных фолликулов и желтого тела.130,139,140 Для изучения сосудистого кровотока были использованы три варианта метода Допплера: (i) спектральный Допплер используется для отображения сосудистого потока с течением времени в форма волны; (ii) цветовой Допплер позволяет наложить информацию о направлении сосудистого потока на серое изображение в B-режиме; и (iii) силовой Допплер используется для наложения информации о низкоскоростном сосудистом потоке (без информации о направлении) на изображение в оттенках серого в B- режиме. Допплеровские исследования предоставили визуальные доказательства изменений со временем в кровотоке в пределах преовуляторной стенки фолликула коров, связанных с выбросом ЛГ.140,141 Первоначальные результаты показывают, что в преовуляторном фолликуле коровы может происходить двухфазная реакция кровотока на ЛГ. Первоначальное увеличение кровотока сопровождалось зубчатым слоем фолликулярной гранулезы в течение 3 часов после лечения ЛГ, а второе увеличение кровотока было обнаружено примерно через 20 часов после введения ЛГ.141 У крупного рогатого скота отмечены отчетливые изменения в характере кровотока во время лютеогенеза, лютеолиза и ранней беременности, а также в ответ на гонадотропин-рилизинг-гормон (ГнРГ), простагландин ПГФ, ПГЕ, PGI, окситоцин и синтазу оксида азота (группа ферментов, катализирующих образование оксида азота и цитруллина из аргинина, кислорода и NADPH) .140,142– 146
Лютеолиз
В начале 1970-х годов было обнаружено, что ПГФ2α является естественным лютеолизином у крупного рогатого скота147,148 , и с тех пор ПГФ2α стал наиболее часто используемым средством для элективной индукции и синхронизации эструса у крупного рогатого скота.149–151 Пульсирующее высвобождение ПГФ2α из матки инициирует лютеолиз, начинающийся за 4–6 дней до овуляции.152,153 Ранние исследования показали, что зрелость желтого тела во время лечения простагландином влияла на лютеолитический ответ;154 ПГФ2α не вызывал эффективно индукции лютеолиза в течение первых 5 или 6 дней после эструса. Ранее считалось, что недостаточная отзывчивость является результатом отсутствия рецепторов ПГФ2α в незрелом желтом теле, но более поздняя работа опровергла эту гипотезу, продемонстрировав присутствие рецепторов в желтом теле уже через 2 дня после овуляции.155 Причина устойчивости незрелого желтого тела к ПГФ2α остается неясной, но некоторые предполагают, что зрелое желтое тело может иметь виток положительной обратной связи, включающий лютеиновый окситоцин ( окситоцин, помимо гипофиза, синтезируется в лютеиновых клетках яичников, матке и плодных оболочках) и TNF, которые вызывает высвобождение эндометрием ПГФ2α и поддерживает процесс лютеолиза.156,157 Если это представление верно и незрелое желтое тело не обладает витком положительной обратной связи, то можно ожидать, что множественные инъекции ПГФ2α завершат лютеолитический процесс в ранней стадии желтого тела. Ввиду этой связи лютеолиз и овуляция были индуцированы у 56 из 60 телок (93%), которым вводили ПГФ2α утром и вечером на 4, либо на 5 день после эструса, в двух исследованиях, связанных с суперстимуляцией яичников относительно появления фолликулярной волны.158,159 Недавние исследования показывают отчетливый причинно-следственный баланс между лютеотрофным эффектом эндогенных импульсов ЛГ и лютеолитическим эффектом импульсов ПГФ2α; повторные импульсы ПГФ2α из матки в конечном итоге преодолевают реанимационные эффекты ЛГ до полного лютеолиза (пересмотрено в работе 160).
(a)
12
10
8
6
4 Препубертатные
телята
0 4 8 12 16 20
(b)
12
10
8
6
4 Стельные коровы
0 4 8 12 16 20
Дни от появления волны
Увеличение ЛГ
Снижение ЛГ
56 недель
1 месяц
42 недели
2 недели
3 месяца
6 месяцев
9 месяцев
14 недель
34 недели
()Диаметр доминантного фолликуламм
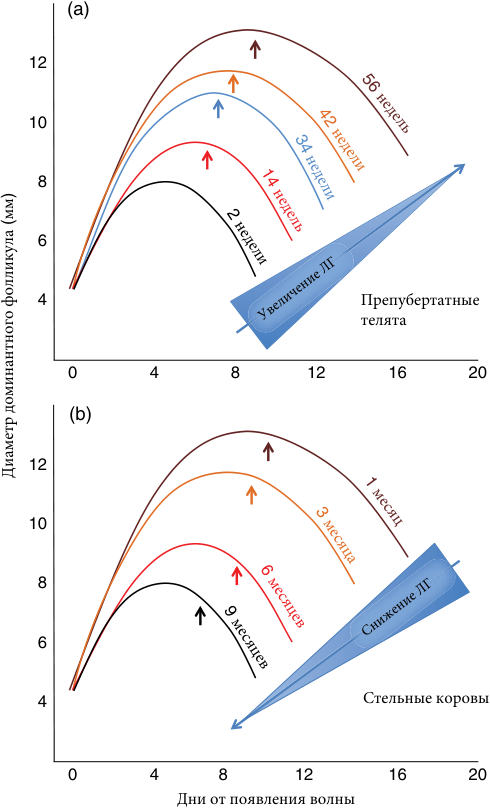
Рис. 24.15 Профили диаметра доминантного фолликула в фолликулярных волнах во время препубертатного развития у (а) телят и (б) во время беременности у коров по данным ежедневного трансректального УЗИ. (а) Профиль изображен в возрасте 56 недель и представляет собой волну, непосредственно предшествующую половому созреванию (первая овуляция; данные Adams et al.158 ; Evans и др.162 ). В возрасте от 14 до 56 недель межволновой интервал (обозначенный стрелками) увеличился с 6,8 до 9,2 дня. (б) У беременных коров с 1 до 9 месяца беременности межволновой интервал (обозначен стрелками) уменьшился с 9,6 до 6,4 дня. Данные Ginther et al.48 ; Bergfelt и др.33 ; Ginther и др.164 ). Изменения в профилях доминирующих фолликулов связаны с изменениями циркулирующих концентраций ЛГ.
Овариальная динамика во время разных репродуктивных состояний
Препубертатный и перипубертатный периоды
В единственном исследовании фолликулярной динамики яичника в препубертатном и перипубертатном периодах использовалась трансректальная ультрасонография для мониторинга ежедневных изменений в развитии фолликула у телят в возрасте 2 недель; мониторинг телят проводился регулярно в течение первого года жизни.161–163
Половое созревание определяли по моменту первой овуляции, и было установлено, что у телок герефорд-кроссов, использованных в исследовании, оно наступает в 52–56 недель (12–13 месяцев). Примечательно, что во всех исследованных возрастных категориях развитие фолликулов происходило волнообразно, как у взрослых особей. Индивидуальное развитие фолликула характеризовалось фазами роста, статики и регрессии, и с каждым появлением фолликулярной волны были связаны периодические скачки концентрации ФСГ в сыворотке (см. Рис. 24.8). Скачки ФСГ охватывали в среднем 3 дня и были максимальными за 1 день до появления волны. Был сделан вывод, что механизмы, контролирующие хорошо упорядоченные явления возникновения волн, отбора и регрессии фолликулов у зрелого крупного рогатого скота, также существовали и у препубертатных телок.
Профиль диаметра доминантного, а также самого большого подчиненного фолликула в препубертатном периоде увеличивался с возрастом (рис. 24.15). Скорость увеличения была наибольшей в возрасте от 2 до 8 недель и затем в возрасте от 24 до 40 недель и была связана с периодами роста средних концентраций ЛГ.162 Количество обнаруженных фолликулов (≥3 мм в диаметре) также резко возросло в возрасте от 8 до 14 недель, а затем, по-видимому, уменьшалось по мере приближения полового созревания во временной связи с ранним повышением и последующим конусообразным снижением средних концентраций ФСГ. Причина развития раннего повышения циркулирующих концентраций ЛГ и ФСГ в возрасте от 4 до 14 недель неясна, но она может отражать начальное созревание оси гипоталамус-гипофиз и последующую чувствительность к отрицательной обратной связи со стороны яичниковых стероидов. Это мнение подтверждается данными, показанными на рисунке 24.15, а также наблюдаемыми изменениями в интервале между появлением доминантных фолликулов последовательных волн (межволновой интервал). Интервал между волнами был относительно длинным (8–9 дней) в возрасте 2 и 8 недель, но стал значительно короче (6,8 дня) в 14 недель. Далее интервал между волнами постепенно увеличивался (7–9 дней) до полового созревания.
Изучение данных за период, непосредственно предшествующий первой овуляции и охватывающий последующие два интеровуляторных интервала, выявило уникальные характеристики в начале овуляторной цикличности у коров.163 Первый овуляторный цикл был коротким (7,7 ± 0,2 дня), а первая овуляция произошла после того, как доминантный фолликул вошел в статическую фазу; то есть доминантный фолликул был старше во время овуляции, чем его аналог в более поздних циклах. Первое желтое тело (из состарившегося овуляторного фолликула) было меньше и короче, чем желтое тело последующих циклов, что привело к сокращению интеровуляторного интервала. Второй интеровуляторный интервал имел нормальную продолжительность (20,3 ± 0,5 дня) и состоял из двух или трех фолликулярных волн. Средние концентрации эстрадиола и ЛГ в сыворотке, а также частота пульсации ЛГ увеличивались с приближением первой овуляции, но концентрация ФСГ - нет. Как отмечалось ранее, скачки ФСГ были связаны с появлением фолликулярной волны. Эти результаты демонстрируют поразительное сходство между началом полового созревания у молодых телок и возобновлением овуляторной цикличности у новотельных коров (см. ниже).
Фолликулярное развитие в период стельности
Результаты трех отдельных исследований подтверждают, что волновое явление возникает на протяжении всей беременности, за исключением последних 21 дня, когда не было обнаружено никаких фолликулов размером 6 мм или более.33,48,164 В присутствии прогестерона (эндогенного или экзогенного),33 ановуляторные фолликулярные волны появляются через равные промежутки времени. Однако максимальный диаметр доминирующего фолликула последовательных волн уменьшился и был связан с последовательным уменьшением межволнового интервала (то есть период доминирования стал короче) (рис. 24.15). Первоначальное снижение произошло сразу после первой фолликулярной волны беременности, а последующее резкое снижение произошло после четвертого месяца беременности. Прогестерон подавляет рост доминантного фолликула дозозависимым образом71 , а прогрессирующее снижение фолликулярного доминирования, наблюдаемое у беременных коров, объясняется подавляющим воздействием на ЛГ повышения уровня прогестерона в середине беременности и повышением уровня эстрогена в ближайшей перспективе.164
У стельных коров, так же как у нестельных, периодические скачки ФСГ были связаны с появлением фолликулярных волн. Кроме того, на величину и частоту всплесков ФСГ повлиял размер доминантного фолликула. Волны, в которых доминантный фолликул достигал диаметра 10 мм или более, ассоциировались ( были связаны) с более длинными интервалами между последовательными скачками ФСГ и более низкими концентрациями ФСГ. Наоборот, волны с меньшими доминирующими фолликулами (6–9 мм) были связаны с более короткими интервалами и более высокими концентрациями ФСГ. Подобная взаимосвязь между ФСГ и динамикой фолликулярной волны наблюдалась у препубертатных телят.
Фолликулярное развитие в послеродовой период
Было показано, что у всех видов, у которых оно изучалось, лактация и сосание оказывают подавляющее влияние на фолликулярное развитие яичников. Степень подавления у крупного рогатого скота была связана в первую очередь с энергетическим балансом (состояние питания, упитанность, молочная продуктивность, паритет ( количество предыдущих отелов )) и предродовыми расстройствами (метрит, эндометрит, мастит, хромота) (рассмотрено в [165–167]). Интервал от отела до первой овуляции у молочных коров составлял в среднем 21 день (от 10 до 55 дней),168 , но был значительно длиннее у первородящих коров, чем у многоплодных (31,8 ± 8,3 дня против 17,3 ± 6,3 дня).169 Появление первой фолликулярной волны после отела варьировалось от 2 до 7 дней (в среднем 4,0 дня) у голштинских первотелок164 , а доминирующий фолликул первой послеродовой волны овулировал у 14 из 19 (74%) многоплодных фризских коров170 в среднем на 27-й день (диапазон 12– 58).171 У мясного скота возобновление фолликулярных волн наблюдалось в течение 10 дней после отела,172 , но первая овуляция происходила несколько позднее, чем у молочного скота (в среднем через 30,6 дня) и лишь в редких случаях это был доминантный фолликул первой послеродовой волны (11%).172
Первая послеродовая овуляция часто сопровождается отсутствием эстрального поведения и короткой лютеиновой фазой (обзор в 173). Первая овуляция не сопровождалась течкой у 17 из 18 (94%) новотельных молочных коров170 , а продолжительность первого послеродового интеровуляторного интервала варьировалась в зависимости от того, когда появился первый фолликул, предназначенный для овуляции. Первый послеродовой интеровуляторный интервал примерно у 25% молочных коров был коротким (в среднем 11,2 дня), еще у 25% имел нормальную продолжительность (в среднем 20,6 дня) и был длинным (в среднем 30,0 дня) у оставшихся 50% коров.170
При коротких циклах первый фолликул, предназначенный для овуляции обнаруживали позднее (≥10 дней после отела), тогда как при нормальных и длинных циклах его находили раньше (обычно ≤10 дней). Эти результаты отлично согласуются с данными другого исследования168 , в котором после коротких послеродовых ановуляторных периодов (около 14 дней) следовал цикл нормальной длины (18–21 день), а после более длинных послеродовых ановуляторных периодов (21–25 дней) - короткий цикл (<14 дней). У большинства мясных коров (78%) овуляция произошла во второй, третьей или четвертой послеродовой фолликулярной волне, и, как и у молочного скота, первые овуляции, произошедшие через 20 дней (16 из 18 коров), сопровождались коротким циклом (14 из 16 коров).172 Короткие циклы ассоциировались с короткой лютеиновой фазой, меньшим желтым телом и более низкими концентрациями циркулирующего прогестерона. Короткая лютеиновая фаза после первой послеродовой овуляции объясняется преждевременным высвобождением ПГФ2α маткой в результате меньшего количества прогестероновых рецепторов и большего количества окситоциновых рецепторов в клетках эндометрия173 , однако, является ли лютеиновая недостаточность результатом изменения преовуляторной дифференциации гранулезы/теки клетки на фоне низкого уровня ЛГ еще предстоит проверить.
Фолликулярное развитие в старости
Снижение фертильности при материнском старении было хорошо задокументировано у крупного рогатого скота и человека.174–176 Эндокринные и овариальные признаки репродуктивного старения были охарактеризованы в серии исследований, в которых старые коровы (≥15 лет) сравнивались со своими молодыми дочерьми (≤ 5 лет).177–179 Средние концентрации циркулирующего ФСГ были стабильно выше у старых коров, чем у их дочерей, но закономерность в секреции ФСГ и появлении волн у старых коров сохранялась, т. е. каждой фолликулярной волне яичника предшествовал всплеск циркулирующего ФСГ. Несмотря на повышенный уровень ФСГ, в каждую фолликулярную волну у старых коров было вовлечено меньше фолликулов размером 4–5 мм по сравнению с их дочерьми. Эта интересная обратная взаимосвязь между количеством фолликулов, набранных в волну, и пиковыми концентрациями ФСГ также была сообщена в исследованиях, согласно которым число фолликулов волны у индивидуумов повторяется59,102 . Продолжительность интеровуляторного и межволнового интервалов не менялась с возрастом, но овуляторный фолликул старых коров с двухволновым циклом был меньше во время овуляции, чем у молодых коров. Аналогичным образом диаметр желтого тела был меньше, а концентрация прогестерона в плазме, как правило, была ниже у старых коров по сравнению с молодыми. Влияния возраста на концентрацию циркулирующего ЛГ или частоту пульса ЛГ не выявлено.
Чувствительность ( ответная реакция ) оси гипоталамус-гипофиз у молодых и старых коров была изучена в исследовании, включающем синхронизацию яичников на основе эстрадиола/ прогестерона.178 Стероидная терапия подавляла циркулирующий ФСГ в обеих возрастных группах, и интервалы между лечением и последующим пиком ФСГ и появлением волны не отличались между старыми и молодыми коровами. В исследовании реакции яичников на суперстимулирующую терапию179 в фолликулярную волну было вовлечено меньше мелких (<5 мм) фолликулов, и у старых коров появилось меньше фолликулов всех размерных категорий после суперстимуляции по сравнению с их молодыми дочерьми. В среднем у молодых дочерей было на восемь овуляций на корову больше, чем у их матерей.
