
(a) (b)
40 60 1 st Синхр. 2 nd Синхр. Суперстим.
30 Стадо (n = 141)
40
20
–1σ В среднем +1σ 20
10 по стаду
Группа низких Группа высоких
значений (n = 20) значений (n = 16)
0
10 15 20 25 30 35 40 45 50 >2 mm >2 мм >5 мм
Количество фолликулов ≥2 мм Количество фолликулов
Суперстимуляция = 0.2436 + 0.7140 (≥ 2 мм)
( скорректированный r 2 - коэффициент детерминации= 40.4%)
Количество коров
Количество фолликулов
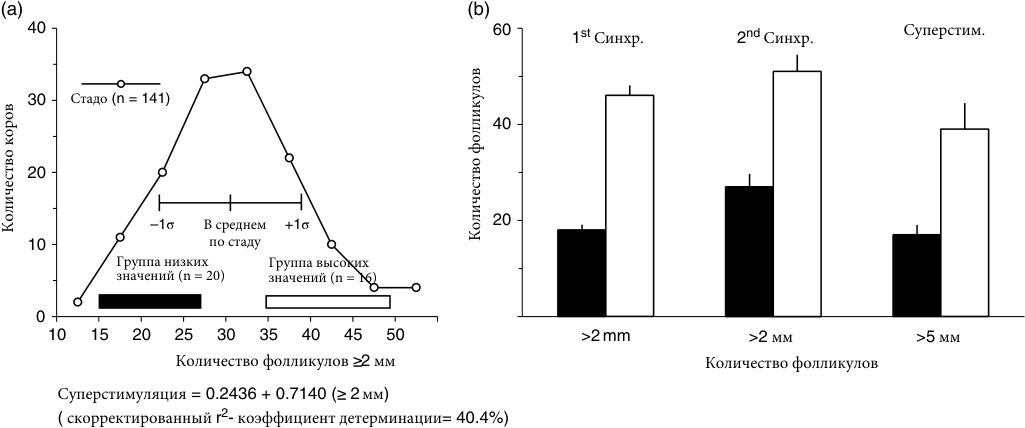
Рис. 24.16 Частотное распределение в стаде ( n = 141, сплошная линия) мясных коров Герефорд-кроссов на основе количества фолликулов, обнаруженных в обоих яичниках с помощью ультрасонографии во время появления фолликулярной волны. (a) На основе подсчета антральных фолликулов, была сделана выборка коров из нижних (n = 20, черная полоса) и верхних (n = 16, белая полоса) значений для последовательной синхронизации и суперстимуляции, чтобы определить какое влияние оказывает количество антральных фолликулов и их повторяемость. (b) Количество фолликулов, обнаруженных при появлении первой и второй синхронизированных волн и после суперстимулирующего лечения яичников в группе низкого уровня (черные столбцы) и группе высокого уровня (белые столбцы). Количество фолликулов было значительно больше в группе высокого уровня после обеих синхронизаций и после суперстимуляции. Суперстимуляторный ответ был простым линейным образом связан с количеством фолликулов, обнаруженных при появлении волны [суперстимуляторный ответ = 0,2436 + 0,7140 (количество фолликулов> 2 мм); скорректированный r2 = 40,4%]. Адаптировано из Singh J, Dominguez M, Jaiswal R, Adams G. Простой ультразвуковой тест для прогнозирования суперовуляторной реакции у крупного рогатого скота. Териогенология 2004;62:227–243.
Наконец, данные исследования, в котором эмбрионы от старых коров и их дочерей были перенесены коровам-реципиентам соответствующего возраста179 , показали, что ооциты от старых коров были заметно менее компетентными ( с пособными к созреванию ) и давали только половину от количества эмбрионов, произведенных их дочерьми.
Выводы и практическое значение
Знание нормальной фолликулярной и лютеиновой динамики, а также механизмов, контролирующих эту динамику, оказали непосредственное влияние на клиническую и племенную практику ведения скотоводства. Концепции, представленные на Рисунке 24.9, были использованы в качестве основы при разработке протоколов синхронизации яичников для осеменения в фиксированное время и суперстимуляции яичников в целях получения и переноса эмбрионов in vivo и in vitro, а также для контроля размножения в рамках программ управления молочнымми и мясных стадами. Концепции волнового паттерна развития и отбора фолликулов подразумевают предсказуемые различия в количестве и степени зрелости определенных классов фолликулов (например, растущие, статические или регрессивные, доминантные и подчиненные фолликулы), которые способны или не способны реагировать на определенные виды гормональной терапии. Важно отметить, что динамика развития фолликулов перекрывается различным влиянием желтого тела. Ниже приведены некоторые примеры влияния эндогенных яичниковых ритмов на практические методы.
Синхронизация
У коров, у которых лютеолиз эффективно индуцируется введением ПГФ2α, последующий эструс распределяется в течение 6-дневного периода.180 Наиболее устойчивый ответ (то есть наименьшая вариабельность интервала до эструса) на лечение ПГФ2α наблюдается во время раннего диэструса (7 и 8 дней после охоты) и более поздний диэструс (15 дней после охоты), чем после лечения во время середины диэструса (через 10–13 дней после охоты).180
Последующие исследования подтвердили, что по большей части эти вариации обусловлены фолликулярным статусом во время лечения. Когда доминантный фолликул волны находится в поздней стадии роста (≥9 мм) или в ранней статической фазе, введение простагландина приведет к овуляции этого фолликула в течение 2–3 дней, тогда как лечение после средней и поздней статической фазы (т. е. когда он больше не жизнеспособен) приведет к овуляции доминантного фолликула следующей волны через 4–5 дней после инъекции. То есть, если ПГФ2α назначается в конце периода функционального доминирования одного фолликула, требуется несколько дней для того, чтобы новый доминантный фолликул достаточно вырос для овуляции.153,181,182
Подсчет антральных фолликулов
Количество фолликулов, обнаруживаемых с помощью ультрасонографии, широко варьируется между коровами и в зависимости от статуса фолликулярной волны.35,59,96,102 Однако, различия в количестве фолликулов не связаны с волновой последовательностью (то есть аналогичны для волны 1, волны 2 и волны 3) или количеством волн за эстральный цикл (т. е. двух- и трехволновые паттерны; рассмотрено в работе 35). Несмотря на то, что особи сильно различаются, свойственное каждой особи количество фолликулов при появлении волны практически всегда повторяется.59,102 . При непосредственном сравнении многофолликулярных коров с мало-фолликулярными102 количество фолликулов, набранных в волну, сильно коррелировало с количеством фолликулов, набранных в последующие волны, и ответная реакция на суперстимуляцию сильно коррелировала с количеством фолликулов, набранных в фолликулярную волну у данной особи (рис. 24.16). Эта особенность в настоящее время составляет основу простого ультразвукового теста для прогнозирования суперстимулирующего ответа у крупного рогатого скота.
В недавнем исследовании влияния ограниченного питания матери до 60% от потребности в течение первого триместра беременности выяснилось, что у телят, рожденных от матерей с ограниченным питанием, количество антральных фолликулов было на 60% меньше по сравнению с телятами, рожденными от матерей, получавших контрольные рационы.183 Кроме того, результаты показывают, что фертильность может быть нарушена у животных с низким количеством антральных фолликулов из-за негативного воздействия на ооциты, на уровень прогестерона и эндометрий по сравнению с животными с высоким количеством антральных фолликулов; молочные коровы в послеродовом периоде с высоким числом антральных фолликулов имели более высокие показатели стельности, более короткий сервиспериод и требовали меньше осеменений в период размножения по сравнению с коровами с низким их количеством.183
Суперстимуляция яичников
Наиболее выраженными первопричинами вариативности ответной реакции на стимуляцию яичников являются состояние фолликулярной волны в момент начала стимулирующего лечения и свойственное особи количество фолликулов, присутствующих во время появления волны. Результаты исследований у крупного рогатого скота подтвердили, что суперстимулирующий ответ (i) хуже, когда лечение начинается после отбора доминирующего фолликула, (ii) лучше, когда лечение начинается во время появления волны, через 1 или 2 дня, и (iii) аналогичен между волной 1 (рост прогестерона) и волной 2 (высокий уровень эндогенного прогестерона (обзор в ссылке 102). Только около 20% (4 или 5 дней) эстрального цикла доступно для начала лечения во время появления фолликулярной волны. Следовательно, большая часть (80%) эстрального цикла не способствует оптимальному суперовуляторному ответу. Можно предположить, что во время появления волны суперстимуляторный ответ составляет приблизительно 70% от числа фолликулов размером 3 мм или более.102 В результате этих выводов суперстимулирующие протоколы у крупного рогатого скота теперь включают синхронизацию появления фолликулярной волны.
Ссылки
-
Hummitzsch K, Irving-Rodgers H, Hatzirodos N и др. . Новая модель развития яичника и фолликулов у млекопитающих. PLOS ONE 2013;8:e55578.
-
McNatty K, Fidler A, Juengel J и др. . Факторы роста и паракринные факторы, регулирующие формирование фолликулов и функции клеток. Mol Cell Endocrinol 2000;163:11–20.
-
Juengel J, Sawyer H, Smith P, Quirke L, Heath D. Происхождение фолликулярных клеток и становление стероидогенеза в яичниках плодов овец. Mol Cell Endocrinol 2002;191:1–10.
-
Gougeon A. Регуляция развития фолликулов яичника у приматов: факты и гипотезы. Endocr Rev 1996;17:121–156.
-
Senger P. Эмбриогенез гипофиза и мужской или женской репродуктивной системы. В кн.: Пути к беременности и родам , 2-е изд. Редмонд, Орегон: Current Conceptions Inc., 2003, с. 44–79.
-
Knight P, Glister C. Возможные местные регуляторные функции ингибинов, активинов и фоллистатина в яичнике. Reproduction 2001;121:503–512.
-
Lussier J, Matton P, Dufour J. Скорость роста фолликулов в яичнике коровы. J Reprod Fertil 1987;81:301–307.
-
Braw-Tal R, Yossefi S. Исследования начала роста фолликулов в яичнике коровы in vivo и in vitro. J Reprod Fertil 1997;109:165–171.
-
Lundy T, Smith P, O’Connell A, Hudson N, McNatty K. Популяции гранулёзных клеток в мелких фолликулах яичника овцы. J Reprod Fertil 1999;115:251–262.
-
Eppig J. Регуляция ооцитом развития и функции фолликулов яичника у млекопитающих. Reproduction 2001;122:829–838.
-
Rüsse I. Оогенез у крупного рогатого скота и овец. Bibl Anat 1983; 24:77–92.
-
Rajakoski E. Фолликулярная система яичников у половозрелых тёлок с особым вниманием к сезонным, циклическим и правосторонне-левосторонним различиям. Acta Endocrinol Suppl 1960;52:1–68.
-
Choudary J, Gier H, Marion G. Циклические изменения пузырчатых фолликулов у крупного рогатого скота. J Anim Sci 1968;27:468–471.
-
Donaldson L, Hansel W. Кистозные жёлтые тела, а также нормальные и кистозные граафовы фолликулы у коровы. Aust Vet J 1968;44:304–308.
-
Marion G, Gier H, Choudary J. Микроморфология фолликулярной системы яичников у крупного рогатого скота. J Anim Sci 1968;27:451–465.
-
Hansel W, Convey E. Физиология эстрального цикла. J Anim Sci 1983;57(прил. 2):404–424.
-
Spicer L, Echternkamp S. Рост, функция и обновление фолликулов яичников у крупного рогатого скота: обзор. J Anim Sci 1986;62:428–451.
-
Staigmiller R, England B. Фолликулогенез у крупного рогатого скота. Theriogenology 1982;17:43–52.
-
Pierson R, Ginther O. Ультразвуковое исследование яичника крупного рогатого скота. Theriogenology 1984;21:495–504.
-
Pierson R, Ginther O. Надёжность диагностического ультразвукового исследования при выявлении и измерении фолликулов и обнаружении жёлтого тела у тёлок. Theriogenology 1987;28:929–936.
-
Pierson R, Ginther O. Популяции фолликулов в течение эстрального цикла у тёлок: II. Влияние правой и левой сторон и внутриовариальное влияние жёлтого тела. Anim Reprod Sci 1987;14:177–186.
-
Pierson R, Ginther O. Популяции фолликулов в течение эстрального цикла у тёлок: I. Влияние дня цикла. Anim Reprod Sci 1987; 124:165–176.
-
Knopf L, Kastelic J, Schallenberger E, Ginther O. Динамика фолликулов яичников у тёлок: проверка гипотезы о двух волнах путём ультразвукового наблюдения за отдельными фолликулами. Domest Anim Endocrinol 1989;6:111–119.
-
Pierson R, Ginther O. Ультразвуковая визуализация яичников и матки у крупного рогатого скота. Theriogenology 1988;29:21–37.
-
Savio J, Keenan L, Boland M, Roche J. Характер роста доминантных фолликулов в течение эстрального цикла у тёлок. J Reprod Fertil 1988;83:663–671.
-
Sirois J, Fortune J. Динамика фолликулов яичников в течение эстрального цикла у тёлок по данным ультразвукового наблюдения в реальном времени. Biol Reprod 1988;39:308–317.
-
Ireland J, Roche J. Гипотезы о развитии доминантных фолликулов в течение эстрального цикла у крупного рогатого скота. В кн.: Roche JF, O’Callaghan D (ред.) Рост фолликулов и частота овуляции у сельскохозяйственных животных . Дордрехт: Martinus Nijhoff, 1987, с. 1–18.
-
Ireland J, Roche J. Развитие неовуляторных антральных фолликулов у тёлок: изменения содержания стероидов в фолликулярной жидкости и рецепторов к гонадотропинам. Endocrinology 1983;112:150–156.
-
Ireland J, Roche J. Рост и дифференцировка крупных антральных фолликулов после спонтанного лютеолиза у тёлок: изменения концентрации гормонов в фолликулярной жидкости и специфического связывания гонадотропинов с фолликулами. J Anim Sci 1983;57:157–167.
-
Ireland J, Fogwell R, Oxender W, Ames K, Cowley J. Выработка эстрадиола каждым яичником в течение эстрального цикла у коров. J Anim Sci 1985;59:674–771.
-
Ginther O, Kastelic J, Knopf L. Состав и характеристики волн развития фолликулов в течение эстрального цикла у крупного рогатого скота. Anim Reprod Sci 1989;20:187–200.
-
Ginther O, Knopf L, Kastelic J. Временные взаимосвязи между процессами в яичниках у крупного рогатого скота в течение эстральных циклов с двумя и тремя волнами развития фолликулов. J Reprod Fertil 1989;87:223–230.
-
Bergfelt D, Kastelic J, Ginther O. Сохраняющееся периодическое появление волн развития фолликулов у неосеменённых тёлок, получавших прогестерон. Anim Reprod Sci 1991;24:193–204.
-
Adams G. Сравнительные особенности развития и отбора фолликулов у жвачных животных. J Reprod Fertil Suppl 1999;54:17–32.
-
Jaiswal R, Singh J, Marshall L, Adams G. Повторяемость вариантов развития фолликулов яичников с 2 и 3 волнами в течение эстрального цикла у крупного рогатого скота. Theriogenology 2009;72:81–90.
-
Murphy M, Enright W, Crowe M и др. Влияние потребления корма на характер роста доминантных фолликулов в течение эстрального цикла у тёлок мясных пород. J Reprod Fertil 1991;92:333–338.
-
Rhodes F, Fitzpatrick L, Entwistle K, Death G. Последовательные изменения динамики фолликулов яичников у тёлок Bos indicus до и после анэструса, вызванного недостаточным питанием. J Reprod Fertil 1995;104:41–49.
-
Badinga L, Thatcher W, Diaz T, Drost M, Wolfenson D. Влияние теплового стресса, вызванного высокой температурой окружающей среды, на развитие фолликулов у лактирующих коров. Theriogenology 1993;39:797–810.
-
Wolfenson D, Thatcher W, Badinga L и др. Влияние теплового стресса на развитие фолликулов в течение эстрального цикла у лактирующих молочных коров. Biol Reprod 1995;52:1106–1113.
-
Zeitoun M, Rodriguez H, Randel R. Влияние сезона на динамику фолликулов яичников у коров брахманской породы. Theriogenology 1996;45:1577–1581.
-
Figueiredo R, Barros C, Pinheiro I, Sole J. Динамика фолликулов яичников у крупного рогатого скота породы нелоре ( Bos indicus ). Theriogenology 1997;47:1489–1505.
-
Bo G, Baruselli P, Martinez M. Характер развития фолликулов у крупного рогатого скота вида Bos indicus и методы управления им. Anim Reprod Sci 2003;78:307–326.
-
Ahmad N, Townsend E, Dailey R, Inskeep E. Связь гормональных профилей и фертильности с наличием двух или трёх волн развития фолликулов яичников до и после осеменения у коров и тёлок мясных пород. Anim Reprod Sci 1997;49:13–28.
-
Townson D, Tsang P, Butler W и др. Связь фертильности с волнами развития фолликулов яичников до осеменения у молочных коров. J Anim Sci 2002;80:1053–1058.
-
Bleach E, Glencross R, Knight P. Связь между развитием фолликулов яичников и частотой наступления беременности у молочных коров с естественными эстральными циклами. Reproduction 2004;127:621–629.
-
Ginther O, Kastelic J, Knopf L. Внутрияичниковые взаимоотношения между доминантными и подчинёнными фолликулами и жёлтым телом у тёлок. Theriogenology 1989;32:787–795.
-
Dufour J, Ginther O, Casida L. Внутрияичниковая связь между жёлтыми телами и фолликулами яичников у овец. Am J Vet Res 1972;33:1445–1446.
-
Ginther O, Knopf L, Kastelic J. Динамика фолликулов яичников у тёлок на ранних сроках беременности. Biol Reprod 1989;41:247–254.
-
Thatcher W, Driancourt M, Terqui M, Badinga L. Динамика развития фолликулов яичников у крупного рогатого скота после гистерэктомии и на ранних сроках беременности. Domest Anim Endocrinol 1991;8:223–234.
-
Kastelic J, Ko J, Ginther O. Подавление развития доминантных и подчинённых фолликулов яичников белковой фракцией фолликулярной жидкости у тёлок. Theriogenology 1990;34:499–509.
-
Adams G, Matteri R, Kastelic J, Ko J, Ginther O. Связь между всплесками секреции фолликулостимулирующего гормона и появлением волн развития фолликулов у тёлок. J Reprod Fertil 1992;94:177–188.
-
Adams G, Kot K, Smith C, Ginther O. Влияние доминантного фолликула на регрессию подчинённых ему фолликулов у тёлок. Can J Anim Sci 1993;73:267–275.
-
Adams G. Управление динамикой волн развития фолликулов яичников у крупного рогатого скота: значение для синхронизации и суперстимуляции. Theriogenology 1994;41:25–30.
-
Bo G, Adams G, Pierson R, Mapletoft R. Экзогенное управление появлением волн развития фолликулов у крупного рогатого скота. Theriogenology 1995;43:31–40.
-
Adams G. Управление динамикой волн развития фолликулов яичников у взрослого крупного рогатого скота и животных до наступления половой зрелости для синхронизации и суперстимуляции. В: Труды XX конгресса Всемирной ассоциации по буиатрике, Сидней, 6–10 июля, 1998 . Австралийская ассоциация ветеринарных врачей по крупному рогатому скоту, 1998, с. 595–605.
-
Sunderland S, Crowe M, Boland M, Roche J, Ireland J. Отбор, доминирование и атрезия фолликулов в течение эстрального цикла у тёлок. J Reprod Fertil 1994;101:547–555.
-
Singh J, Pierson R, Adams G. Характеристики ультразвуковых изображений фолликулов яичников крупного рогатого скота: связь с эндокринными и функциональными показателями. J Reprod Fertil 1998;112:19–29.
-
Gibbons J, Wiltbank M, Ginther O. Функциональные взаимосвязи между фолликулами размером более 4 mm и всплеском секреции фолликулостимулирующего гормона у тёлок. Biol Reprod 1997;57:1066–1073.
-
Burns DS, Jimenez-Krassel F, Ireland J, Knight P, Ireland J. Число антральных фолликулов во время волн развития фолликулов у крупного рогатого скота: данные о значительных различиях между животными, очень высокой воспроизводимости показателя у отдельных особей и обратной связи с концентрацией фолликулостимулирующего гормона в сыворотке крови. Biol Reprod 2005;73:54–62.
-
Ginther O, Beg M, Gastal E, Gastal M, Baerwald A, Pierson R. Системные концентрации гормонов при развитии фолликулярных волн у кобыл и женщин: сравнительное исследование. Reproduction 2005;130:379–388.
-
Sunderland S, Knight P, Boland M, Roche J, Ireland J. Изменения внутрифолликулярного содержания различных молекулярных форм ингибина при развитии доминантных фолликулов фолликулярной и лютеиновой фаз у тёлок. Biol Reprod 1996;54:453–462.
-
Mihm M, Good T, Ireland J, Ireland J, Knight P, Roche J. Снижение концентрации FSH в сыворотке крови изменяет уровни ключевых внутрифолликулярных факторов роста, участвующих в отборе доминантного фолликула у тёлок. Biol Reprod 1997;57:1328–1337.
-
Bleach E, Glencross R, Feist S, Groome N, Knight P. Ингибин A в плазме крови тёлок: связь с динамикой фолликулов, гонадотропинами и стероидами в течение полового цикла и после введения фолликулярной жидкости крупного рогатого скота. Biol Reprod 2001; 64:743–752.
-
Beg M, Bergfelt D, Kot K, Ginther O. Отбор фолликула у крупного рогатого скота: динамика факторов фолликулярной жидкости при формировании доминирования фолликула. Biol Reprod 2002;66:120–126.
-
Laven J, Fauser B. Ингибины и функция яичников у взрослых особей. Mol Cell Endocrinol 2004;225:37–44.
-
Ginther O, Bergfelt D, Kulick L, Kot K. Отбор доминантного фолликула у крупного рогатого скота: роль двусторонней функциональной связи между фолликулостимулирующим гормоном и фолликулами. Biol Reprod 2000;62:920–927.
-
Ginther O, Bergfelt D, Kulick L, Kot K. Отбор доминантного фолликула у крупного рогатого скота: роль эстрадиола. Biol Reprod 2000;63:383–389.
-
Ginther O, Beg M, Bergfelt D, Donadeu F, Kot K. Отбор фолликула у видов с овуляцией одной яйцеклетки. Biol Reprod 2001;65:638–647.
-
Mihm M, Bleach E. Эндокринная регуляция развития антральных фолликулов яичника у крупного рогатого скота. Anim Reprod Sci 2003;78:217–237.
-
Bergfelt D, Lightfoot K, Adams G. Синхронизация функции яичников после трансвагинальной абляции фолликулов под контролем ультразвука у тёлок. Theriogenology 1994;42:895–907.
-
Adams G, Matteri R, Ginther O. Влияние прогестерона на рост фолликулов яичника, появление фолликулярных волн и концентрацию циркулирующего FSH у тёлок. J Reprod Fertil 1992;96:627–640.
-
Savio J, Thatcher W, Badinga L, de la Sota R, Wolfenson D. Регуляция смены доминантных фолликулов в течение полового цикла у коров. J Reprod Fertil 1993;97:197–203.
-
Savio J, Thatcher W, Morris G, Entwistle K, Drost M, Mattiacci M. Влияние снижения концентрации прогестерона в плазме крови с помощью интравагинального устройства, высвобождающего прогестерон, на смену фолликулов и фертильность крупного рогатого скота. J Reprod Fertil 1993;98:77–84.
-
Stock A, Fortune J. Доминирование фолликула яичника у крупного рогатого скота: связь между продолжительным ростом овуляторного фолликула и эндокринными показателями. Endocrinology 1993;132:1108–1114.
-
Kesler D, Garverick H. Кисты яичников у молочного крупного рогатого скота: обзор. J Anim Sci 1982;55:1147–1159.
-
Cook D, Smith C, Parfet J, Youngquist R, Brown E, Garverick H. Судьба и скорость смены фолликулярных кист яичников у молочного крупного рогатого скота. J Reprod Fertil 1990;90:37–46.
-
Adams G, Kot K, Smith C, Ginther O. Отбор доминантного фолликула и подавление роста фолликулов у тёлок. Anim Reprod Sci 1993;30:259–271.
