
(a)
12
10
8
6
4 Препубертатные
телята
0 4 8 12 16 20
(b)
12
10
8
6
4 Стельные коровы
0 4 8 12 16 20
Дни от появления волны
Увеличение ЛГ
Снижение ЛГ
56 недель
1 месяц
42 недели
2 недели
3 месяца
6 месяцев
9 месяцев
14 недель
34 недели
()Диаметр доминантного фолликуламм
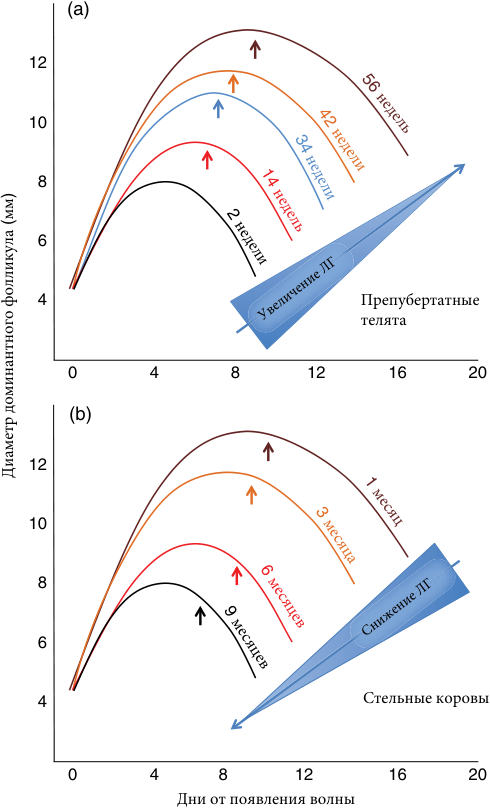
Рис. 24.15 Профили диаметра доминантного фолликула в фолликулярных волнах во время препубертатного развития у (а) телят и (б) во время беременности у коров по данным ежедневного трансректального УЗИ. (а) Профиль изображен в возрасте 56 недель и представляет собой волну, непосредственно предшествующую половому созреванию (первая овуляция; данные Adams et al.158 ; Evans и др.162 ). В возрасте от 14 до 56 недель межволновой интервал (обозначенный стрелками) увеличился с 6,8 до 9,2 дня. (б) У беременных коров с 1 до 9 месяца беременности межволновой интервал (обозначен стрелками) уменьшился с 9,6 до 6,4 дня. Данные Ginther et al.48 ; Bergfelt и др.33 ; Ginther и др.164 ). Изменения в профилях доминирующих фолликулов связаны с изменениями циркулирующих концентраций ЛГ.
Овариальная динамика во время разных репродуктивных состояний
Препубертатный и перипубертатный периоды
В единственном исследовании фолликулярной динамики яичника в препубертатном и перипубертатном периодах использовалась трансректальная ультрасонография для мониторинга ежедневных изменений в развитии фолликула у телят в возрасте 2 недель; мониторинг телят проводился регулярно в течение первого года жизни.161–163
Половое созревание определяли по моменту первой овуляции, и было установлено, что у телок герефорд-кроссов, использованных в исследовании, оно наступает в 52–56 недель (12–13 месяцев). Примечательно, что во всех исследованных возрастных категориях развитие фолликулов происходило волнообразно, как у взрослых особей. Индивидуальное развитие фолликула характеризовалось фазами роста, статики и регрессии, и с каждым появлением фолликулярной волны были связаны периодические скачки концентрации ФСГ в сыворотке (см. Рис. 24.8). Скачки ФСГ охватывали в среднем 3 дня и были максимальными за 1 день до появления волны. Был сделан вывод, что механизмы, контролирующие хорошо упорядоченные явления возникновения волн, отбора и регрессии фолликулов у зрелого крупного рогатого скота, также существовали и у препубертатных телок.
Профиль диаметра доминантного, а также самого большого подчиненного фолликула в препубертатном периоде увеличивался с возрастом (рис. 24.15). Скорость увеличения была наибольшей в возрасте от 2 до 8 недель и затем в возрасте от 24 до 40 недель и была связана с периодами роста средних концентраций ЛГ.162 Количество обнаруженных фолликулов (≥3 мм в диаметре) также резко возросло в возрасте от 8 до 14 недель, а затем, по-видимому, уменьшалось по мере приближения полового созревания во временной связи с ранним повышением и последующим конусообразным снижением средних концентраций ФСГ. Причина развития раннего повышения циркулирующих концентраций ЛГ и ФСГ в возрасте от 4 до 14 недель неясна, но она может отражать начальное созревание оси гипоталамус-гипофиз и последующую чувствительность к отрицательной обратной связи со стороны яичниковых стероидов. Это мнение подтверждается данными, показанными на рисунке 24.15, а также наблюдаемыми изменениями в интервале между появлением доминантных фолликулов последовательных волн (межволновой интервал). Интервал между волнами был относительно длинным (8–9 дней) в возрасте 2 и 8 недель, но стал значительно короче (6,8 дня) в 14 недель. Далее интервал между волнами постепенно увеличивался (7–9 дней) до полового созревания.
Изучение данных за период, непосредственно предшествующий первой овуляции и охватывающий последующие два интеровуляторных интервала, выявило уникальные характеристики в начале овуляторной цикличности у коров.163 Первый овуляторный цикл был коротким (7,7 ± 0,2 дня), а первая овуляция произошла после того, как доминантный фолликул вошел в статическую фазу; то есть доминантный фолликул был старше во время овуляции, чем его аналог в более поздних циклах. Первое желтое тело (из состарившегося овуляторного фолликула) было меньше и короче, чем желтое тело последующих циклов, что привело к сокращению интеровуляторного интервала. Второй интеровуляторный интервал имел нормальную продолжительность (20,3 ± 0,5 дня) и состоял из двух или трех фолликулярных волн. Средние концентрации эстрадиола и ЛГ в сыворотке, а также частота пульсации ЛГ увеличивались с приближением первой овуляции, но концентрация ФСГ - нет. Как отмечалось ранее, скачки ФСГ были связаны с появлением фолликулярной волны. Эти результаты демонстрируют поразительное сходство между началом полового созревания у молодых телок и возобновлением овуляторной цикличности у новотельных коров (см. ниже).
Фолликулярное развитие в период стельности
Результаты трех отдельных исследований подтверждают, что волновое явление возникает на протяжении всей беременности, за исключением последних 21 дня, когда не было обнаружено никаких фолликулов размером 6 мм или более.33,48,164 В присутствии прогестерона (эндогенного или экзогенного),33 ановуляторные фолликулярные волны появляются через равные промежутки времени. Однако максимальный диаметр доминирующего фолликула последовательных волн уменьшился и был связан с последовательным уменьшением межволнового интервала (то есть период доминирования стал короче) (рис. 24.15). Первоначальное снижение произошло сразу после первой фолликулярной волны беременности, а последующее резкое снижение произошло после четвертого месяца беременности. Прогестерон подавляет рост доминантного фолликула дозозависимым образом71 , а прогрессирующее снижение фолликулярного доминирования, наблюдаемое у беременных коров, объясняется подавляющим воздействием на ЛГ повышения уровня прогестерона в середине беременности и повышением уровня эстрогена в ближайшей перспективе.164
У стельных коров, так же как у нестельных, периодические скачки ФСГ были связаны с появлением фолликулярных волн. Кроме того, на величину и частоту всплесков ФСГ повлиял размер доминантного фолликула. Волны, в которых доминантный фолликул достигал диаметра 10 мм или более, ассоциировались ( были связаны) с более длинными интервалами между последовательными скачками ФСГ и более низкими концентрациями ФСГ. Наоборот, волны с меньшими доминирующими фолликулами (6–9 мм) были связаны с более короткими интервалами и более высокими концентрациями ФСГ. Подобная взаимосвязь между ФСГ и динамикой фолликулярной волны наблюдалась у препубертатных телят.
Фолликулярное развитие в послеродовой период
Было показано, что у всех видов, у которых оно изучалось, лактация и сосание оказывают подавляющее влияние на фолликулярное развитие яичников. Степень подавления у крупного рогатого скота была связана в первую очередь с энергетическим балансом (состояние питания, упитанность, молочная продуктивность, паритет ( количество предыдущих отелов )) и предродовыми расстройствами (метрит, эндометрит, мастит, хромота) (рассмотрено в [165–167]). Интервал от отела до первой овуляции у молочных коров составлял в среднем 21 день (от 10 до 55 дней),168 , но был значительно длиннее у первородящих коров, чем у многоплодных (31,8 ± 8,3 дня против 17,3 ± 6,3 дня).169 Появление первой фолликулярной волны после отела варьировалось от 2 до 7 дней (в среднем 4,0 дня) у голштинских первотелок164 , а доминирующий фолликул первой послеродовой волны овулировал у 14 из 19 (74%) многоплодных фризских коров170 в среднем на 27-й день (диапазон 12– 58).171 У мясного скота возобновление фолликулярных волн наблюдалось в течение 10 дней после отела,172 , но первая овуляция происходила несколько позднее, чем у молочного скота (в среднем через 30,6 дня) и лишь в редких случаях это был доминантный фолликул первой послеродовой волны (11%).172
Первая послеродовая овуляция часто сопровождается отсутствием эстрального поведения и короткой лютеиновой фазой (обзор в 173). Первая овуляция не сопровождалась течкой у 17 из 18 (94%) новотельных молочных коров170 , а продолжительность первого послеродового интеровуляторного интервала варьировалась в зависимости от того, когда появился первый фолликул, предназначенный для овуляции. Первый послеродовой интеровуляторный интервал примерно у 25% молочных коров был коротким (в среднем 11,2 дня), еще у 25% имел нормальную продолжительность (в среднем 20,6 дня) и был длинным (в среднем 30,0 дня) у оставшихся 50% коров.170
При коротких циклах первый фолликул, предназначенный для овуляции обнаруживали позднее (≥10 дней после отела), тогда как при нормальных и длинных циклах его находили раньше (обычно ≤10 дней). Эти результаты отлично согласуются с данными другого исследования168 , в котором после коротких послеродовых ановуляторных периодов (около 14 дней) следовал цикл нормальной длины (18–21 день), а после более длинных послеродовых ановуляторных периодов (21–25 дней) - короткий цикл (<14 дней). У большинства мясных коров (78%) овуляция произошла во второй, третьей или четвертой послеродовой фолликулярной волне, и, как и у молочного скота, первые овуляции, произошедшие через 20 дней (16 из 18 коров), сопровождались коротким циклом (14 из 16 коров).172 Короткие циклы ассоциировались с короткой лютеиновой фазой, меньшим желтым телом и более низкими концентрациями циркулирующего прогестерона. Короткая лютеиновая фаза после первой послеродовой овуляции объясняется преждевременным высвобождением ПГФ2α маткой в результате меньшего количества прогестероновых рецепторов и большего количества окситоциновых рецепторов в клетках эндометрия173 , однако, является ли лютеиновая недостаточность результатом изменения преовуляторной дифференциации гранулезы/теки клетки на фоне низкого уровня ЛГ еще предстоит проверить.
Фолликулярное развитие в старости
Снижение фертильности при материнском старении было хорошо задокументировано у крупного рогатого скота и человека.174–176 Эндокринные и овариальные признаки репродуктивного старения были охарактеризованы в серии исследований, в которых старые коровы (≥15 лет) сравнивались со своими молодыми дочерьми (≤ 5 лет).177–179 Средние концентрации циркулирующего ФСГ были стабильно выше у старых коров, чем у их дочерей, но закономерность в секреции ФСГ и появлении волн у старых коров сохранялась, т. е. каждой фолликулярной волне яичника предшествовал всплеск циркулирующего ФСГ. Несмотря на повышенный уровень ФСГ, в каждую фолликулярную волну у старых коров было вовлечено меньше фолликулов размером 4–5 мм по сравнению с их дочерьми. Эта интересная обратная взаимосвязь между количеством фолликулов, набранных в волну, и пиковыми концентрациями ФСГ также была сообщена в исследованиях, согласно которым число фолликулов волны у индивидуумов повторяется59,102 . Продолжительность интеровуляторного и межволнового интервалов не менялась с возрастом, но овуляторный фолликул старых коров с двухволновым циклом был меньше во время овуляции, чем у молодых коров. Аналогичным образом диаметр желтого тела был меньше, а концентрация прогестерона в плазме, как правило, была ниже у старых коров по сравнению с молодыми. Влияния возраста на концентрацию циркулирующего ЛГ или частоту пульса ЛГ не выявлено.
Чувствительность ( ответная реакция ) оси гипоталамус-гипофиз у молодых и старых коров была изучена в исследовании, включающем синхронизацию яичников на основе эстрадиола/ прогестерона.178 Стероидная терапия подавляла циркулирующий ФСГ в обеих возрастных группах, и интервалы между лечением и последующим пиком ФСГ и появлением волны не отличались между старыми и молодыми коровами. В исследовании реакции яичников на суперстимулирующую терапию179 в фолликулярную волну было вовлечено меньше мелких (<5 мм) фолликулов, и у старых коров появилось меньше фолликулов всех размерных категорий после суперстимуляции по сравнению с их молодыми дочерьми. В среднем у молодых дочерей было на восемь овуляций на корову больше, чем у их матерей.
(a) (b)
40 60 1 st Синхр. 2 nd Синхр. Суперстим.
30 Стадо (n = 141)
40
20
–1σ В среднем +1σ 20
10 по стаду
Группа низких Группа высоких
значений (n = 20) значений (n = 16)
0
10 15 20 25 30 35 40 45 50 >2 mm >2 мм >5 мм
Количество фолликулов ≥2 мм Количество фолликулов
Суперстимуляция = 0.2436 + 0.7140 (≥ 2 мм)
( скорректированный r 2 - коэффициент детерминации= 40.4%)
Количество коров
Количество фолликулов
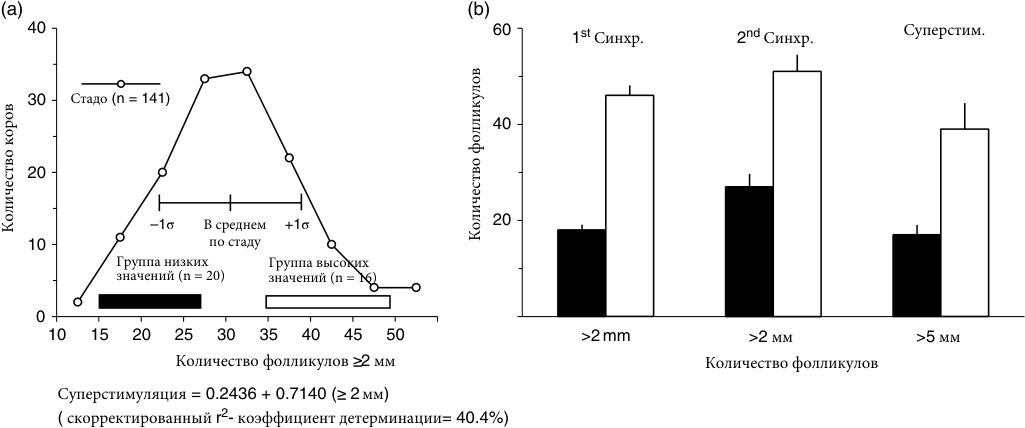
Рис. 24.16 Частотное распределение в стаде ( n = 141, сплошная линия) мясных коров Герефорд-кроссов на основе количества фолликулов, обнаруженных в обоих яичниках с помощью ультрасонографии во время появления фолликулярной волны. (a) На основе подсчета антральных фолликулов, была сделана выборка коров из нижних (n = 20, черная полоса) и верхних (n = 16, белая полоса) значений для последовательной синхронизации и суперстимуляции, чтобы определить какое влияние оказывает количество антральных фолликулов и их повторяемость. (b) Количество фолликулов, обнаруженных при появлении первой и второй синхронизированных волн и после суперстимулирующего лечения яичников в группе низкого уровня (черные столбцы) и группе высокого уровня (белые столбцы). Количество фолликулов было значительно больше в группе высокого уровня после обеих синхронизаций и после суперстимуляции. Суперстимуляторный ответ был простым линейным образом связан с количеством фолликулов, обнаруженных при появлении волны [суперстимуляторный ответ = 0,2436 + 0,7140 (количество фолликулов> 2 мм); скорректированный r2 = 40,4%]. Адаптировано из Singh J, Dominguez M, Jaiswal R, Adams G. Простой ультразвуковой тест для прогнозирования суперовуляторной реакции у крупного рогатого скота. Териогенология 2004;62:227–243.
Наконец, данные исследования, в котором эмбрионы от старых коров и их дочерей были перенесены коровам-реципиентам соответствующего возраста179 , показали, что ооциты от старых коров были заметно менее компетентными ( с пособными к созреванию ) и давали только половину от количества эмбрионов, произведенных их дочерьми.
Выводы и практическое значение
Знание нормальной фолликулярной и лютеиновой динамики, а также механизмов, контролирующих эту динамику, оказали непосредственное влияние на клиническую и племенную практику ведения скотоводства. Концепции, представленные на Рисунке 24.9, были использованы в качестве основы при разработке протоколов синхронизации яичников для осеменения в фиксированное время и суперстимуляции яичников в целях получения и переноса эмбрионов in vivo и in vitro, а также для контроля размножения в рамках программ управления молочнымми и мясных стадами. Концепции волнового паттерна развития и отбора фолликулов подразумевают предсказуемые различия в количестве и степени зрелости определенных классов фолликулов (например, растущие, статические или регрессивные, доминантные и подчиненные фолликулы), которые способны или не способны реагировать на определенные виды гормональной терапии. Важно отметить, что динамика развития фолликулов перекрывается различным влиянием желтого тела. Ниже приведены некоторые примеры влияния эндогенных яичниковых ритмов на практические методы.
Синхронизация
У коров, у которых лютеолиз эффективно индуцируется введением ПГФ2α, последующий эструс распределяется в течение 6-дневного периода.180 Наиболее устойчивый ответ (то есть наименьшая вариабельность интервала до эструса) на лечение ПГФ2α наблюдается во время раннего диэструса (7 и 8 дней после охоты) и более поздний диэструс (15 дней после охоты), чем после лечения во время середины диэструса (через 10–13 дней после охоты).180
Последующие исследования подтвердили, что по большей части эти вариации обусловлены фолликулярным статусом во время лечения. Когда доминантный фолликул волны находится в поздней стадии роста (≥9 мм) или в ранней статической фазе, введение простагландина приведет к овуляции этого фолликула в течение 2–3 дней, тогда как лечение после средней и поздней статической фазы (т. е. когда он больше не жизнеспособен) приведет к овуляции доминантного фолликула следующей волны через 4–5 дней после инъекции. То есть, если ПГФ2α назначается в конце периода функционального доминирования одного фолликула, требуется несколько дней для того, чтобы новый доминантный фолликул достаточно вырос для овуляции.153,181,182
Подсчет антральных фолликулов
Количество фолликулов, обнаруживаемых с помощью ультрасонографии, широко варьируется между коровами и в зависимости от статуса фолликулярной волны.35,59,96,102 Однако, различия в количестве фолликулов не связаны с волновой последовательностью (то есть аналогичны для волны 1, волны 2 и волны 3) или количеством волн за эстральный цикл (т. е. двух- и трехволновые паттерны; рассмотрено в работе 35). Несмотря на то, что особи сильно различаются, свойственное каждой особи количество фолликулов при появлении волны практически всегда повторяется.59,102 . При непосредственном сравнении многофолликулярных коров с мало-фолликулярными102 количество фолликулов, набранных в волну, сильно коррелировало с количеством фолликулов, набранных в последующие волны, и ответная реакция на суперстимуляцию сильно коррелировала с количеством фолликулов, набранных в фолликулярную волну у данной особи (рис. 24.16). Эта особенность в настоящее время составляет основу простого ультразвукового теста для прогнозирования суперстимулирующего ответа у крупного рогатого скота.
