
Незрелый (стадия зародышевого пузырька) ооцит
(a) (b)
Стадия зародышевого пузырька (GV) Стадия разрушения GV
(c) (d)
Метафаза I Метафаза II
(e) (f)
M-II
PB-I
Фазово-контрастная микроскопия
() + DAPI ()бирюзовыйЛамин А/С красный
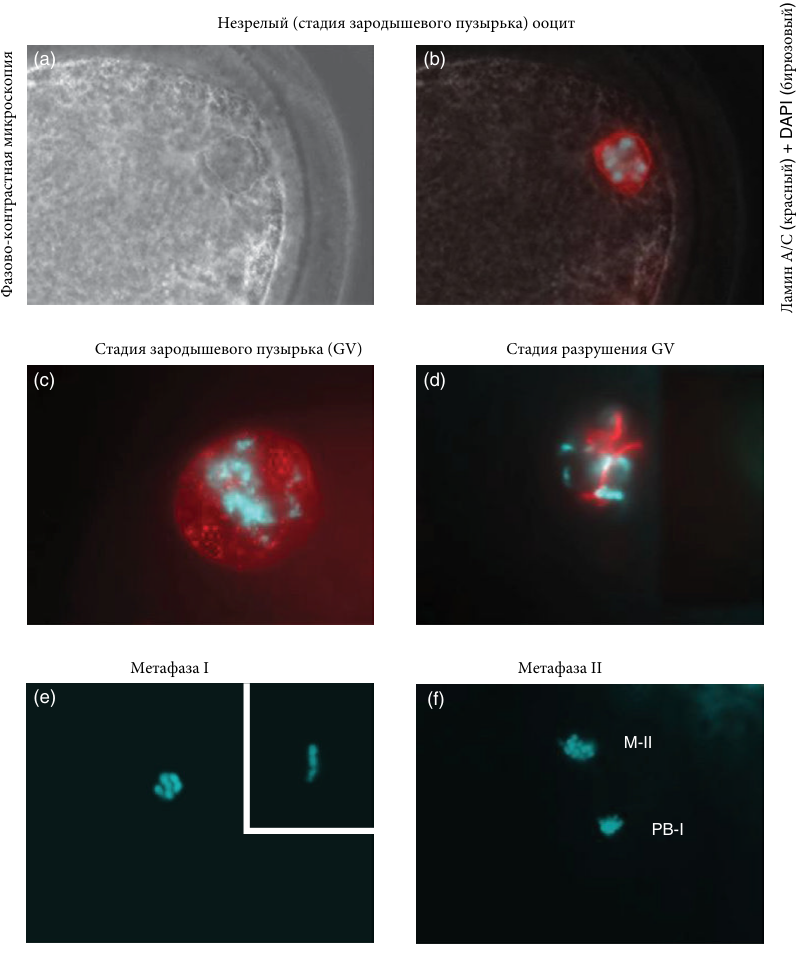
Рис. 24.13 Стадии ядерного созревания ооцитов крупного рогатого скота. (а) Фазово-контрастное изображение незрелого ооцита с неповрежденной ядерной мембраной (стадия зародышевого пузырька или GV), полученное из 4-мм фолликула. (b) Анти-ламин A/C (окрашивает ядерную мембрану в красный цвет) и DAPI (окрашивает ДНК в голубой цвет), объединенные с фазово-контрастным изображением в (a). (с) Ядро незрелого ооцита с неповрежденной ядерной мембраной (стадия GV). (d) Созревание ооцита, показывающее разрушение зародышевого пузырька (стадия GVBD). (е) Метафаза I; на вставке показана метафазная пластинка под прямым углом. (f) Метафаза II и первое полярное тело (PB-I). Адаптировано из Prentice-Biensch J, Singh J, Alfoteisy B, Anzar M. Простой и высокопроизводительный метод для оценки стадии созревания бычьих ооцитов: сравнение анти-ламин A/C-DAPI с техникой окрашивания ацетоорсеином. Териогенология 2012;78:1633–1638.
Снижение производства и поступления циклического ГМФ в ооцит, в свою очередь, увеличивает ФДЭ3A, который в конечном итоге гидролизует циклический AMP и позволяет возобновить мейоз.
Лютеиновая динамика
Основываясь на состоянии желтого тела, эстральный цикл можно разделить на четыре последовательные фазы: 1) проэструс, когда желтое тело регрессирует и развивается овуляторный фолликул; 2) эструс - отсутствие функционального желтого тела и период половой восприимчивости, когда происходит окончательное созревание фолликулов и овуляция; 3) метэструс - период образования желтого тела; и 4) диэструс, когда желтое тело является зрелым и активно продуцирует прогестерон.129
Проэструс и эструс называют фолликулярной фазой, а метэструс и диэструс - лютеиновой фазой, хотя «лютеиновая фаза» не подразумевает отсутствие развития фолликула. Напротив, фолликулярные волны продолжают развиваться в течение фолликулярной и лютеиновой фаз эстрального цикла, как описано выше.
Происхождение желтого тела
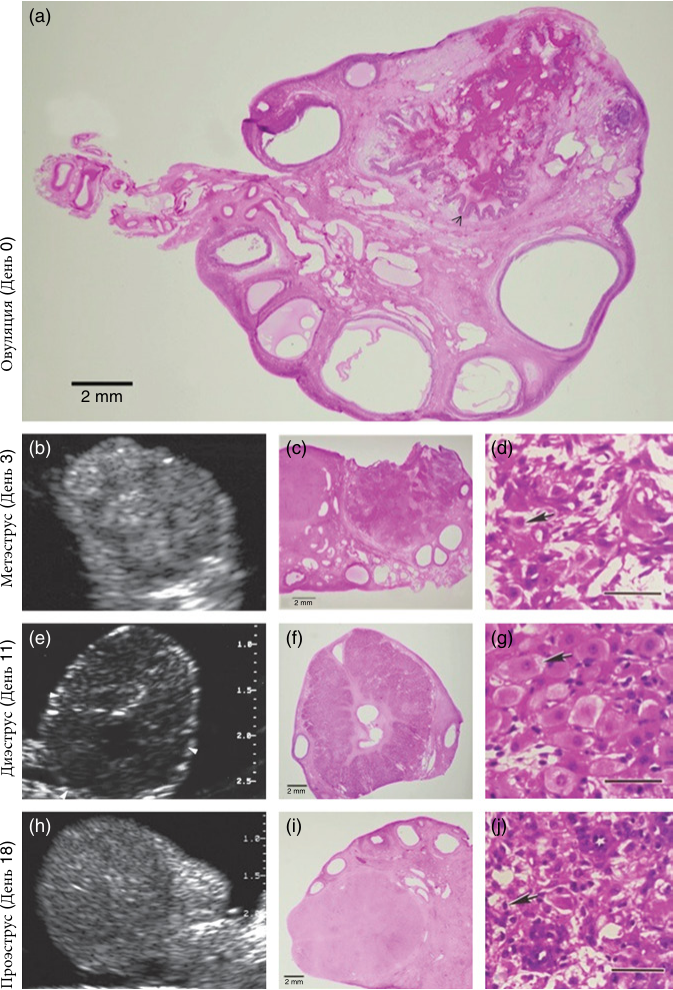
Рост и гибель желтого тела в течение эстрального цикла представляет собой один из самых быстрых динамических процессов в организме. Во время овуляции антральное содержимое овуляторного фолликула эвакуируется, и его стенка разрушается, сморщиваясь внутрь освобожденной полости. (Рисунок 24.14).
(a)
2 mm
(b) (c) (d)
(e) (f) (g)
(h) (i) (j)
( 0)ОвуляцияДень
( 3)МетэструсДень
( 11)ДиэструсДень
( 18)ПроэструсДень
Рис. 24.14 Развитие желтого тела у крупного рогатого скота. (а) Гистологический срез яичника, сделанный в течение 1 часа после овуляции. Обратите внимание на разрушенный фолликул с обширной кренуляцией ( сморщиванием) стенки фолликула (наконечник стрелки) и сгусток крови в полости. Обратите внимание также на многочисленные мелкие антральные фолликулы в яичнике, характерные для появления новой волны во время овуляции. Ультразвуковая морфология (b, e, h), гистология под малым увеличением (c, f, i) и тканевые элементы (d, g, j) желтого тела крупного рогатого скота во время метэструса (b, c, d; 3-й день после овуляции)), середина диэструса (e, f, g; 11-й день после овуляции) и проэструс (h, i, j; 18-й день после овуляции). Стрелки указывают на лютеиновые клетки. Более выраженный ангиогенез во время метэструса и гиалинизация ( вид белковой дистрофии, характеризующийся отложением гиалина в межуточной ткани и стенках кровеносных сосудов разных органов ) кровеносных сосудов во время проэструса (лютеиновая регрессия) привели к более яркой эхотекстуре ультразвуковых изображений на этих стадиях по сравнению с диэструсом. Гистологические изображения были сделаны с парафиновых срезов толщиной 5 мкм, окрашенных гематоксилином и эозином. Масштаб на ультразвуковых изображениях (b, d, f, h) указан в сантиметрах. Масштабная линейка составляет 2 мм для a, c, f, i и 10 мкм для d, g, j. Адаптировано из Сингха Дж., Пирсона Р., Адамса Г. Атрибуты ультразвукового изображения желтого тела крупного рогатого скота: структурные и функциональные корреляты. J Reprod Fertil 1997;109:35–44.
Клетки теки и гранулезы бывшего фолликула затем распространяются за пределы объема бывшей фолликулярной полости в результате эффектного процесса васкуляризации и лютеинизации с образованием функционального желтого тела. Эта временная стероидпродуцирующая железа претерпевает заметные структурные и функциональные изменения за короткий промежуток времени и является предметом обширных морфологических исследований.
(Рис. 24.14) (рассмотрено в ссылке 130). Концентрация прогестерона в плазме сильно коррелирует с массой желтого тела, его объемом, гистоморфологией131,132 и ультразвуковой морфологией.130
Во время метэструса компоненты кровеносных сосудов занимают наибольший процент объема желтого тела. Лютеиновые клетки претерпевают гипертрофию в середине эструса во время пика выработки прогестерона, в связи с их наибольшей объемной плотностью ( плотность распределения тех или иных физических величин в единице пространства) .
Увеличение размера лютеиновых клеток во время фазы формирования и уменьшение во время фазы регрессии параллельно секреции прогестерона. Во время проэструса регрессирующее желтое тело уменьшается в весе, в объемной плотности лютеиновых клеток и компонентах кровеносных сосудов, а также в выработке прогестерона. Наблюдается одновременное увеличение соединительной ткани и гиалинизация кровеносных сосудов. Отдельные лютеиновые клетки претерпевают дегенеративные изменения, выражающиеся в уменьшении размера клеток и накоплении крупных липидных капель в цитоплазме. Эти морфологические изменения связаны с прогрессивными изменениями в концентрации прогестерона в плазме от менее 2 нг/мл через 3 дня после овуляции до примерно 4 нг/мл через 6 дней и пиковых концентраций более 6 нг/мл через 10 и 14 дней после овуляции с последующим снижением уровня через 16 дней из-за лютеолиза.71
Ультрасонографическое обнаружение и морфология желтого тела
Надежность и точность УЗИ в определении желтого тела и связь между атрибутами ультразвукового изображения и функцией желтого тела имеют важное значение в клинических условиях для оценки нормальности и стадии цикла. При сравнении ультразвукового исследования с грубой анатомической диссекцией ( препарированием ) результаты совпали у 83% неопытных операторов и 97% опытных операторов. Растущее желтое тело было обнаружено ко 2-му дню (день 0 = овуляция) в более чем 95% из 80 эстральных циклов, а регрессирующее желтое тело было обнаружено в среднем через 1,4 дня в следующем эстральном цикле.133
Большая часть (40–70%) нормальных желтых тел во время своего развития имеет центральную заполненную жидкостью полость; остальные являются плотными структурами (рассмотрено в ссылке 130). Полость желтого тела заполнена серозным транссудатом и остается безэховой в течение всего своего существования, в отличие от организованного сгустка и появления сети эхогенных линий в центральной полости желтого тела лошади. По мере созревания желтого тела центральная полость становится меньше и часто исчезает. Концентрации прогестерона в плазме при желтом теле с центральной полостью или без нее не отличаются. Профиль (площадь среза ) области лютеиновой ткани (минус площадь полости, если она имеется), обнаруженный с помощью ультразвука, соответствовал профилю концентрации прогестерона в плазме, за исключением того, что во время лютеолиза прогестерон начал уменьшаться за 1-2 дня до того, как регрессия стала видна на УЗИ.134
Изменения атрибутов ультразвукового изображения (эхотекстуры, характерных черт ) желтого тела также отражают функцию желтого тела крупного рогатого скота (рис. 24.14).130 Более высокие значения пикселей, полученные с помощью компьютерного количественного анализа эхотекстуры во время образования лютеиновой железы (метэструс) и регрессии (проэструс) имели схожие закономерности, наблюдаемые у лошадей и кобыл пони при субъективной оценке эхотекстуры135 и пиксельного анализа136 желтого тела, зарегистрированные in vivo с помощью трансректальной ультрасонографии. Для проверки гипотезы о том, что ультразвуковые изображения могут быть «окрашены» в цифровом виде, были разработаны компьютерные алгоритмы для создания «виртуальной гистологии» посредством тонких различий в эхотекстуре, возникающих из-за различных структур яичников.137 Количественный анализ показал, что алгоритмы «палочек» увеличивали статистические различия в эхотекстуре стромы яичника в сравнении с желтым телом, что стало первым шагом к виртуальной гистологии ультразвуковых изображений и пониманию динамических изменений в яичнике на микроскопическом уровне безопасным, повторяемым и неинвазивным способом.138
Динамика кровотока в желтом теле
Основные изменения в микроциркуляторном русле яичника присходят во время роста и регрессии крупных фолликулов и желтого тела.130,139,140 Для изучения сосудистого кровотока были использованы три варианта метода Допплера: (i) спектральный Допплер используется для отображения сосудистого потока с течением времени в форма волны; (ii) цветовой Допплер позволяет наложить информацию о направлении сосудистого потока на серое изображение в B-режиме; и (iii) силовой Допплер используется для наложения информации о низкоскоростном сосудистом потоке (без информации о направлении) на изображение в оттенках серого в B- режиме. Допплеровские исследования предоставили визуальные доказательства изменений со временем в кровотоке в пределах преовуляторной стенки фолликула коров, связанных с выбросом ЛГ.140,141 Первоначальные результаты показывают, что в преовуляторном фолликуле коровы может происходить двухфазная реакция кровотока на ЛГ. Первоначальное увеличение кровотока сопровождалось зубчатым слоем фолликулярной гранулезы в течение 3 часов после лечения ЛГ, а второе увеличение кровотока было обнаружено примерно через 20 часов после введения ЛГ.141 У крупного рогатого скота отмечены отчетливые изменения в характере кровотока во время лютеогенеза, лютеолиза и ранней беременности, а также в ответ на гонадотропин-рилизинг-гормон (ГнРГ), простагландин ПГФ, ПГЕ, PGI, окситоцин и синтазу оксида азота (группа ферментов, катализирующих образование оксида азота и цитруллина из аргинина, кислорода и NADPH) .140,142– 146
Лютеолиз
В начале 1970-х годов было обнаружено, что ПГФ2α является естественным лютеолизином у крупного рогатого скота147,148 , и с тех пор ПГФ2α стал наиболее часто используемым средством для элективной индукции и синхронизации эструса у крупного рогатого скота.149–151 Пульсирующее высвобождение ПГФ2α из матки инициирует лютеолиз, начинающийся за 4–6 дней до овуляции.152,153 Ранние исследования показали, что зрелость желтого тела во время лечения простагландином влияла на лютеолитический ответ;154 ПГФ2α не вызывал эффективно индукции лютеолиза в течение первых 5 или 6 дней после эструса. Ранее считалось, что недостаточная отзывчивость является результатом отсутствия рецепторов ПГФ2α в незрелом желтом теле, но более поздняя работа опровергла эту гипотезу, продемонстрировав присутствие рецепторов в желтом теле уже через 2 дня после овуляции.155 Причина устойчивости незрелого желтого тела к ПГФ2α остается неясной, но некоторые предполагают, что зрелое желтое тело может иметь виток положительной обратной связи, включающий лютеиновый окситоцин ( окситоцин, помимо гипофиза, синтезируется в лютеиновых клетках яичников, матке и плодных оболочках) и TNF, которые вызывает высвобождение эндометрием ПГФ2α и поддерживает процесс лютеолиза.156,157 Если это представление верно и незрелое желтое тело не обладает витком положительной обратной связи, то можно ожидать, что множественные инъекции ПГФ2α завершат лютеолитический процесс в ранней стадии желтого тела. Ввиду этой связи лютеолиз и овуляция были индуцированы у 56 из 60 телок (93%), которым вводили ПГФ2α утром и вечером на 4, либо на 5 день после эструса, в двух исследованиях, связанных с суперстимуляцией яичников относительно появления фолликулярной волны.158,159 Недавние исследования показывают отчетливый причинно-следственный баланс между лютеотрофным эффектом эндогенных импульсов ЛГ и лютеолитическим эффектом импульсов ПГФ2α; повторные импульсы ПГФ2α из матки в конечном итоге преодолевают реанимационные эффекты ЛГ до полного лютеолиза (пересмотрено в работе 160).
