
Регулирование распределения питательных веществ во время беременности - это организованное событие, помогающее поддерживать метаболизм тканей организма, необходимый для поддержания физиологического состояния.42 У молочных коров беременность влечет за собой значительные расходы для животного, так что уровень питания в конце беременности составляет примерно на 75% больше, чем у небеременной коровы того же веса.42 После 7 месяцев беременности плод приобретет приблизительно 40% своего веса при рождении, в то время как в течение последних 2 месяцев беременности потребности плода в глюкозе и аминокислотах равны количеству питательных веществ из молочной железы, эквивалентных примерно 5 кг молока в день.42 Таким образом, у молочных коров " высыхание" вымени примерно за 60 дней до ожидаемого отела помогает ослабить конкуренцию между использованием питательных веществ для лактации и основной фазы роста плода. Имеется ограниченная информация о конкретных потребностях в питании плода крупного рогатого скота по сравнению с обширными исследованиями, проведенными на плоде овец. Валовое поглощение углерода плодом овцы составляет приблизительно 8 г/день на килограмм веса плода, из которых удерживается 40%, а остальная часть переносится обратно в матку в виде либо углекислого газ либо углерода мочевины. Помимо глюкозы, большую часть метаболического топлива обеспечивают аминокислоты, по оценкам, валовая скорость аккреции (прироста) азота составляет 0,65 г азота на килограмм плода в день, что превышает?? среднее усвоение плодом 1,5 г азота на килограмм плода в день. Как упоминалось ранее, при выделении углерода с мочой почти 0,3 г азота на килограмм плода выводится в виде мочевины за сутки, что указывает на катаболизм (распад веществ, их окисление и выведение из организма продуктов распада) аминокислот, предположительно, через глюконеогенные связи плода и плаценты. Важно отметить, что приток питательных субстратов для удовлетворения потребностей в окислительном метаболизме плода также используется для анаболизма (синтезом необходимых веществ, их усвоением и использованием для роста, развития и жизнедеятельности организма ) плода, и было высказано предположение, что конкретная судьба питательного субстрата (катаболизм против анаболизма) контролируется плодом автономно. Это привело к тому, что некоторые исследователи предложили, чтобы плод не рассматривался как «пассажир», а скорее имел некоторое самообладание или самостоятельность в своей судьбе. Это становится более очевидным, когда мы исследуем некоторые изменения в зародыше и плаценте, которые позволяют плоду адаптироваться к конкретным воздействиям окружающей среды, нанесенным матке.
Эмбриогенез, рост плода, и развитие органов
Эмбриональный период у крупного рогатого скота определяется как время от зачатия (то есть одноклеточного эмбриона, называемого зиготой) до завершения органогенеза. Этот период обычно длится от 1 до 42 дня беременности, и наибольший процент потери беременности происходит в эмбриональном периоде. Плодный период определяется как остаток беременности от 42 дня до 280 дня, когда происходит завершение дифференцировки органов (рис. 25.2).
Эмбриогенез
Во время раннего эмбриогенеза и до прикрепления концепта становится очевидной дифференциация слоев зародышевых клеток. Три слоя зародышевых клеток называются энтодерма, мезодерма и эктодерма. Эндодерма, самый внутренний слой, будет дифференцироваться в пищеварительный тракт, за исключением части рта и терминальной ( концевой ) части прямой кишки, которые выстланы защитными впячиваниями эктодермы.
Кроме того, из энтодермы будут развиваться дыхательные пути (трахея, бронхи и альвеолы легких), большинство эндокринных желез и мочевыделительная система. Эктодерма является самым наружным зародышевым клеточным слоем и даст начало нервной и покровной системам. Средний слой зародышевых клеток, мезодерма, создаст сердечную, скелетную и гладкую мускулатуру, систему кровообращения, а также большую часть репродуктивного тракта, исключая внешние части половых органов, которые развиваются из эктодермы.
Во время эмбриогенеза инвагинация эктодермы рта в направлении нервного эпителия приводит к образованию дивертикула, называемого карманом Ратке. В процессе формирования этот дивертикул потеряет контакт с эктодермой полости рта, образуя переднюю долю гипофиза. Эту переднюю долю иногда называют аденогипофизом, потому что он образован железистой тканью. Образование кармана Ратке во время раннего эмбриогенеза крупного рогатого скота характеризуют немногие исследования, однако, распространенное заболевание, известное как остаточная расщелина кисты гипофиза, было недавно исследовано у крс с использованием посмертной магнитно-резонансной томографии.43 Остаточная расщелина кисты гипофиза наблюдалась у 26–35% забитых коров, и в ней обнаружилось несколько морфологических сходств с человеческим заболеванием, известным как расщелина кисты Ратке. Эти структурные аномалии гипофиза могут допускать постепенное накопление эндокринной секреции с течением времени, при этом крупный рогатый скот голштинской породы может подвергаться большему риску развития заполненных жидкостью поражений ( кисты яичников) по сравнению с другими породами. Скорее всего, эти остаточные кисты гипофиза образуются на ранних стадиях эмбриогенеза и раннего формирования кармана Ратке; однако патологические состояния и/или продуктивность не были связаны с появлением или относительным размером кист гипофиза у крупного рогатого скота.43
Половая дифференциация и фримартинизм
Ни одна другая система органов в области органогенеза бычьего плода не привлекла бы столько внимания, как развитие репродуктивного тракта. С точки зрения половой дифференциации, генетический пол потомка устанавливается во время оплодотворения, когда сперматозоид доставляет либо хромосому X (женского пола), либо Y (мужского пола) в гомогаметный ооцит. У крупного рогатого скота после нескольких недель эмбриогенеза начнется процесс половой дифференциации. Один из первых этапов дифференциации гонадного пола включает миграцию, пролиферацию и инвазию первичных половых клеток. В настоящее время принято считать, что первые примордиальные половые клетки также представляют собой гемопоэтические стволовые клетки, происходящие из стенки аллантоиса, также как желточный мешок мезодермы.44 Кроме того, гематопоэтические стволовые клетки также происходят из других частей мезодермы и более поздние полученные данные свидетельствуют о том, что конечные пролиферативные примордиальные зародышевых клетки гонад берут свое начало исключительно в области аорта-гонада-мезодермы, тогда как короткоживущие гемопоэтические стволовые клетки желточного мешка обладают ограниченной способностью к дифференцировке. Важно отметить общее происхождение гемопоэтических стволовых клеток (недифференцированных клеток крови) и первичных половых клеток (недифференцированных гамет). Очевидные различия между этими типами клеток у взрослых могут быть связаны с наличием окружающих интерстициальных и стромальных клеток гонады, которые помогают дополнительно дифференцировать эти ранние гемопоэтические стволовые клетки в половые.
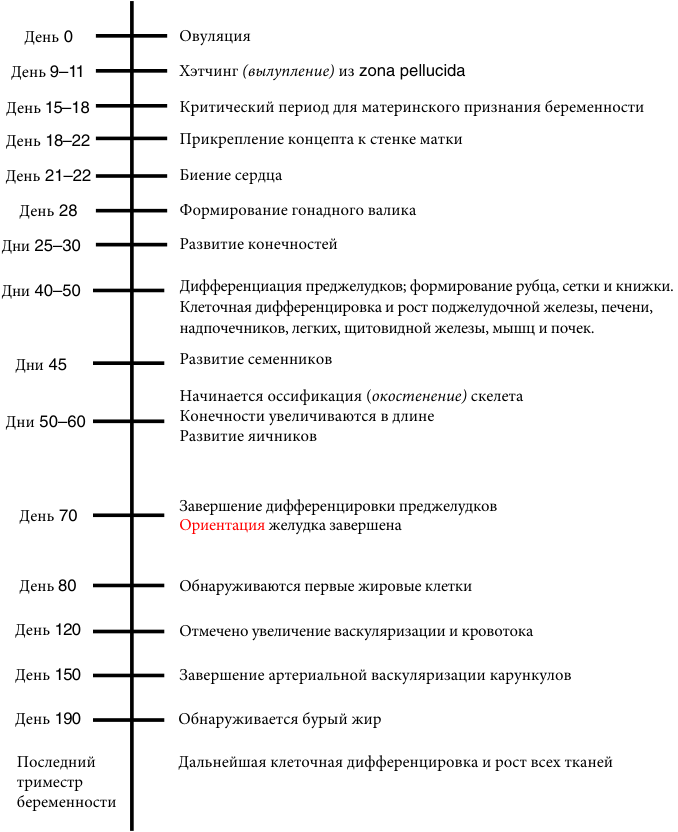
День 0 Овуляция
День 9–11 Хэтчинг (вылупление) из zona pellucida
День 15–18 Критический период для материнского признания беременности
День 18–22 Прикрепление концепта к стенке матки
День 21–22 Биение сердца
День 28 Формирование гонадного валика
Дни 25–30 Развитие конечностей
Дни 40–50 Дифференциация преджелудков; формирование рубца, сетки и книжки.
Клеточная дифференцировка и рост поджелудочной железы, печени,
надпочечников, легких, щитовидной железы, мышц и почек.
Дни 45 Развитие семенников
Начинается оссификация ( окостенение) скелета
Дни 50–60 Конечности увеличиваются в длине
Развитие яичников
Завершение дифференцировки преджелудков
День 70
Ориентация желудка завершена
День 80 Обнаруживаются первые жировые клетки
День 120 Отмечено увеличение васкуляризации и кровотока
День 150 Завершение артериальной васкуляризации карункулов
День 190 Обнаруживается бурый жир
Последний Дальнейшая клеточная дифференцировка и рост всех тканей
триместр
беременности
Рис. 25.2 Сроки развития плода крупного рогатого скота. См текст для ссылок.
К 23–25 дневному возрасту эмбриона крупного рогатого скота первичные половые клетки ( гоноциты, предшественники гамет) располагаются в средней и задней кишке в непосредственной близости от недифференцированных гонад. К 27–31 дню эти клетки начинают заселять недифференцированную гонаду, которая опирается на дорсальную стенку тела, известную как гонадный гребень. Это накопление первичных половых клеток в гонадном гребне будет продолжаться до 40 дня эмбрионального возраста.
Были предложены два возможных пути транспортировки первичных половых клеток к гонадному гребню. Во-первых, считается, что у большинства видов млекопитающих происходит их активная миграция с помощью хемоаттрактанта (вещества, которые способны заставить клетку физически передвигаться в тканях организма ), продуцируемого гонадным гребнем. Второй путь включает пассивную транспортировку через кровоток к гонадному гребню, который встречается у птиц и некоторых рептилий. Последние достижения в локализации пространственно-временного распределения первичных половых клеток крупного рогатого скота во время раннего эмбриогенеза приводят доводы против обоих этих путей.45 Необходимости в активной миграции первичных половых клеток может и не быть, поскольку на раннем сроке гестации (18 день эмбрионального возраста) у крс эти клетки локализованы в проксимальном желточном мешке на расстоянии менее 100 мкм от индифферентного зародышевого диска.
Поэтому сосредоточенность на транспортной системе может быть излишней из-за непосредственной близости первичных половых клеток к развивающемуся гонадному гребню во время раннего развития. Однако, следует иметь ввиду, что с 18 по 25 день рост и удлинение зародыша будут приводить к перемещению гоноцитов дальше от места их инвазии; поэтому, некоторая форма транспортировки и правильной передачи сигналов от гонадного гребня индифферентной ( нейтральной, безучастной) гонады была бы необходима, поскольку длина эмбриона увеличивается.
У зародыша развиваются три отдельные почечные системы: пронефрос, мезонефрос и метанефрос. Эти системы развиваются парами. Пронефрос является самым основным из трех выделительных органов эмбриона крупного рогатого скота, и он дегенерирует посредством апоптоза вскоре после образования мезонефроса (эмбриональной почки). У низших животных мезонефрос останется в качестве почки взрослой особи; однако у коровы функциональная зрелая почка сформируется после окончательной дифференцировки метанефроса. Мезонефрос также упоминается как вольфовы протоки. Одновременно с мезонефрическим развитием рядом с мезонефросом будет развиваться другая пара протоков, называемая парамезонефрическими протоками или Мюллеровыми протоками.
На этой стадии развития эмбрион все еще не склонен к половой дифференцировке репродуктивного тракта.46 Если генетический пол мужской (XY), парамезонефрические протоки будут регрессировать, а мезонефрические протоки будут дифференцироваться с образованием придатка яичка, семяпроводов и семенных пузырьков мужского репродуктивного тракта. Если генетический пол женский (ХХ), мезонефрические протоки будут регрессировать, а парамезонефрические ( Мюллеровы) протоки будут дифференцироваться с образованием яйцеводов, матки и передней части влагалища. Этот процесс дифференцировки начинается на уровне индифферентной гонады, где мезотелиальные клетки запускают цепную реакцию событий, основанную на экспрессии транскрипционного фактора, известного как SRY (определяющий пол участок короткого плеча Y-хромосомы).47 Эти мезотелиальные клетки или поверхностные эпителиальные клетки индифферентной гонады проникают в гонаду во время инвазии и пролиферации первичных половых клеток и становятся гонадным гребнем. Кроме того, у особей мужского пола эти мезотелиальные клетки будут дифференцироваться в клетки Сертоли, и после активации гена SRY эти клетки Сертоли начнут выделять анти-мюллеровый гормон. Этот анти-мюллеровый гормон вызывает регрессию парамезонефрических протоков. Интерстициальные клетки дифференцирующегося яичка, также известные как клетки Лейдига, начинают секретировать тестостерон, который помогает дальнейшей дифференцировке мезонефрических протоков, а также придаточных половых желез. В отсутствие Y- хромосомы (женский генетический пол, XX) начинают образовываться яичники и отсутствие антимюллерового гормона приводит к дифференцировке парамезонефрических протоков, тогда как отсутствие тестостерона приводит к регрессии мезонефрических протоков. Несколько новаторских экспериментов дополнительно выяснили механизмы, лежащие в основе дифференциации и изменения пола.46 Например, двустороннее удаление индифферентной гонады у плода с генетически мужским (XY), либо женским (XX) полом приводит к регрессии мезонефрических протоков и развитию парамезонефрических протоков (женский фенотип независимо от генетического пола).
Сосредоточение внимания на определении и изменении пола у крупного рогатого скота отчасти связано с явлением, известным как фримартинизм. Фримартин - это стерильная телка, рожденная в паре с быком, что объясняется анастомозом, возникающим между плацентой женского и мужского зародышей. Из-за общего кровоснабжения половая дифференцировка женского тракта (мезонефрические и парамезонефрические протоки) подвергается воздействию анти-мюллеровского гормона и тестостерона от близнеца мужского пола. Одной из проблем в изучении фримартинизма является эффективность воспроизведения данного синдрома во время экспериментального исследования. Например, присутствие тестостерона во время критических периодов развития будет производить маскулинизированный женский плод (помогая дифференцировать часть мезонефрических протоков); тем не менее, эта экспериментальная модель не является истинным фримартином, потому что произведенный женский плод не является химерой (содержащей как клетки XX, так и XY). Этот химеризм, предположительно из-за вторжения мужских (XY) гематопоэтических стволовых клеток или лейкоцитов из анастомоза плаценты, приводит к интерсексуальной (гермафродитной) гонаде, которая иногда содержит смесь семенных канальцев в мозговом слое гонад и фолликулярных скоплений в корковом слое. Интересно, что гемопоэтические стволовые клетки могут функционировать подобно первичным половым клеткам развивающейся гонады из-за сходства в происхождении этих типов клеток.
Хотя регрессия и/или сохранение системы протоков в первую очередь контролируется гормональным вводом, необходимы дальнейшие исследования, чтобы выяснить образование интерсексированной гонады, функция которой, по-видимому, определяется вторжением клеток крови XY близнеца мужского пола.
Рост плода и развитие органов
Характеристика роста эмбриона крупного рогатого скота на протяжении всего периода беременности позволила исследователям определить конкретные неблагоприятные факторы среды, которые могут нарушить нормальное развитие в утробе матери. В дополнение к внешним воздействиям окружающей среды, влияющим на рост плода, с его ростом и развитием связаны и несколько внутренних механизмов. Было показано, что в течение 70-100 дней беременности масса плода у нескольких пород крупного рогатого скота увеличивается примерно на 10 /день.48 Затем в период с 200 по 250 дни беременности скорость роста плода увеличивается примерно до 200–300 г/день; тем не менее, абсолютный рост плода на позднем сроке снизился до 100 г/день, что может быть связано с тем, что функция плода превышает возможности маточно-плацентарного обмена перед. В качестве альтернативы, плод может секретировать или изменять свои собственные гормональные профили, способствуя правильному созреванию и дифференцировке органов относительно роста.
В ходе исследований этих характеристик некоторые ученые отметили, что рост бычьего плода обычно отстает от объема аллантоисной жидкости и расширения хориоаллантоисной оболочки.48,49 Как упоминалось выше, распределение питательных веществ по маточно-плацентарной единице ( плацентоме ) и постоянное поступление питательных веществ является необходимым условием для роста плода. Распространение хориоаллантоиса над эндометрием обеспечивает максимальную площадь поверхности для обмена питательными веществами во время развития, что должно поддерживать ускорение роста плода. Наблюдается сильная положительная корреляция между общим объемом амниотической жидкости и весом плода; однако корреляции между общим объемом аллантоисной жидкости и массой плода не обнаружено.48 Клонирование крупного рогатого скота путем переноса ядер соматических клеток позволило исследователям дополнительно определить эту связь между гомеостазом фетальной жидкости и развитием плода и плаценты.50 Клонированные бычьи плоды, у которых наблюдается аномальная плацентация, обычно ассоциируются ( связаны, коррелируют ) с чрезмерным накоплением жидкости в плодных мешочках, известным как синдром гидропса (водянка плода , анасарка плода ). В этой экспериментальной модели клонированные эмбрионы с синдромом гидропса, выжившие до середины беременности, демонстрируют избыточный рост плацентом, печени и почек по сравнению с нормальной беременностью.50 Также, в нескольких исследованиях с использованием различных видов млекопитающих органомегалия печени, почек и сердца потомства обычно сопровождается полигидрамниозом. Более того, основные механизмы гомеостаза водного мешка у беременной коровы не полностью поняты, и необходимы дальнейшие исследования, чтобы выяснить истинную причинно-следственную связь.
Нарушение правильного развития органов происходит у клонированных телят, которые умирают вскоре после рождения. Используя эту экспериментальную модель, исследователи изучили восемь онтогенетически важных генов в шести различных органах (сердце, печень, селезенка, легкое, почка и мозг). Из этих генов развития почка была наименее пораженным органом, связанным со смертностью телят, в то время как сердце было органом, наиболее затронутым нарушением в регуляции генов по сравнению с нормальным потомством.51
