
Введение импланта Извлечение импланта + PGF2 α
IVPD ИО при выявлении охоты
День 0 День 7 Дни 9-13
GnRH PGF2 α
IVPD ИО при выявлении охоты
День 0 День 7 Дни 9-13
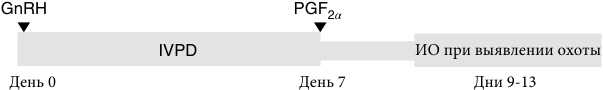
Рисунок 33.6 Протокол синхронизации эструса с введением прогестерона в течение 7 дней с использованием интравагинального устройства прогестерона, ГнРГ и PGF2α. Обратите внимание, что введение GnRH должно инициировать новую фолликулярную волну. GnRH заменяется эстрадиолом-17β или бензоатом эстрадиола плюс прогестерон.
| (a) GnRH | PGF2α | GnRH | FTAI |
|---|---|---|---|
| День 0 | День 7 | День 9 | День 10 |
| (b) | |||
| GnRH | PGF2α | GnRH+ FTAI | |
| Днь 0 | День 7 | День 10 |
Рисунок 33.7 Протокол синхронизации овуляции GnRH-PGF2α-GnRH с фиксированным временем осеменения (FTAI). (а) протокол Овсинк. (б) протокол КO-Синк. Обратите внимание, что первый GnRH может быть заменен эстрадиолом-17β или бензоатом эстрадиола плюс прогестерон, а второй GnRH может быть заменен эстрадиолом-17β или бензоатом эстрадиола. Одновременное введение GnRH во время осеменения в протоколе CO-Synch является предпочтительным в мясных фермах, поскольку оно уменьшает количество обработок.
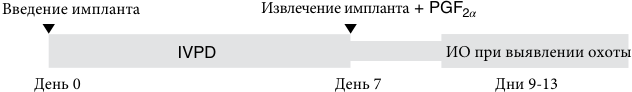
Инициирование новой фолликулярной волны в начале протокола путем введения GnRH сократит случаи возникновения персистентного фолликула. Кроме того, прогестин, который присутствует между инъекциями GnRH и PGF2α, практически исключает возможность появления у животных признаков охоты до инъекциии PGF2α (рис. 33.6). Животные будут осеменены при выявлении охоты после удаления прогестерона.
Синхронизация овуляции
Синхронизация овуляции включает комбинацию GnRH и PGF2α с добавлением прогестерона или без него в течение курса лечения. Эти протоколы облегчают оплодотворение в заранее установленное (фиксированное) время без необходимости обнаружения эструса. Было успешно применено несколько протоколов с приемлемыми показателями беременности.
GnRH–PGF2 α –GnRH протокол
Протокол включает инъекцию GnRH на случайной стадии эстрального цикла, за которой следует инъекция PGF2α через 7 дней. Вторая инъекция GnRH следует за инъекцией PGF2α через 48 часов.
Этот метод предназначен для осеменения по времени через 16 (интервал 8–24) часов после последней инъекции ГнРГ (рис. 33.7а; Овсинк).14 Эта система синхронизации обеспечивает четкую синхронизацию эструса, что позволяет проводить осеменение в назначенное время без выявления охоты. Первая инъекция ГнРГ вызывает овуляцию или лютеинизацию всех доминантных или крупных растущих фолликулов. В результате новая фолликулярная волна начинается у всех коров примерно через 3 дня после инъекции. Следовательно, у всех самок в группе будут растущие фолликулы примерно одинаковой стадии развития. Кроме того, ГнРГ стимулирует развитие лютеиновой ткани из клеток, которые ранее были доминантным фолликулом. Инъекция PGF2α лизирует ЖТ, полученное в результате первой инъекции GnRH. Кроме того, последняя инъекция GnRH служит для увеличения синхронности овуляции в группе коров. Синхронизации роста фолликулов после первой инъекции GnRH очень хорошо происходит у коров, но менее у телок. Протокол CO-Synch аналогичен протоколу Ovsynch, за исключением того, что вторая инъекция GnRH проводится одновременно с ИО (рисунок 33.7b). Это имеет огромное преимущество в схемах синхронизации мясного скота, потому что схема CO-Synch требует меньше подходов к животным.
Протокол Presynch
Было очевидно, что стадия эстрального цикла при инициации протокола Овсинк влияла на успех синхронности фолликулярной волны. Начало протокола слишком рано (например, через 1–4 дня после овуляции) или слишком поздно (например, через 13–20 дней после овуляции) снижало синхронность. Кроме того, если первая обработка ГнРГ была проведена, когда доминантный фолликул был до или после доминирования, овуляция может не произойти, и синхронное появление новой фолликулярной волны не произойдет.17 Альтернативой является обеспечение жизнеспособного растущего доминантного фолликула в момент обработки ГнРГ. Коровы будут реагировать наиболее последовательно, когда ГнРГ вводится между 5 и 12 днями эстрального цикла.18,19 Следовательно, было использовано несколько протоколов для выравнивания эстального цикла коров к 5–12 дню при инициации Ovsynch или CO-Synch протокола. Они включают предварительную синхронизацию коров до Ovsynch с использованием двух инъекций PGF2α, вводимых с интервалом в 14 дней, с интервалом до основного протоколола с фиксированным ИО 11 дней,58 12 дней,19 или 14 дней59 (Presynch-Ovsynch). Другой протокол, обозначенный G6G, начинается с инъекции PGF2α, которая предназначена для индукции лютеолиза функционального желтого тела, и инъекции GnRH через 2 дня, предназначенной для индукции овуляции. В совокупности две инъекции G6G предназначены для начала нового эстрального цикла. Ovsynch планируется начать через 6 дней после инъекции GnRH, чтобы у коровы был 6-й день нового эстрального цикла и большая вероятность иметь функциональный доминантный фолликул, способный к овуляции в ответ на первый GnRH Ovsynch. Кроме того, использование двух инъекций PGF2α для предварительной синхронизации эстральных циклов было неэффективным для ановулярных коров.19
Протоколы предварительной синхронизации, которые индуцируют образование ЖТ перед началом протокола Ovsynch, вероятно, улучшат фертильность у ановуляторных коров. Протокол, который включает в себя индукцию цикличности у ановулярных молочных коров, заключается в использовании дополнительного протокола Ovsynch для пресинхронизации и индукции цикличности у коров до использования основного протокола Ovsynch и называется Double-Ovsynch.60
Добавление прогестерона в протокол GnRH – PGF2α – GnRH
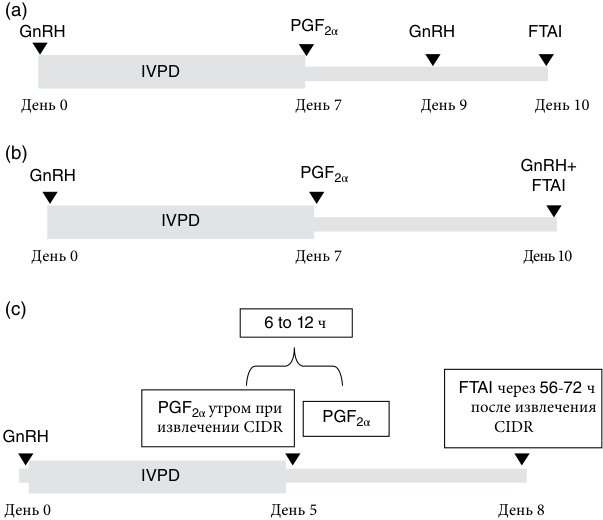
Включение прогестерона между первым GnRH и PGF2α в течение 7 дней в протоколах Ovsynch (рисунок 33.8a) и CO-Synch (рисунок 33.8b) улучшают синхронность эструса/овуляции и олодотворяемость у коров и телок. Эти протоколы полезны для коров с анеструсом и телок, а также для коров с кистозными яичниками. Существует несколько протоколов, модифицированных из вышеупомянутого протокола. Недавно был проведен эксперимент с введением прогестерона между первым GnRH и PGF2α в течение 5 дней по протоколу CO-Synch (рис. 33.8c). Цель состояла в том, чтобы сократить обработку прогестероном до 5 дней и увеличить фазу проэструса (интервал от PGF2α до второго ГнРГ) до 72 часов.61,62 Этот подход увеличил оплодотворяемость по ИО до 15% у мясных коров41,42 . Из-за укороченного интервала от первого GnRH до PGF2α в 5-дневном протоколе IVPD и вариабельности лютеолиза у некоторых коров после введения однократной дозы PGF2α на 5-й день эстрального цикла, все коровы должны получить вторую дозу PGF2α приблизительно через 6–12 часов после первого введения PGF2α при извлечении CIDR.63,64
(a)
GnRH PGF2α GnRH FTAI
IVPD
День 0 День 7 День 9 День 10
(b)
GnRH+
GnRH PGF2α
FTAI
IVPD
День 0 День 7 День 10
(c)
от 6 до 12 ч
FTAI через 56-72 ч
PGF2α утром при после извлечения
извлечении CIDR PGF2α CIDR
GnRH
IVPD
День 0 День 5 День 8
Рисунок 33.8 Протокол синхронизации овуляции GnRH-PGF2α-GnRH с добавлением прогестерона с фиксированным временем осеменения (FTAI). (а) Ovsynch с IVPD. (б) CO-Synch с IVPD. (c) 5-дневный CO-Synch с IVPD. Обратите внимание, что первый GnRH может быть заменен эстрадиолом-17 или бензоатом эстрадиола плюс прогестерон, а второй GnRH может быть заменен эстрадиолом-17 или бензоатом эстрадиола. Добавление прогестерона считается полезным для анестральных коров и препубертатных/перипубертатных телок. Одновременное введение GnRH во время осеменения по протоколу CO-Synch + IVPD является предпочтительным на мясных фермах, поскольку это уменьшает количество обработок. Из-за сокращенного интервала от исходного GnRH до PGF2α в 5-дневном протоколе IVPD и вариабельности лютеолиза у некоторых коров после введения одной дозы PGF2α на 5-й день эстрального цикла, все коровы должны получить вторую дозу PGF2α приблизительно через 6–12 часов после первого введения PGF2α при извлечении CIDR.
Добавление лошадиного хорионического гонадотропина
Лошадиный хорионический гонадотропин (eCG) добавляется в протоколы синхронизации как средство ускорения развития фолликулов. Использование eCG в протоколах воспроизводства улучшает репродуктивную эффективность у сезонно телящихся, анестральных коров. Добавление 4000 МЕ eCG при удалении прогестеронового устройства способствовало получению 74% стельностей на 49-й день случного сезона.65 Включение eCG через 6 или 7 дней протокола GPG/P4 увеличило оплодотворяемость на 28-день после осеменения (с 52,3% до 58,6%) и сократило средний день до зачатия у анэстральных молочных коров.66 У южноамериканских лактирующих мясных коров на пастбищном содержании и молочных лактирующих анэстральных коров, добавление eCG увеличило оплодотворяемость на 10–15% после ИО в фиксированное время по сравнению с тем же протоколом без eCG.67–69
Заключение
В настоящее время существуют протоколы синхронизации эструса и овуляции для успешного достижения приемлемой фертильности после осеменения в естественную охоту или в фиксированное время без выявления охоты. Кроме того, успех достигается у самок, у которых могут отсутствовать циклы на момент начала лечения. Инициирование фертильной овуляции у перибубертальных телок и ациклических коров, вероятно, является основным способом, с помощью которого производители могут улучшить фертильность при синхронизации охоты и в протоколах ИО по времени. Использование основанной на IVPD синхронизации перед осеменением коров и телок повышает фертильность более эффективно, чем другие гормональные синхронизирующие вмешательства. Разработка протоколов синхронизации, которые уменьшают влияние факторов, связанных с снижением синхронности течки и/или овуляции, предоставят производителям крупного рогатого скота эффективные и действенные инструменты для улучшения генетики. Поскольку местоположение, разница в пастбищах, рацион, порода, упитанность, сервис-период, климат и географическое положение могут влиять на успех протоколов синхронизации, следует учитывать эти переменные факторы, чтобы повысить успешность синхронизации.
-
Ginther O, Bergfelt D, Kulick L, Kot K. Пульсирующий характер изменений системных концентраций FSH и LH в период развития фолликулярной волны у крупного рогатого скота. Theriogenology 1998;50:507–519.
-
Ginther O, Bergfelt D, Beg M, Kot K. Отбор фолликула у крупного рогатого скота: роль лютеинизирующего гормона. Biol Reprod 2001;64:197–205.
-
Savio J, Thatcher W, Morris G, Entwhistle K, Drost M, Mattiacci M. Влияние создания низких концентраций прогестерона в плазме с помощью интравагинального устройства, высвобождающего прогестерон, на смену фолликулов и оплодотворяемость крупного рогатого скота. J Reprod Fertil 1993;98:77–84.
-
Bo G, Adams G, Pierson R, Mapletoft R. Экзогенное управление началом фолликулярной волны у крупного рогатого скота. Theriogenology 1995;43:31–40.
-
Austin J, Mihm M, Ryan M, Williams D, Roche J. Влияние продолжительности доминирования овуляторного фолликула на начало охоты и плодовитость тёлок. J Anim Sci 1999;77:2219–2226.
-
Kastelic J, Knopf L, Ginther O. Влияние дня введения простагландина на отбор и развитие овуляторного фолликула у тёлок. Anim Reprod Sci 1990;23:169–180.
-
Kastelic J, Ginther O. Факторы, влияющие на происхождение овуляторного фолликула у тёлок с индуцированным лютеолизом. Anim Reprod Sci 1991;26:13–24.
-
Roche J, Mihm M, Diskin M, Ireland J. Обзор регуляции роста фолликулов у крупного рогатого скота. J Anim Sci 1998;76:16–23.
-
Twagiramungu H, Guilbault L, Dufour J. Синхронизация волн роста фолликулов яичника с помощью агониста гонадотропин-рилизинг-гормона для повышения точности определения времени охоты у крупного рогатого скота: обзор. J Anim Sci 1995;73:3141–3151.
-
Ryan M, Mihm M, Roche J. Влияние введения GnRH до или после установления доминирования фолликула на гонадотропный ответ и судьбу соответствующей фолликулярной волны у молочных коров после отёла. J Reprod Fertil Abstr Ser 1998;21:61.
-
Bo G, Adams G, Caccia M, Martinez M, Pierson R, Mapletoft R. Начало фолликулярной волны в яичниках после обработки прогестагеном и эстрадиолом у крупного рогатого скота. Anim Reprod Sci 1995;39:193–204.
-
Martinez M, Adams G, Bergfelt D, Kastelic J, Mapletoft R. Влияние LH или GnRH на доминантный фолликул первой фолликулярной волны у тёлок. Anim Reprod Sci 1999;57:23–33.
-
Vasconcelos J, Silcox R, Rosa G, Pursley J, Wiltbank M. Доля животных с синхронизированной овуляцией, размер овуляторного фолликула и частота наступления стельности при начале синхронизации овуляции в разные дни полового цикла у лактирующих молочных коров. Theriogenology 1999;52:1067–1078.
-
Moreira F, Orlandi C, Risco CA, Mattos R, Lopes F, Thatcher W. Влияние предварительной синхронизации и бычьего соматотропина на частоту наступления стельности при искусственном осеменении в фиксированные сроки у лактирующих молочных коров. J Dairy Sci 2001;84:1646–1659.
-
Wiltbank J, Sturges J, Wideman D, LeFever D, Faulkner L. Управление охотой и овуляцией с помощью подкожных имплантатов и эстрогенов у мясного крупного рогатого скота. J Anim Sci 1971;33:600–606.
Ссылки
-
Diskin M, Austin E, Roche J. Экзогенная гормональная регуляция активности яичников у крупного рогатого скота. Domest Anim Endocrinol 2002;23:211–228.
-
Ginther O. Отбор доминантного фолликула у крупного рогатого скота и лошадей. Anim Reprod Sci 2000;60/61:61–79.
-
Adams G, Matteri R, Ginther O. Влияние прогестерона на фолликулы яичника, начало фолликулярных волн и концентрацию циркулирующего фолликулостимулирующего гормона у тёлок. J Reprod Fertil 1992;95: 627–640.
-
Ginther O, Kot K, Kulick L, Wiltbank M. Появление и расхождение фолликулов в ходе развития фолликулярных волн у крупного рогатого скота. Theriogenology 1997;48:75–87.
-
Ginther O, Bergfelt D, Kulick L, Kot K. Отбор доминантного фолликула у крупного рогатого скота: начало расхождения фолликулов менее чем за 8 часов вследствие снижения концентрации FSH. Theriogenology 1999;52:1079–1093.
-
Bó G, Adams G, Pierson R, Tribulo H, Caccia M, Mapletoft R. Динамика фолликулярных волн после введения эстрадиола--17β тёлкам с прогестагеновым имплантатом и без него. Theriogenology 1994;41:1555–1569.
-
Martínez M, Kastelic J, Bó G, Caccia M, Mapletoft R. Влияние эстрадиола и некоторых его эфиров на высвобождение гонадотропинов и динамику фолликулов яичника у мясного крупного рогатого скота, получавшего CIDR. Anim Reprod Sci 2005;86:37–52.
-
Martínez M, Kastelic J, Mapletoft R. Влияние эстрадиола на высвобождение гонадотропинов, охоту и овуляцию у мясного крупного рогатого скота, получавшего CIDR. Domest Anim Endocrinol 2007;33:77–90.
-
Bó G, Baruselli P, Moreno D и др. Управление развитием фолликулярных волн в программах переноса эмбрионов с самостоятельно назначаемыми сроками у крупного рогатого скота. Theriogenology 2002;57:53–72.
-
Caccia M, Bó G. Начало фолликулярной волны после введения бензоата эстрадиола и прогестерона мясным тёлкам с имплантированным CIDR-B. Theriogenology 1998;49:341 (аннотация).
-
Colazo M, Martínez M, Small J и др. Влияние валерата эстрадиола на динамику фолликулов яичника и ответ на суперовуляцию у крупного рогатого скота, получавшего прогестин. Theriogenology 2005;63:1454–1468.
