
Диаметр семенных канальцев увеличивается приблизительно до 200 мкм к 8 месяцам жизни и достигает 240 мкм к 16 месяцам.14,28, 33 У быков голштинской породы общая длина семенных канальцев в одном семеннике увеличивается с 830 м в 3 месяцев жизни до 2010 м в 8 месяцев жизни.28После 6–7 месяцев жизни большинство клеток Сертоли завершают морфологическую дифференцировку и приобретают строение, характерное для взрослых животных. При этом можно наблюдать контактные комплексы, состоящие из множества последовательно расположенных точек или линий слияния мембран соседних клеток Сертоли. Эти контакты образуют функциональный гематотестикулярный барьер и разделяют эпителий канальцев на базальный отдел, содержащий сперматогонии, и адлюминальный отдел, содержащий половые клетки на более поздних стадиях сперматогенеза; формирование функционального гематотестикулярного барьера сопровождается образованием просвета канальцев и предшествует появлению первичных сперматоцитов и половых клеток на более поздних стадиях развития.9–11У быков голштинской породы число клеток Сертоли взрослого типа резко возрастает с 202 до 8862 миллионов клеток на семенник в возрасте 5 и 8 месяцев соответственно.28
Пролиферация половых клеток достигает максимума между 4 и 8 месяцами жизни и отражает увеличение пула стволовых клеток сперматогониев. У быков голштинской породы число сперматогониев возрастает с 181 миллионов клеток на семенник в 4 месяцев жизни до 3773 миллионов клеток на семенник в 8 месяцев жизни; число сперматогониев продолжает увеличиваться примерно до 12 месяцев жизни.28Число первичных сперматоцитов медленно увеличивается до 8 месяцев жизни, когда оно превышает число сперматогониев. Вторичные сперматоциты и округлые сперматиды впервые появляются приблизительно в 6–7 месяцев жизни, тогда как удлинённые сперматиды появляются примерно в 8 месяцев. После 10 месяцев жизни число сперматид быстро возрастает и становится больше числа половых клеток любого другого типа. Зрелые сперматозоиды появляются в семенных канальцах приблизительно в 8–10 месяцев жизни. Семенники массой более 100 g у быков шведской красно-пёстрой породы или более 80 g у быков голштинской породы, вероятно, уже вырабатывают сперматозоиды.9, 11, 14, 28, 29В конечном итоге сперматогенез достигает такого уровня эффективности (то есть из отдельных клеток-предшественников образуется всё больше половых клеток на поздних стадиях развития), при котором вырабатывается количество сперматозоидов, достаточное для их появле-
ния в эякуляте, — физиологического события, характеризующего наступление половой зрелости (см. главу 5).
Метаболические гормоны в предпубертатный и пубертатный периоды
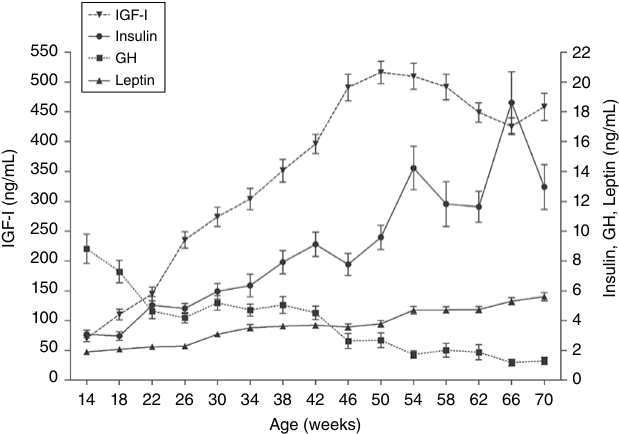
Механизмы регуляции размножения и энергетического баланса неразрывно связаны и сформировались в ходе эволюции, обеспечивая преимущества при размножении и выживание видов. Нервный аппарат, оценивающий интенсивность обмена веществ и энергетический баланс, получил название «метаболический сенсор» организма. Этот сенсор преобразует сигналы, определяемые концентрациями определённых гормонов в крови (на периферии), в нейронные сигналы, которые в конечном счёте регулируют генератор импульсов GnRH и управляют репродуктивным процессом. Гормоны — показатели метаболического состояния могут служить сигналами для гипоталамо-гипофизарно-гонадной оси и влиять на половое развитие. Динамика некоторых из этих гормонов изучалась у растущих быков мясных пород (рисунок 4.6). В отличие от видов, у которых концентрация циркулирующего гормона роста (GH) продолжает увеличиваться и после наступления половой зрелости, у быков концентрация GH в пубертатный период снижается.16,34Различия в стадии развития организма, на которой представители разных видов достигают половой зрелости, вероятно, обусловливают различия в динамике GH между видами. Соответственно, динамика GH у быков, по-видимому, указывает на то, что для эффективной выработки сперматозоидов гонадами организм должен достичь относительно поздней стадии развития. Различия в секреции GH между видами могут быть связаны с регуляторным влиянием стероидов на его секрецию. У других видов стероиды стимулируют секрецию GH, но концентрации GH у интактных быков и кастрированных бычков не различаются.35Кроме того, в ходе полового развития снижение концентрации GH наблюдается одновременно с повышением концентрации тестостерона, что указывает на отсутствие у быков положительной обратной связи между стероидами и секрецией GH, характерной для других видов.16,34
Концентрация циркулирующего инсулиноподобного фактора роста (IGF)-I у быков непрерывно повышается и достигает плато
IGF-I
Инсулин
550 GH 22
500 Лептин 20
450 18
400 16
350 14
300 12
250 10
200 8
150 6
100 4
50 2
0 0
14 18 22 26 30 34 38 42 46 50 54 58 62 66 70
Возраст (недели)
IGF-I (нг/mL)
Инсулин, GH, лептин (нг/mL)
Рисунок 4.6Средние концентрации (± SEM) IGF-I, инсулина, GH и лептина в сыворотке крови в ходе полового развития у быков пород ангус и ангус × шароле при полноценном кормлении.16, 26, 27, 34
(или несколько снижается) лишь после того, как половое развитие в основном завершается в возрасте старше 12–14 месяцев; в ходе полового развития также наблюдаются повышение концентрации циркулирующего белка, связывающего IGF, 3 и снижение концентрации белка, связывающего IGF, 2.16,26,27,34,36–38Одновременное снижение концентрации циркулирующего GH и повышение концентрации IGF-I в ходе полового развития быков указывает либо на резкое изменение чувствительности печени к GH, либо на наличие других источников выработки IGF-I. Одним из возможных источников IGF-I могут быть семенники, поскольку у других видов клетки Лейдига способны секретировать этот гормон. Наблюдения, согласно которым у интактных быков в возрасте 12 месяцев концентрация IGF-I, как правило, выше, чем у кастрированных бычков, дополнительно подтверждают предположение о том, что семенники могут вносить существенный вклад в концентрацию циркулирующего IGF-I в предпубертатный и пубертатный периоды у быков.35Тесные временные связи, выявленные в серии исследований кормления, убедительно указывают на то, что циркулирующий IGF-I может участвовать в регуляции генератора импульсов GnRH, а также величины и продолжительности раннего подъёма уровня гонадотропинов у быков мясных пород.16,26,27
Также высказывалось предположение о возможном влиянии IGF-I на стероидогенез в семенниках быков. Клетки Лейдига и Сертоли вырабатывают IGF-I, что указывает на существование паракринных и аутокринных механизмов регуляции функции семенников с участием IGF-I.39,40Предполагается, что большая часть IGF-I в семенниках вырабатывается локально, а циркулирующий IGF-I может играть второстепенную роль в регуляции развития и функции семенников. Однако временная динамика и тесная взаимосвязь между концентрацией циркулирующего IGF-I, размером семенников и секрецией тестостерона, наблюдавшиеся у быков при разных уровнях кормления, свидетельствуют в пользу ведущей роли этого гормона.16,26,27Основная роль повышения концентрации циркулирующего IGF-I в пубертатный период может заключаться в повышении концентрации тестостерона за счёт регуляции размножения, дифференцировки и созревания клеток Лейдига. Поскольку тестостерон усиливает выработку IGF-I и экспрессию рецепторов IGF-I клетками Лейдига и Сертоли,41формирование положительной обратной связи между секрецией IGF-I и выработкой тестостерона может иметь важное значение для полового развития.
Концентрации циркулирующих лептина и инсулина у быков также повышаются в пубертатный период. Однако различия в частоте импульсов LH, связанные со стадией развития и уровнем кормления, у быков мясных пород не связаны с различиями в концентрациях лептина или инсулина.16,27Другие исследования также показали, что лептин не стимулируетin vitroсекрецию GnRH в эксплантатах гипоталамуса или секрецию гонадотропинов в клетках аденогипофиза, полученных от быков и кастрированных бычков, содержавшихся при полноценном кормлении.42Эти результаты указывают на то, что роль этих гормонов в регуляции секреции GnRH у быков, если она вообще существует, может быть исключительно пермиссивной.
Развитие семенников, не зависящее от GnRH
Быстрый рост семенников, наблюдаемый у быков после 6 месяцев жизни, происходит на фоне снижения концентраций циркулирующих гонадотропинов, что указывает на существование важных механизмов регуляции развития семенников, не зависящих от GnRH. Период ускоренного роста семенников совпадает с повышением концентраций циркулирующих IGF-I и лептина; у
растущих быков мясных пород16,34выявлена тесная взаимосвязь между этими гормонами и размером семенников, что указывает на возможное участие метаболических гормонов в регуляции развития семенников, не зависящего от GnRH. Поскольку в этих исследованиях не было обнаружено связи между концентрациями циркулирующих метаболических гормонов и гонадотропинов, возможное влияние метаболических гормонов на рост семенников, вероятно, является прямым и не зависит от гипоталамуса и гипофиза. Ускоренный рост семенников у быков сопровождается увеличением диаметра и длины семенных канальцев, объёма паренхимы семенников, занимаемого семенными канальцами, и общего числа половых клеток.9,28Хотя концентрации IGF-I и лептина связаны с размером семенников, связи между этими гормонами и диаметром и площадью семенных канальцев, площадью семенного эпителия или объёмом, занимаемым семенными канальцами, не обнаружено (L.F.C. Brito, неопубликованные результаты). Эти наблюдения позволяют предположить, что повышение концентраций циркулирующих IGF-I и лептина связано с увеличением длины семенных канальцев и, вероятно, с общим увеличением числа клеток семенников. С учётом клеточных процессов, происходящих в семенниках в пубертатный период, временная динамика концентраций метаболических гормонов указывает на то, что циркулирующие IGF-I и лептин могут участвовать в регуляции размножения и созревания клеток Лейдига, созревания клеток Сертоли и размножения половых клеток в период ускоренного роста семенников у быков, не зависящего от GnRH.
Концентрации рецепторов LH и FSH в семенниках быков мясных пород снижаются примерно в 5–6 месяцев жизни, но затем повышаются как минимум приблизительно до 13 месяцев жизни, что может увеличивать чувствительность клеток Лейдига и Сертоли к низким концентрациям гонадотропинов в фазе быстрого роста семенников.29К другим механизмам, которые могут быть связаны с ростом семенников, не зависящим от GnRH, относятся изменения концентраций и биодоступности в семенниках факторов роста, таких как трансформирующий фактор роста (TGF)-α, TGF-β1, TGF-β2 и TGF-β3, а также интерлейкин (IL)-1α, IL-1β и IL-6.43,44Кроме того, эксперименты по оценке влияния питания на половое развитие показали, что воздействие гонадотропинов на ткани-мишени в препубертатный период имеет долгосрочные последствия для развития семенников у быков. У быков, у которых частота импульсов секреции ЛГ была выше или её повышение в период раннего подъёма секреции гонадотропинов было более продолжительным, период ускоренного роста семенников был длительнее, а их размер в возрасте 15–16 месяцев — больше, даже если после 6 месяцев различий в концентрациях метаболических гормонов или тестостерона не наблюдалось. Эти результаты указывают на то, что предполагаемое влияние циркулирующих метаболических гормонов, гонадотропинов, местных факторов роста и других неизвестных факторов в период быстрого роста семенников может зависеть от предшествующего воздействия ЛГ в препубертатный период. По-видимому, характер секреции ЛГ во время раннего подъёма секреции гонадотропинов «задаёт программу» развития семенников и определяет их максимальный размер у быков.16, 26, 27
Список литературы
-
Amann R, Wise M, Glass J, Nett T. Препубертатные изменения в гипоталамо-гипофизарной системе быков голштинской породы. Biol Reprod 1986; 34:71–80.
-
Wise M, Rodriguez R, Kelly C. Регуляция секреции ЛГ гонадами у бычков в препубертатный период. Domest Anim Endocrinol 1987;4: 175–181.
-
Rodriguez R, Wise M. Становление пульсирующей секреции гонадотропин-рилизинг-гормона у бычков в период раннего и пубертатного развития. Endocrinology 1989;124:248–256.
-
Evans A, Currie W, Rawlings N. Опиоидергическая регуляция секреции гонадотропинов у бычков в ранний препубертатный период. J Reprod Fertil 1993;99:45–51.
-
Rodriguez R, Benson B, Dunn A, Wise M. Возрастные изменения биогенных аминов, опиатных и стероидных рецепторов у бычков в препубертатный период. Biol Reprod 1993;48:371–376.
-
Rodriguez R, Wise M. Ускорение становления постнатальной пульсирующей секреции лютеинизирующего гормона у бычков посредством пульсирующего введения гонадотропин-рилизинг-гормона в период раннего развития. Biol Reprod 1991;44:432–439.
-
Wrobel K, Dostal S, Schimmel M. Постнатальное развитие собственной оболочки семенных канальцев и межканальцевой ткани в семенниках крупного рогатого скота. Cell Tissue Res 1988;252:639–653.
-
Wrobel K. Постнатальное развитие популяции клеток Лейдига у крупного рогатого скота. Reprod Domest Anim 1990;25:51–60.
-
Abdel-Raouf M. Постнатальное развитие репродуктивных органов у быков с особым вниманием к половому созреванию (включая рост гипофиза и надпочечников). Acta Endocrinol 1960; доп. 49:1–109.
-
Sinowatz F, Amselgruber W. Постнатальное развитие клеток Сертоли у крупного рогатого скота. Anat Embryol (Berl) 1986;174:413–423.
-
Wrobel K. Пресперматогенез и сперматогониогенез в семенниках крупного рогатого скота. Anat Embryol (Berl) 2000;202:209–222.
-
Amann R, Walker O. Изменения в гипофизарно-гонадной системе, связанные с половым созреванием быков голштинской породы. J Anim Sci 1983;57:433–442.
-
Evans A, Davies F, Nasser L, Bowman P, Rawlings N. Различия в раннем характере секреции гонадотропинов у быков с ранним и поздним половым созреванием и изменения характеристик спермы при достижении половой зрелости. Theriogenology 1995;43:569–578.
-
Evans A, Pierson R, Garcia A, McDougall L, Hrudka F, Rawlings N. Изменения концентраций циркулирующих гормонов, гистологической картины семенников и их ультразвукового изображения в период полового созревания быков мясных пород. Theriogenology 1996;46:345–357.
-
Aravindakshan J, Honaramooz A, Bartlewski P, Beard A, Pierson R, Rawlings N. Характер секреции гонадотропинов и ультразвуковая оценка изменений в развитии семенников у бычков с ранним и поздним половым созреванием. Theriogenology 2000;54:339–354.
-
Brito L, Barth A, Rawlings N и др . Влияние питания в период выращивания телят и около пубертатного периода на концентрации метаболических гормонов, гонадотропинов и тестостерона в сыворотке крови, а также на половое развитие быков. Domest Anim Endocrinol 2007;33:1–18.
-
Schanbacher B. Связь связывания гонадотропинов семенниками крупного рогатого скота in vitro с началом сперматогенеза. J Anim Sci 1979;48:591–597.
-
Saez J. Клетки Лейдига: эндокринная, паракринная и аутокринная регуляция. Endocrinol Rev 1994;15:574–626.
-
Rawlings N, Hafs H, Swanson L. Андрогены в семенниках и плазме крови быков голштинской породы от рождения до полового созревания. J Anim Sci 1972;34:435–440.
-
Rawlings N, Fletcher P, Henricks D, Hill J. Уровни лютеинизирующего гормона (ЛГ) и тестостерона в плазме крови в период полового созревания бычков мясных пород. Biol Reprod 1978;19:1108–1112.
-
McCarthy M, Hafs H, Convey E. Динамика гормонов в сыворотке крови, связанная с ростом и половым развитием быков. J Anim Sci 1979;49:1012–1020.
-
Lacroix A, Pelletier J. Краткосрочные колебания уровней ЛГ и тестостерона в плазме крови бычков от рождения до возраста 1 года. J Reprod Fertil 1979;55:81–85.
-
Chandolia R, Evans A, Rawlings N. Влияние подавления повышенной секреции гонадотропинов у бычков до возраста 20 недель на развитие семенников. J Reprod Fertil 1997;109:65–71.
-
Chandolia R, Honaramooz A, Bartlewski P, Beard A, Rawlings N. Влияние введения рилизинг-гормона ЛГ до раннего подъёма секреции ЛГ на эндокринное и репродуктивное развитие бычков. J Reprod Fertil 1997;111:41–50.
-
Madgwick S, Bagu E, Duggavathi R и др . Влияние введения GnRH в возрасте от 4 до 8 недель на достижение половой зрелости бычками. Anim Reprod Sci 2008;104:177–188.
-
Brito L, Barth A, Rawlings N и др . Влияние улучшенного питания в период выращивания телят на концентрации метаболических гормонов, гонадотропинов и тестостерона в сыворотке крови, а также на развитие семенников у быков. Domest Anim Endocrinol 2007;33:460–469.
-
Brito L, Barth A, Rawlings N и др. . Влияние ограничения кормления в раннем возрасте на концентрации метаболических гормонов, гонадотропинов и тестостерона в сыворотке крови, а также на половое развитие быков. Reproduction 2007;134:171–181.
-
Curtis S, Amann R. Развитие семенников и становление сперматогенеза у быков голштинской породы. J Anim Sci 1981;53:1645–1657.
-
Bagu E, Cook S, Gratton C, Rawlings N. Постнатальные изменения рецепторов гонадотропинов в семенниках, концентраций гонадотропинов и тестостерона в сыворотке крови и функциональное развитие семенников у быков. Reproduction 2006;132:403–411.
-
Kaneko H, Yoshida M, Hara Y и др. . Участие ингибина в регуляции секреции FSH у быков до наступления половой зрелости. J Endocrinol 1993;137:15–19.
-
Rawlings N, Evans A. Отрицательная обратная связь, опосредованная андрогенами, в период раннего повышения секреции LH у бычков. J Endocrinol 1995;145:243–249.
-
McCarthy M, Convey E, Hafs H. Изменения концентраций гормонов в сыворотке крови и реакция семенников на LH в период полового созревания у быков. Biol Reprod 1979;20:1221–1227.
-
Brito L, Barth A, Wilde R, Kastelic J. Влияние скорости роста в возрасте от 6 до 16 месяцев на половое развитие и репродуктивную функцию быков мясных пород. Theriogenology 2012;77:1398–1405.
-
Brito L, Barth A, Rawlings N и др. . Циркулирующие метаболические гормоны в околопубертатный период и их связь с развитием семенников у быков. Reprod Domest Anim 2007;42:502–508.
-
Lee C, Hunt D, Gray S, Henricks D. Характер секреции гормона роста и инсулиноподобного фактора роста I в околопубертатный период у некастрированных и кастрированных самцов крупного рогатого скота. Domest Anim Endocrinol 1991;8:481–489.
-
Renaville R, Devolder A, Massart S, Sneyers M, Burny A, Portetelle D. Изменения в гипофизарно-гонадной оси в начале полового созревания у молодых быков. J Reprod Fertil 1993;99:443–449.
-
Renaville R, Massart S, Sneyers M и др. . Разобщённость повышения концентраций инсулиноподобного фактора роста I и тестостерона в плазме крови в начале полового созревания у быков. J Reprod Fertil 1996;106:79–86.
-
Renaville R, Van Eenaeme C, Breier B и др. . Ограничение кормления молодых быков изменяет сроки наступления половой зрелости в связи с концентрациями инсулиноподобного фактора роста I (IGF-I) и IGF-связывающих белков в плазме крови. Domest Anim Endocrinol 2000;18:165–176.
-
Spiteri-Grech J, Nieschlag E. Роль гормона роста и инсулиноподобного фактора роста I в регуляции репродуктивной функции самцов. Horm Res 1992;38(доп. 1):22–27.
-
Bellve A, Zheng W. Факторы роста как аутокринные и паракринные модуляторы функций мужских половых желёз. J Reprod Fertil 1989;85:771–793.
-
Cailleau J, Vermeire S, Verhoeven G. Независимая регуляция продукции инсулиноподобного фактора роста I и связывающего его белка в культивируемых клетках семенников. Mol Cell Endocrinol 1990;69:79–89.
-
Amstalden M, Harms P, Welsh T, Randel R, Williams G. Влияние лептина на высвобождение гонадотропин-рилизинг-гормона из гипоталамо-инфундибулярных эксплантатов и на высвобождение гонадотропинов в первичных культурах клеток аденогипофиза: дополнительные свидетельства того, что крупный рогатый скот при полноценном кормлении устойчив к действию лептина. Anim Reprod Sci 2005;85:41–52.
-
Bagu E, Gordon J, Rawlings N. Постнатальные изменения концентраций трансформирующих факторов роста альфа и бета 1, 2 и 3 в семенниках и концентрации инсулиноподобного фактора роста I в сыворотке крови у быков. Reprod Domest Anim 2010;45:348–353.
-
Bagu E, Gordon J, Rawlings N. Постнатальные изменения концентраций интерлейкина-1 альфа и бета и интерлейкина-6 в семенниках в период полового созревания у быков. Reprod Domest Anim 2010;45:336–341.
