
Помимо прямого воздействия на организм хозяина, BVDV подавляет количество и функцию различных врожденных и адаптивных иммунных компонентов, еще более повреждая ткани и способствуя инфицированию вторичными патогенами. BVDV-индуцированная иммуносупрессия особенно важна при полимикробных заболеваниях, таких как бычий респираторный комплекс откормочного скота и молочных телят. Заражение клеток врожденной иммунной системы может привести к нарушению функции и снижению количества циркулирующих лейкоцитов. У нейтрофилов, инфицированных BVDV была нарушена бактерицидная, хемотаксическая и антителозависимая клеточная цитотоксичность ( лизис клетками-киллерами клеток-мишеней, опсонизированных антителами) .120 Инфицированные моноциты могут подвергаться апоптозу, и после инокуляции BVDV телятам наблюдается уменьшение количества моноцитов на 30–70%.121– 123 Инфекция BVDV снижает способность антигенпрезентирующих клеток представлять антиген клеткам T-хелперам за счет снижения экспрессии рецепторов Fc и C3 и подавления молекул главного комплекса гистосовместимости 2 класса ( MHC-II) и B7.121,124–126 После заражения BVDV культивированных макрофагов наблюдалось штаммозависимое ингибирование их функции с пониженной способностью уничтожать бактериальные и грибковые патогены; однако значительное функциональное торможение вызывалось только вирулентными штаммами BVDV.125
Как и в случае с врожденным иммунитетом, инфекции BVDV количественно и качественно влияют на адаптивные иммунные реакции. При заражении BVDV сокращается количество циркулирующих лимфоцитов, а лимфоциты в лимфоидных тканях истощаются, и степень этого истощения зависит от штамма.121,127 Из субпопуляций Т- лимфоцитов наиболее резко истощаются CD8+ цитотоксические Т- лимфоциты, за которыми следуют CD4+ Т-хелперные клетки с небольшим снижением циркулирующих γ/δ Т-клеток.128 В дополнение к истощению лимфоцитов, выраженными яввляются функциональные изменения клеток CD4+, а нецитопатические инфекции BVDV приводят к сдвигу иммунного ответа в сторону Th2 реакции с пониженным клеточно-опосредованным, но высоким уровнем гуморального иммунитета.129–131 Вирулентные изоляты BVDV могут вызывать снижение экспрессии ГКГС-1 класса в инфицированных клетках, что влияет на функцию цитотоксических клеток CD8+; однако, это снижение, повидимому, является штамм-зависимым.125
Гуморальный иммунитет к инфекции BVDV в значительной степени зависит от количества нейтрализующих антител и антигенной взаимосвязи заражающего штамма с первичным воздействием. Хотя, благодаря вакцинации против гетерологичных штаммов обеспечивается перекрестно-реактивная защита, и даже между BVDV 1 и 2 превосходная защита от инфекции, по-видимому, является результатом гомологичного воздействия.132,133
Инфекции репродуктивных органов
В то время как BVDV-ассоциированное подавление иммунного ответа хозяина и респираторное заболевание являются причиной самых наибольших потерь в откормочных и стокерных хозяйствах (хозяйства, скупающие весной молодняк и выбракованных коров для нагула на дешевых пастбищных кормах и затем продающие их на откормочные фермы) , восприимчивые стада маток с телятами ( Cow–calf - хозяйства с маточным поголовьем, занимающиеся получением телят мясных пород на продажу) и молочные стада страдают от значительного экономического ущерба от репродуктивной недостаточности, вызванной BVDV. Репродуктивные потери в результате заражения BVDV могут происходить в течение всего периода стельности, а заражение BVDV во время осеменения может привести к снижению % оплодотворяемости и эмбриональным потерям.
У телок, экспериментально зараженных BVDV за 9 дней до осеменения, оплодотворяемость составила 44% по сравнению с 79% у контрольных животных.134 В том же исследовании другие тёлки были заражены через 4 дня после искусственного осеменения (ИО), и 60% из них диагностированы стельными на 20 день; однако, к 79 дню был обнаружен значительный процент эмбриональных потерь, когда осталось только только 33% стельных животных. Негативные воздействия инфекции BVDV на фертильность были также зарегистрированы в полевых исследованиях, в ходе которых были обнаружены плохие показатели оплодотворяемости, ранние эмбриональные потери и аборты.135–138 Напротив, телки, контактировавшие с ПИ-телятами в течение 220 дней, начиная за 50 дней до случного сезона, имели тот же уровень стельности, что и контрольные нетели без вирусного воздействия, в результате развития защитных иммунных реакций до осеменения.139 Подчеркивая преимущества контролируемого случного сезона, это исследование продемонстрировало, что инфекции BVDV могут быть самоограничивающимися в определенных стадах, когда все животные защищены от BVDV во время беременности, и ПИ-телята не рождаются.139
И мужские и женские половые железы и вся женская репродуктивная система являются пристанищем для репликации BVDV.140 У постпубертатных телок, экспериментально инфицированных нецитопатическим BVDV, у двух животных вирус был выделен из желтого тела, и окрашивание антигена BVDV было обнаружено преимущественно в строме коры яичника. В этом исследовании длительное окрашивание антигена и связанный с ним хронический лимфоцитарный оофорит были обнаружены через 6-60 дней после интраназальной инокуляции.141 Аналогичным образом, экспериментальная инокуляция восприимчивых телок цитопатическим BVDV привела к хроническому оофориту в течение 5–61 дней после заражения, и BVDV был обнаружен в яичниках подгруппы телок, иммунизированных коммерческой вакциной, содержащей цитопатический BVDV.142,143 Воспаление яичников может изменить концентрацию цитокинов в яичниках или разрушить тканевые макрофаги, таким образом нарушая нормальную динамику яичников, и хотя влияние BVDV на функцию яичников остается не полностью понятным, после заражения BVDV выявлялось изменение процесса образования фолликулов и ингибирование овуляции.144 Уменьшение количества подчиненных фолликулов и замедление роста доминантных ановуляторных и овуляторных фолликулов наблюдались у телок, экспериментально инфицированных BVDV, но инфекция не приводила к изменениям периферического уровня эстрадиола или прогестерона.144 Напротив, экспериментальное заражение нецитопатическим BVDV за 2 дня до эструса привело к значительному снижению концентрации эстрадиола в плазме, но не влияло на секрецию прогестерона или концентрации простагландина PGF2α в плазме.145 Несмотря на то, что среднее количество фолликулов в каждой размерной категории не было затронуто у инфицированных BVDV суперовулированных телок, инфекция привела к отсутствию или задержке преовуляторного выброса лютеинизирующего гормона, уменьшению количества желтых тел и извлеченных яйцеклеток/ эмбрионов, а также оофориту с некрозом гранулезных клеток.146–148 Изменение концентраций половых гормонов с потенциалом к разрушению овуляторных фолликулов с образованию компетентного желтого тела были также обнаружены у телок, экспериментально инокулированных за 9 дней до синхронизированной овуляции.149
В совокупности эти исследования показывают, что преходящие инфекции BVDV могут мешать нормальной динамике яичников и приводить к кратковременному или длительному снижению репродуктивной способности.148,150 Были предложены другие причины репродуктивных потерь, связанных с заражением BVDV во время осеменения, которые включают нарушение оси гипоталамус-гипофиз-гонады, дефицит гонадальных лейкоцитов и несовместимость среды яйцеводов и матки для эмбрионального развития.140,150
Инфекция BVDV была обнаружена в клетках яйцевода коров после внутривенной инокуляции нецитопатическим BVDV, а внутриматочное инфицирование цитопатическим BVDV привело к сальпингиту в течение 21-го дня.151 При промывании матки у подгруппы экспериментально инфицированных телок BVDV был выделен на 8 и 16 дни после заражения, демонстрируя потенциальный риск для развития эмбриона в среде матки.152 Распространенное инфицирование BVDV репродуктивной системы и снижение эффективности воспроизводства описаны у ПИ-коров. Также, у ПИ-коров были описаны обширное BVDVиммуноокрашивание и патологоанатомические нарушения, включая значительно уменьшенные фолликулярные структуры и гипоплазию яичников и фолликулов.153 Помимо овариальных структур, включающих фолликулярный эпителий, клетки теки, яйценосный бугорок (участок многослойного эпителия в стенке зрелого фолликула, содержащий овоцит) , стромальные макрофаги и стенки мелких артерий, антиген BVDV у крс присутствует в эпителиальных клетках яйцевода, эпителии маточных желез и просвета матки, стенках артерий и гладких мышцах.154,155 В то время как в одном исследовании ооциты в первичных и вторичных фолликулах не содержали антигена BVDV, по данным другого исследования приблизительно 20% ооцитов на всех стадиях развития фолликула содержали антиген BVDV.145,155
Инфекции концепта
Инфекции BVDV могут оказывать вредное воздействие на стельность, а заражение до третьего триместра является наиболее пагубным. BVDV очень эффективно преодолевает плацентарный барьер, и инфекции плода распространены с любым биотипом.156 У коров, экспериментально инфицированных через 4, 11, 18 и 30–34 дня после осеменения, частота случаев внутриутробного заражения повышалась и составила 33, 33, 86 и 100%, соответственно.157 У овец, инфицированных BVDV на 18-й день беременности, вирус был обнаружен с помощью ПЦР с обратной транскрипцией (RT-PCR) и ИГХ в тканях плода примерно через 100 часов после заражения, а BVDV-позитивные клетки были более многочисленными в тканях плода, чем в материнских тканях.158
Заражение плода происходит последовательно, начиная с инфицирования плодных оболочек в течение 72 часов, после чего за 7 дней инфицируется сердечная луковица и аорта плода с последующим распространением вируса на многие ткани плода к 10–14 дню.158,159 По мере развития инфекции можно наблюдать дальнейшую диссеминацию (распространение) через ткани плода, при этом основным целевым органом инфекции BVDV является мозг плода.160 В то время как вирусный антиген может быть обнаружен в большинстве тканей от ПИ-плодов гистопатологические же изменения в основном обнаруживаются в мозге, печени и селезенке.161 Инвазия в головной мозг плода может происходить по типу вторжения «троянского коня», при котором BVDV проникает в центральную нервную систему (ЦНС) внутри инфицированных предшественников микроглии.162
На сегодняшний день механизм проникновения BVDV в плод плохо изучен. Заражение стельных коров нецитопатическим BVDV приводит к выраженной активации интерферон (IFN)стимулированных генов, таких как ISG15, в первую неделю после заражения, а концентрации в крови возвращаются к исходному уровню через 45 дней после заражения.163,164 У нетелей с персистентно или транзитно инфицированными плодами, инфекция BVDV приводит к умеренным концентрациям в сыворотке крови IFN I типа, но эта противовирусная активность не способна предотвратить инфекцию плода.164 Это может быть связано с неспособностью материнского IFN типа I и антител проникать в кровоток плода из-за гемато-плацентарного барьера.164 Аналогичным образом, инфекция BVDV приводит к измеримым концентрациям IFN в крови плода, что выражено у плодов, инфицированных после окна восприимчивости к развитию персистирующей инфекции.165 Хотя ответная выработка IFN также присутствуют у ПИ-плодов и в результате у ПИ-телят, эти реакции имеют более сдержанный и хронический характер и не способны устранить заражение BVDV при отсутствии специфических адаптивных иммунных ответов.165,166
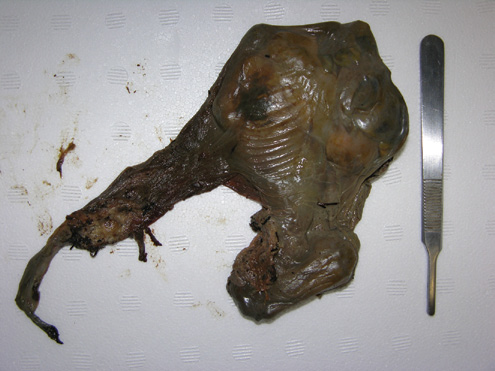
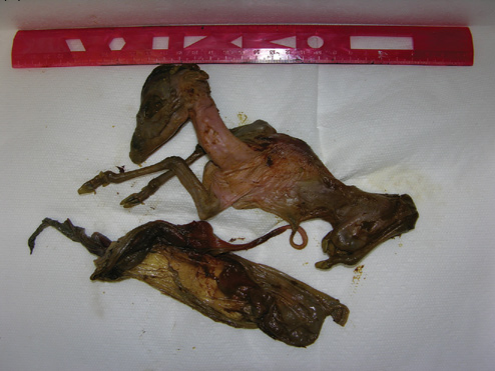
Исход инфекции у плода зависит от вирулентности и биотипа вируса, а также от гестационного возраста. Смерть плода и аборты могут произойти в любом гестационном возрасте, но чаще всего встречаются в первом триместре.150 Гибель плода на ранних сроках может привести к его резорбции или мумификации (рис. 60.1), а изгнание плода может произойти в течение 50 дней после воздействия BVDV.167
(a)
(b)
Из четырех нетелей, инфицированных в период между 29 и 41 днем стельности, у двоих наблюдался аборт и у двоих резорбция плода.168 В то время как заражение в предимплантационной фазе (до 40-го дня беременности) приводит к массовым потерям стельности, плоды, которые выживают после инфицирования нецитопатическим BVDV от низкой до умеренной вирулентности на сроке примерно от 40 до 125 дней, становятся ПИ.169,170 Персистентные инфекции могут возникать только с нецитопатическими штаммами BVDV, а экспериментальное заражение цитопатическими изолятами не приводило к рождению ПИ-телят.170,171 Экспериментальная инокуляция серонегативного крупного рогатого скота нецитопатическим BVDV на 75-й день стельности приводит к персистирующей инфекции до 100% плодов, и этот гестационный возраст обычно используется для индуцирования персистирующей инфекции в научных исследованиях.164,166,172,173 Патофизиология персистирующей инфекции не совсем понятна, но это явление возникает у плодов до завершения развития иммунной системы, когда вирусные антигены распознаются как собственные антигены, что приводит к отрицательной селекции BVDV-специфических лимфоцитов.150 Отрицательный отбор реагирующих CD4+ лимфоцитов высокоспецифичен, и замены одной аминокислоты в антигене BVDV может быть достаточно для стимуляции иммунных реакций в CD4+ лимфоцитах крупного рогатого скота.174 Отсутствие иммунного ответа приводит к обширному распространению BVDV по тканям хозяина, и ПИ-скот выделяет BVDV со многочисленными секретами и экскретами, включая выделения из носа, мочу, сперму, молозиво, молоко и кал.175
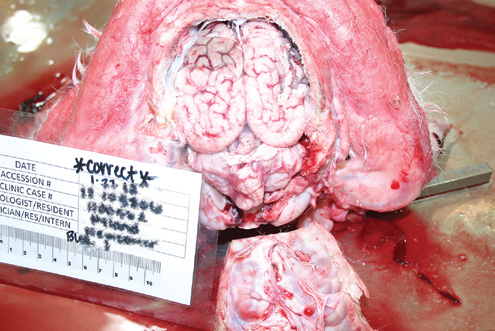
Инфицирование плода в период органогенеза (приблизительно 100– 150 дней беременности) может приводить к врожденным порокам развития, многие из которых связаны с аномальным развитием нервных тканей. Дефекты ЦНС включают гипоплазию мозжечка (рис. 60.2), гидранэнцефалию, гидроцефалию, порэнцефалию, микроэнцефалию, гипоплазию спинного мозга и различные изменения глаза, такие как катаракта, неврит зрительного нерва, дегенерация сетчатки и микрофтальмия.150,176,177 Реже врожденная инфекция BVDV может вызывать гипомиелинизацию ЦНС, которую, по сообщениям, провоцируют оба вида BVDV.178,179
В дополнение к аномалиям ЦНС врожденные инфекции BVDV могут приводить к брахигнатизму, остеопетрозу, аплазии тимуса, гипотрихозу, аномалиям волосяного покрова, легочной гипоплазии и задержке роста.150,175,176,180 Хотя аборты все еще возможны на более поздних сроках стельности, врожденные инфекции после завершения органогенеза и установления иммунокомпетентности приводят к эффективным иммунным реакциям и очищению от вируса. Такие телята рождаются с высокими титрами доколостральных сывороточных антител и обычно выглядят нормальными при рождении.150 Тем не менее, одно исследование показало, что у телят, рожденных с преколостральными антителами против BVDV, чаще развивается тяжелое заболевание в течение первых месяцев жизни, что указывает на то, что поздние гестационные инфекции с BVDV могут быть не доброкачественными.181
Инфекции у персистентно зараженных животных (болезнь слизистой оболочки)
Хотя ПИ-телята могут дожить до репродуктивного возраста, многие рождаются слабыми, отстают в росте и умирают вскоре после рождения.112 ПИ-крупный рогатый скот имеет на 50% больше риска выбыть из стада до первого года жизни, умереть или отправиться на убой из-за худосочности по сравнению с нормальными когортами, что может быть отчасти связано со слабым иммунным ответом и подверженностью оппортунистическим инфекциям.188,183 Дополнительным риском для ПИ-крс является развитие фатальной болезни слизистой оболочки, которая развивается, когда животные, персистентно инфицированные нецитопатическим BVDV, становятся суперинфицированными цитопатическим штаммом. Тяжесть развивающихся клинических признаков зависит от гомологии между обоими штаммами, а само заболевание слизистой оболочки можно классифицировать как острое, хроническое или заболевание с отсроченным началом.184
Острое заболевание слизистой оболочки возникает, когда суперинфицирующий цитопатический штамм находится в тесной антигенной гомологии со штаммом ПИ, что чаще всего является результатом мутаций, которые изменяют биотип штамма ПИ.185 Из-за близкой гомологии обоих штаммов, острое заболевание слизистых (ОЗС) приводит к тому, что смертность достигает 100%.117 Поскольку ОЗС поражает только ПИ-крс, болезнь характеризуется низкой заболеваемостью, но очень высокой смертностью.117 Тем не менее, в группах коров с многочисленными ПИ-коровами, инфицированными аналогичными штаммами BVDV, были зарегистрированы вспышки ОЗС.186 Клинические признаки включают лихорадку, анорексию, тахикардию, полипноэ, выделения из носа и профузную зловонную диарею со слизью, фибрином и кровью. Кроме того, на пищеварительном эпителии, коронарных артериях, препуции и вульве обычно присутствуют эрозии и язвы (рис. 60.3).117 Суперинфекции с гетерологичными цитопатическими штаммами могут привести к хроническим формам заболеваний слизистой оболочки, которые не являются смертельными, но приводят к хроническим клиническим признакам. Источником гетерологичных цитопатических штаммов обычно являются вакцинные штаммы в модифицированных живых вакцинах.184 Клинические признаки включают анорексию, потерю веса, диарею, вздутие живота, хромоту и эрозивно-язвенные поражения на эпителиальных поверхностях.184 Достаточная гетерология между штаммом ПИ и цитопатическим штаммом может вызвать иммунный ответ, который устраняет суперинфекцию, способствуя выздоровлению животного от заболевания слизистой оболочки, но не от персистентной инфекции.184 В условиях эксперимента инкубационный период острого фатального заболевания слизистой оболочки составлял 7–14 дней.187 Напротив, заболевание слизистой с отсроченным началом встречается у ПИкрупного рогатого скота спустя период от нескольких недель до месяцев после инокуляции цитопатическим штаммом.188
