
-
Smith R, Sanderson M, Walz P, Givens M. Чувствительность полимеразной цепной реакции при выявлении вируса вирусной диареи крупного рогатого скота в объединенных пробах сыворотки крови и применение ПЦР объединенных проб для определения распространенности вируса вирусной диареи крупного рогатого скота среди животных, продаваемых на аукционах. J Vet Diagn Invest 2008;20:75–78.
-
Munoz-Zanzi C, Johnson W, Thurmond M, Hietala S. Тестирование объединенных проб как инструмент скрининга стад для выявления животных с персистентной инфекцией, вызванной вирусом вирусной диареи крупного рогатого скота. J Vet Diagn Invest 2000;12:195–203.
-
Muvavarirwa P, Mudenge D, Moyo D, Javangwe S. Выявление антител к вирусу вирусной диареи крупного рогатого скота методом иммуноферментного анализа. Onderstepoort J Vet Res 1995;62:241–244.
-
Raue R, Harmeyer S, Nanjiani I. Оценка антительного ответа на инактивированные вакцины и естественную инфекцию у крупного рогатого скота с помощью наборов для ИФА на вирус вирусной диареи крупного рогатого скота: оценка возможности различать инфицированных и вакцинированных животных. Vet J 2011;187:330–334.
-
Pillars R, Grooms D. Серологическое исследование пяти невакцинированных телок для выявления стад, в которых имеются животные с персистентной инфекцией, вызванной вирусом вирусной диареи крупного рогатого скота. Am J Vet Res 2002;63:499–505.
-
Waldner C, Campbell J. Использование серологического исследования на антитела к вирусу вирусной диареи крупного рогатого скота для выявления телят с персистентной инфекцией в стадах мясного крупного рогатого скота. Am J Vet Res 2005;66:825–834.
-
Rauff Y, Moore D, Sischo W. Оценка результатов опроса производителей молока о биобезопасности молочных стад и вакцинации против вирусной диареи крупного рогатого скота. J Am Vet Med Assoc 1996;209:1618–1622.
-
Ridpath J. Иммунологические аспекты вакцин против BVDV. Biologicals 2013; 41:14–19.
-
Dean H, Leyh R. Перекрестная защитная эффективность вакцины против вируса вирусной диареи крупного рогатого скота (BVDV) типа 1 при контрольном заражении BVDV типа 2. Vaccine 1999;17:1117–1124.
-
Fairbanks K, Schnackel J, Chase C. Оценка модифицированной живой вакцины против вируса вирусной диареи крупного рогатого скота типа -1a (штамм Singer) при контрольном заражении вирусом типа -2 (штамм 890). Vet Therapeut 2003;4:24–34.
-
Hamers C, Couvreur B, Dehan P и соавт. Оценка клинической и вирусологической защиты, обеспечиваемой коммерческой инактивированной вакциной против вируса вирусной диареи крупного рогатого скота генотипа 1 при контрольном заражении BVDV генотипа 2. Vet Rec 2003;153:236–240.
-
Fulton R, Cook B, Blood K и соавт. Иммунный ответ на иммуногены вакцины против респираторных заболеваний крупного рогатого скота у телят при поступлении на откормочную площадку и его влияние на результаты откорма. Bov Pract 2011;45:1–12.
-
Fulton R, Cook B, Step D и соавт. Оценка состояния здоровья телят и его влияния на результаты откорма: анализ программы, при которой право собственности на телят после отъема сохраняется за прежним владельцем. Can J Vet Res 2002;66:173–180.
-
Fulton R, Johnson B, Briggs R и др. Заражение вирусом вирусной диареи крупного рогатого скота при контакте с телятами с персистентной инфекцией: защита благодаря вакцинации и отрицательные результаты тестирования на антиген у невакцинированных телят с острой инфекцией. Can J Vet Res 2006;70:121–127.
-
Brock K, Widel P, Walz P, Walz H. Формирование защиты от экспериментального заражения вирусом вирусной диареи крупного рогатого скота типа 2 после вакцинации живой модифицированной вакциной. Vet Therapeut 2007;8:88–96.
-
Fulton R, Briggs R, Ridpath J и др. Передача вируса вирусной диареи крупного рогатого скота 1b восприимчивым и вакцинированным телятам при контакте с телятами с персистентной инфекцией. Can J Vet Res 2005;69:161–169.
-
Kelling C. Эволюция вакцин против вирусной диареи крупного рогатого скота. Vet Clin North Am Food Anim Pract 2004;20:115–129.
-
Ellis J, West K, Cortese V, Konoby C, Weigel D. Влияние материнских антител на формирование и сохранение
иммунного ответа, вызванного вакцинацией против вируса вирусной диареи крупного рогатого скота типа II, у телят раннего возраста. J Am Vet Med Assoc 2001;219:351–356.
-
Fulton R, Briggs R, Payton M и др. Гуморальный иммунитет материнского происхождения к вирусу вирусной диареи крупного рогатого скота (BVDV) 1a, BVDV1b, BVDV2, герпесвирусу крупного рогатого скота -1, вирусу парагриппа -3, респираторно-синцитиальному вирусу крупного рогатого скота, Mannheimia haemolytica и Pasteurella multocida у телят мясных пород: изучение снижения уровня антител по периоду полувыведения и влияния материнского иммунитета на ответ на вакцинацию. Vaccine 2004;22:643–649.
-
Munoz-Zanzi C, Thurmond M, Johnson W, Hietala S. Прогнозируемый возраст телят молочных пород, в котором полученные с молозивом антитела к вирусу вирусной диареи крупного рогатого скота перестают обеспечивать защиту от заболевания или препятствовать вакцинации. J Am Vet Med Assoc 2002;221:678–685.
-
Endsley J, Roth J, Ridpath J, Neill J. Материнские антитела блокируют гуморальный, но не Т-клеточный ответ на BVDV. Biologicals 2003;31:123–125.
-
Woolums A. Вакцинация телят: новые данные о влиянии материнского иммунитета. В кн.: 40-я ежегодная конференция Американской ассоциации ветеринарных врачей, специализирующихся на крупном рогатом скоте, Ванкувер, Британская Колумбия , 2007, с. 10–17.
-
Platt R, Widel P, Kesl L, Roth J. Сравнение гуморального и клеточного иммунного ответа на пятивалентную живую модифицированную вирусную вакцину у телят трех возрастных групп с материнскими антителами до и после контрольного заражения BVDV типа 2. Vaccine 2009;27:4508–4519.
-
Cortese V, Grooms D, Ellis J, Bolin S, Ridpath J, Brock K. Защита стельных коров и их плодов от заражения вирусом вирусной диареи крупного рогатого скота типа 1 при использовании живой модифицированной вирусной вакцины. Am J Vet Res 1998;59:1409–1413.
-
Fairbanks K, Rinehart C, Ohnesorge W, Loughin M, Chase C. Оценка защиты плода от экспериментального заражения вирусом вирусной диареи крупного рогатого скота типов 1 и 2 после вакцинации матери двухвалентной живой модифицированной вирусной вакциной. J Am Vet Med Assoc 2004;225:1898–1904.
-
Ficken M, Ellsworth M, Tucker C. Оценка эффективности комбинированной живой модифицированной вакцины против контрольного заражения вирусом вирусной диареи крупного рогатого скота типов 1 и 2 в исследовании защиты плода при продолжительности иммунитета один год. Vet Therapeut 2006;7:283–294.
-
Meyer G, Deplanche M, Roux D и др. Защита плода от заражения вирусом вирусной диареи крупного рогатого скота типа 1 после однократного введения живой аттенуированной вакцины. Vet J 2012;192:242–245.
-
Xue W, Mattick D, Smith L, Maxwell J. Защита плода от вируса вирусной диареи крупного рогатого скота типов 1 и 2 после применения живой модифицированной вирусной вакцины. Can J Vet Res 2009;73:292–297.
-
Ellsworth M, Fairbanks K, Behan S и др. Защита плода при контакте с телятами, персистентно инфицированными вирусом вирусной диареи крупного рогатого скота типа 2, через шестнадцать месяцев после первичной вакцинации матерей. Vet Therapeut 2006;7:295–304.
-
Givens M, Marley M, Jones C и др. Защита от абортов и инфицирования плода после контакта с вирусом вирусной диареи крупного рогатого скота и герпесвирусом крупного рогатого скота 1 во время стельности у телок мясных пород, получивших две дозы поливалентной живой модифицированной вирусной вакцины до случки. J Am Vet Med Assoc 2012;241:484–495.
-
Grooms D, Bolin S, Coe P, Borges R, Coutu C. Защита плода при постоянном контакте с вирусом вирусной диареи крупного рогатого скота после введения коровам вакцины, содержащей инактивированный компонент вируса вирусной диареи крупного рогатого скота. Am J Vet Res 2007;68:1417–1422.
-
Leyh R, Fulton R, Stegner J и др. Защита плода у телок, вакцинированных живой модифицированной вирусной вакциной, содержащей вирус вирусной диареи крупного рогатого скота подтипов 1a и 2a, и контактировавших во время стельности с животными, персистентно инфицированными вирусом вирусной диареи крупного рогатого скота подтипа 1b. Am J Vet Res 2011;72:367–375.
Инфекционные агенты: Эпизоотический аборт (Предгорный аборт)
Jeffrey L. Stott, Myra T. Blanchard и Mark L. Anderson
Школа ветеринарной медицины Калифорнийского университета, Дейвис, Калифорния, США
Вступление
Эпизоотический аборт крупного рогатого скота (ЭА), обычно называемый «предгорным абортом», впервые был признан в начале 1950-х годов в Калифорнии. Для ЭА характерны аборты на позднем сроке или рождение слабых телят от маток, которые паслись в предгорных районах Калифорнии, Невады и южного Орегона1 в течение первого и второго триместров беременности. Заболевание было и остается основной причиной абортов у мясного скота в штате Калифорния; статистика по штатам Орегона и Невада отсутствует.1–4
Применение методов молекулярной биологии к аутопсийным тканям больного плода в конечном итоге идентифицировало агент в 2005 году как дельта-протеобактерию. Последовательности 16S рРНК, полученные из патогена, установили 89,4% гомологию с Polyangium cellulosum, представителем отряда Myxococcales.6 Единственным другим патогеном млекопитающих в этом классе прокариот является Lawsonia intracellularis - дельта-протеобактерия, в основном связанная с энтеритом у свиней. Бактериальному агенту ЭА (баЭА) присвоят род и вид после завершения дальнейших исследований его характеристик.
Диагностика
Этиологический агент
Многочисленные поиски по выявлению этиологического агента ЭА охватывают по меньшей мере 50 лет. Эти усилия привели к выявлению ряда микроорганизмов-кандидатов на роль возбудителя заболевания, включая хламидиоз, неспецифический вирус (частицы типа С), Borrelia coriaceae и неспецифическую спирохету.5 Разработка в 2000 г. воспроизводимого метода передачи экспериментального заболевания облегчила усилия по выявлению этиологического агента. Инокуляция наивных стельных телок (срок стельности ~ 100 дней) криоконсервированными гомогенатами тимуса плода, полученными из отобранных ЭА-плодов, обеспечивала надежный механизм предсказуемой передачи возбудителя развивающемуся плоду с сопутствующим развитием классического ЭА. Исследования чувствительности к антибиотикам проводились с использованием экспериментов по передаче заболевания стельным телкам; агрессивное лечение пенициллином и/или тетрациклином во время заражения телки предотвращает последующее развитие заболевания у плода, предоставляя убедительные доказательства того, что этиологическим агентом был прокариот.5
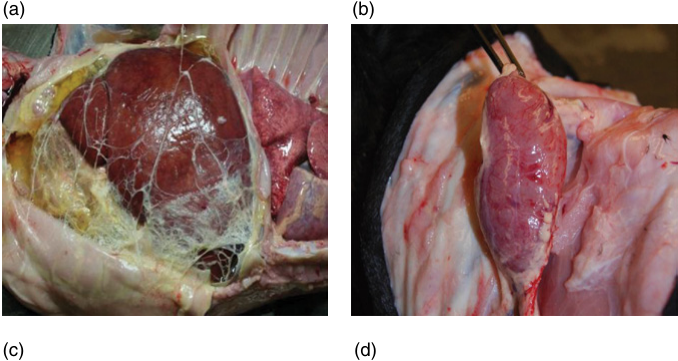
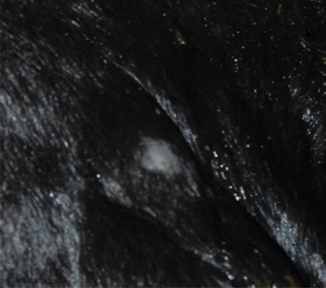
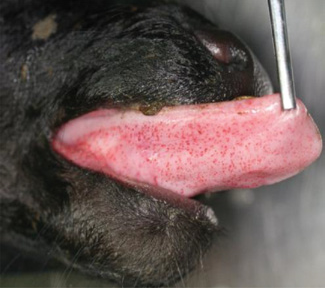
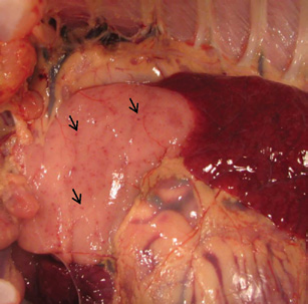
Исторически ЭА диагностировали по комбинации данных, включающих уникальные патологии плода, повышенный уровень иммуноглобулина в сыворотке плода и анамнезу маток, пасущихся в областях, которые считались эндемичными для заболевания во время беременности.2,3 Макро- и микроскопическая патология, связанная с ЭА, обычно хорошо выражена. Абортированные плоды, как правило, находятся в отличном состоянии (не аутолизированы), но имеют множество грубых аномалий, которые могут включать обширный асцит с избыточным количеством фибрина (рис. 61.1а), приводящий к вздутию живота, разбуханию печени, увеличению селезенки и лимфатических узлов (рис. 61.1b)), поражениям кожи (рис. 61.1c) и петехиальным кровоизлияниям на слизистых оболочках (полость рта, язык и веки) (рис. 61.1d) и в тимусе (рис. 61.2a). Микроскопически поражения широко распространены и имеют сосудистую ориентацию, характеризующуюся инфильтрацией лимфоцитами и мононуклеарными фагоцитами.2,3 Очаговые некротические поражения могут присутствовать в организованных лимфоидных тканях, а в тимусе возникают патогномоничные (свойственные данной болезни) поражения, характеризующиеся истощением корковых тимоцитов и инфильтрацией макрофагами3 (рис. 61.2b).
(a) (b)
(c) (d)

(a) (b)
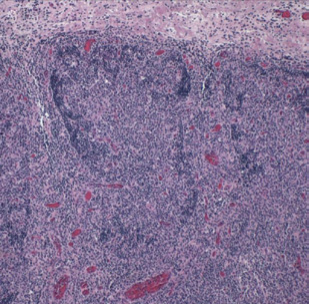
Микробиологическая диагностика ЭА остается затруднительной из-за невозможности культивирования возбудителя. Хотя ограниченная кратковременная репликация баЭА наблюдалась в первичных культурах макрофагов, полученных из аутопсийных лимфоидных тканей плода, самостоятельное размножение бактерии как в первичных, так и в устойчивых клеточных линиях было невозможно; все попытки культивировать баЭА на синтетических носителях также потерпели неудачу.5 Тогда были разработаны анализы полимеразной цепной реакции (ПЦР), как традиционные, так и на основе зондов типа TaqMan, с целью выявления бактериального рибосомального гена 16S.6–8
Оба анализа могут быть использованы для выявления присутствия баЭА в аутопсийных тканях инфицированных плодов, имеющих классическую патологию ЭА. TaqMan является предпочтительным анализом для выявлении низких уровней бактерий в аутопсийных тканях, полученных от предположительно зараженных плодов, таких, как плоды с сомнительной или неклассической патологией ЭА и слабых телят, как подсосных, так и нет. Анализ TaqMan также предпочтителен для выявления баЭА в переносчике инфекции, поскольку только случайный зараженный клещ будет иметь достаточные уровни бактерий, определяемые стандартной ПЦР.7
