
(a)
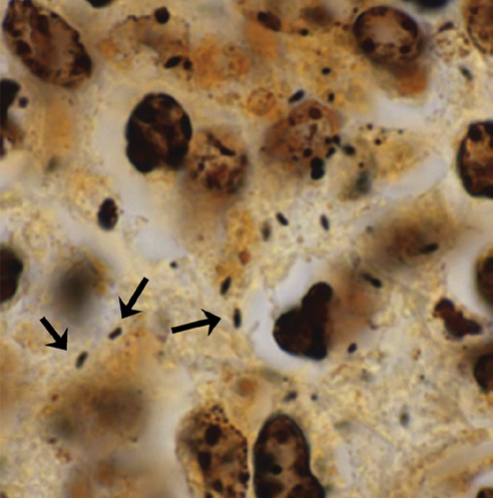
(b)
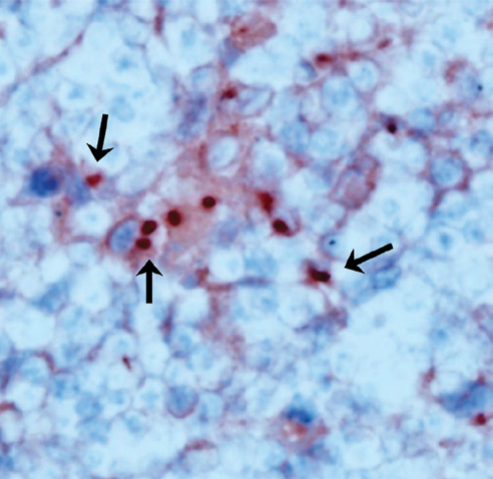
Обычные бактериальные гистологические способы окрашивания не выявляют баЭА в тканях плода, поэтому для его микроскопической визуализации в срезах тканей некропсии, фиксированных формалином, использовали модифицированную технику окрашивания серебром по Штейнеру, примененную к отдаленно родственной дельтапротеобактерии Lawsonia intracellularis. Окрашивание по Штейнеру и иммуногистохимия, применяемые к тонким срезам тканей некропсии, фиксированных формалином (рис. 61.3а, б), и иммунофлюоресцентный анализ, применяемый к отпечаткам мазков и/или гомогенатам свежих тканей, являются современными предпочтительными методами микроскопической диагностики ЭА.9,10
Серологический анализ на основе флуоресцирующих антител в настоящее время проходит валидацию (экспериментальное подтверждение эффективности) . Данный анализ представляется имеющим хорошую специфичность и чувствительность, и должен оказаться полезным диагностическим методом, когда большая часть баЭА устранена иммунной системой плода. Однако, интерпретация результатов серологического анализа будет затруднена у подсосных телят из-за присутствия материнских антител.
Патогенез
По-видимому, баЭA получает доступ к развивающемуся плоду через плаценту от зараженной матери. Инфицированная через укус клеща или посредством экспериментальной прививки стельная корова не имеет явных клинических признаков. Реакции на экспериментальные укусы клещей, зарегистрированные в различных источниках, были, скорее всего, реакцией на микробную контаминацию и/или слюну клеща. В развитии плода есть «окно», когда он подвержен инфекции, которая в конечном итоге приведет к заболеванию. Это "окно" точно не установлено, но обычно считается, что восприимчивость возникает на гестационном сроке 60–140 дней. Восприимчивость на более ранних сроках стельности (<60 дней) не известна. Хотя патоген, повидимому, не влияет на зачатие, изучается возможность того, что он может вызвать раннюю эмбриональную гибель у небольшого процента инфицированных животных. Заражение плода - это медленный процесс с развитием явных поражений, которые не проявляются в течение 2–3 месяцев.3 Бактерии, по-видимому, реплицируются внутриклеточно в гистиоцитах, что определяется иммуногистохимией (рис. 61.2); при краткосрочном культивировании макрофагов, полученных из тканей аутопсии плода репликация происходит чрезвычайно медленно (~1 день). Внутриклеточный характер инфекции, сосудистая ориентация поражений по всему плоду, а также медленное и хроническое развитие заболевания соответствует гипотезе о том, что поражения являются иммунологически опосредованными. Медленный рост бактерий, несомненно, ответственен за медленное распространение по всему телу и развитие поражений, совпадающее с развитием иммунологического созревания иммунной системы плода. Суягные овцы, по-видимому, не подвержены предгорному аборту; неопубликованные исследования, в которых беременные овцы были инфицированы в первом триместре, привели к рождению здоровых ягнят. Эти последние исследования соответствуют гипотезе о том, что бактерии размножаются и распространяются медленно, а у овец период беременности слишком короток для развития иммунологически опосредованных поражений и абортов. Чернохвостый длинноухий олень (Odocoileus hemionus) служит основным переносчиком клеща, но нет никаких свидетельств того, что ЭА встречается у этого вида. Продолжительность беременности у них является промежуточной (6–7 месяцев) между овцами и крупным рогатым скотом и может быть слишком короткой для развития болезни. С другой стороны регулярное воздействие бактерий на организм через укусы клещей может привести к выработке иммунитета, и в тех случаях, когда происходят аборты, плоды быстро подбирают падальщики, не оставляя никаких следов. Многочисленные попытки вызвать заболевание у иммунокомпетентных лабораторных животных, таких как мыши и кролики, потерпели неудачу.
Однако, мыши с тяжелым комбинированным иммунодефицитным заболеванием (SCID) подвержены инфицированию баЭА. У мышей с C3H-scid появляются признаки истощения через 7–8 недель после заражения, а еще через 2–3 недели им требуется эвтаназия, как неизлечимо больным.10 Единственным очевидным грубым поражением является увеличенная селезенка, которая содержит большое количество бактерий. Криоконсервированные баЭА-инфицированные клетки селезенки мыши с SCID являются отличным источником бактерий для предсказуемой передачи инфекции беременным телкам.
В отличие от бактерий, полученных из плода крс, выращенные бактерии не опсонизированы (не подвергались опсонизации антителами) и, по-видимому, обладают превосходной жизнеспособностью. Отсутствие ЭАподобных поражений у мышей с иммунодефицитом подтверждает указанную выше гипотезу о том, что поражения у плода крс иммунологически опосредованы.10
Передача инфекции
Наблюдения того, что ареал распространения клеща Ornithodoros coriaceus накладывается на территориальное распределение случаев предгорного аборта подгоняли ученых установить его в качестве потенциального биологического переносчика.4,7,8 Этот необычный клещ с мягкими покровами (обычно называемый клещом Паджарелло) несет в себе красочное прошлое, поскольку коренные американцы в Калифорнии опасались его укуса как укуса гремучей змеи. Они полагали, что второй или третий укус клеща приведет к смерти.
Предполагается, что сильная боль и отек придатков, которые иногда возникают после последовательных укусов клещей Паджарелло, являются экстремальной аллергической реакцией на слюну клеща и/или содержащиеся в ней микробы. Был проведен необычный и классический эксперимент, в котором наивные нетели были разделены на две группы в области, считающейся эндемичной для этой болезни. Одна половина телок содержалась в домиках на деревянных сваях, основания свай были плотно обернуты металлом, чтобы помешать потенциальному подъему ползающих насекомых, а другая половина содержалась на земле. Все живущие в домиках тёлки давали здоровых телят, в то время как у "наземных" животных происходил предгорный аборт. Впоследствии были проведены исследования, в которых пойманные в дикой среде клещи были экспериментально подсажены наивным нетелям для дополнительной демонстрации передачи заболевания.4,5 Клещ O. coriaceus был собран в Мексике, Калифорнии, Неваде и Орегоне (рис. 61.4), но предгорный аборт был описан только в вышеупомянутых трех штатах США.7,8,11 Особенность практики скотоводства в Мексике вполне может быть причиной отсутствия диагностики предгорного аборта в этой стране; в стадах крс с вольным содержанием абортированные плоды могут быть быстро уничтожены ( подобраны хищниками или растоптаны?) , что делает диагностику маловероятной.
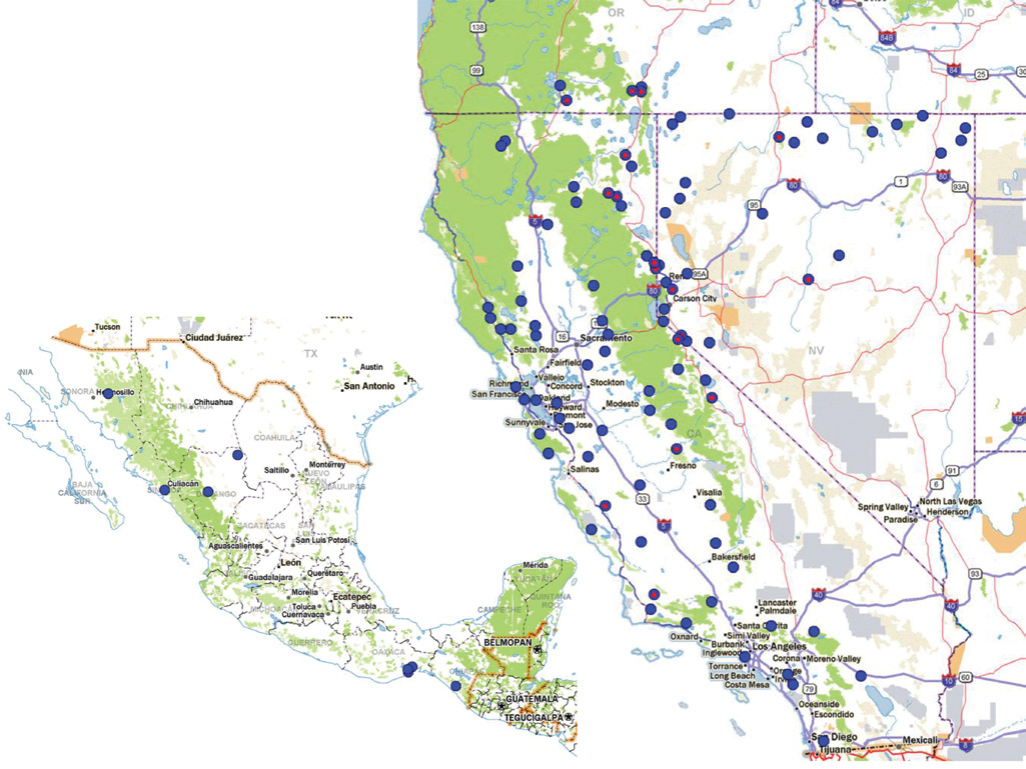
Недавно опубликованные исследования были направлены на лучшее понимание взаимосвязи между переносчиком и патогеном посредством использования пойманных клещей и ПЦР/TaqMan диагностики для выявления присутствия баЭА. Ornithodoros coriaceus можно легко собрать в полевых условиях, разместив ловушки с сухим льдом (сухой лед помещается в ловушку, где он выделяет углекислый газ и привлекает клещей) под кустарниками и деревьями, под которыми ранее лежали дикие животные и/или домашний скот. Эти исследования подтвердили широкое распространение O. coriaceus в предгорных районах южного Орегона, центральной и западной Невады и Калифорнии.7,8 Исследование ДНК, выделенной из клещей, показало очень изменчивый уровень заражения баЭА. Стандартный ПЦР редко выдавал положительный результат.8 Данные, полученные с использованием более чувствительного анализа TaqMan, позволяют предположить, что уровень инфицирования, как правило, составляет менее 20%, но может превышать 50% (примеры высокого уровня инфицирования могут быть математическим артефактом из-за малой выборки клещей). Авторы предполагают, что те клещи, которые дают положительный результат по TaqMan, но не по стандартной ПЦР, могут быть неспособны к биологической передаче бактерий крупному рогатому скоту.8 Это подтверждается исследованиями, в которых экспериментальное подсаживание по сотни клещей на каждую телку привело к заражению примерно 50% из них.4,5 Попытки лучше охарактеризовать клеща как переносчика баЭА привели к выводу, что бактерия была преимущественно локализована в слюнной железе клещей, собранных в полевых условиях.8 Источник этой бактерии в настоящее время неизвестен; среди возможных вариантов рассматривают почву или присутствие резервуара инфекции среди млекопитающих/птиц. Питание кровью требуется клещам перед каждой линькой (прогрессирующие стадии роста приводят к увеличению размера клеща) и созреванием у самцов или самок. Авторы предполагают, что, если клещи инфицируются во время кормления, то многократные приемы крови, необходимые в период созревания, увеличат частоту заражения более крупных (более зрелых) клещей. Однако, исследования показывают небольшую разницу в уровне инфицирования у нимф (личинок) , самцов и самок и, следовательно, противоречат концепции инфицирования через потребление крови.8
Контроль заболевания
Контроль предгорного аборта был в значительной степени ограничен практикой управления стадом. Один из подходов состоит в том, чтобы минимизировать воздействие зараженной клещами среды обитания стельных наивных коров в течение гестационного окна, когда плод восприимчив к инфекции. Другой подход состоит в том, чтобы преднамеренно подвергать наивный скот укусам клеща до осеменения, чтобы сформировать иммунитет; прежде, до современной практики более раннего осеменения молодых телок (<2 лет) ЭА не был так распространен (т.е. животные успевали сформировать иммунитет до стельности) .
Такая практика иногда может незначительно уменьшить потери; однако, сокращение случаев предгорного аборта зачастую компенсируется за счет неэффективного использования пастбищных угодий и увеличения затрат, связанных с изменением стратегий воспроизводства и выпаса скота. Экспериментальная вакцина в настоящее время проходит полевые испытания с обнадеживающими результатами. Вакцина представляет собой криоконсервированные живые вирулентные бактерии, полученные из клеток селезенки мышей, инфицированных баЭА; вакцина не безопасна для стельных животных. Продолжительность естественного и/или вакцинного иммунитета после 1 года неизвестна. Неофициальные данные свидетельствуют о том, что естественный иммунитет может начать ослабевать через 2–3 года.
Ссылки
-
Howarth J, Moulton J, Frazier L. Эпизоотический аборт крупного рогатого скота, характеризующийся поражением печени плода. J Am Vet Med Assoc 1956; 128:441– 449.
-
Kennedy P, Olander H, Howarth J. Патология эпизоотического аборта крупного рогатого скота. Cornell Vet 1960;50:417–429.
-
Kennedy P, Casaro A, Kimsey P, BonDurant R, Bushnell R, Mitchell G. Эпизоотический аборт крупного рогатого скота: формирование поражений у плода. Am J Vet Res 1983;44:1040–1048.
-
Schmidtmann E, Bushnell R, Loomis E, Oliver M, Theis J. Экспериментальные и эпизоотологические данные о связи клеща Ornithodoros coriaceus Koch с воздействием возбудителя эпизоотического аборта на крупный рогатый скот в Калифорнии. J Med Entomol 1976; 13:292–299.
-
Stott J, Blanchard M, Anderson M и др. Экспериментальная передача эпизоотического аборта крупного рогатого скота (так называемого «аборта предгорий»). Vet Microbiol 2002;88:161–173.
-
King D, Chen C, Blanchard M и др. Молекулярная идентификация новой дельтапротеобактерии как возбудителя эпизоотического аборта крупного рогатого скота (так называемого «аборта предгорий»). J Clin Microbiol 2005;43: 604–609.
-
Teglas M, Drazenovich N., Stott J, Foley J. Географическое распространение предполагаемого возбудителя эпизоотического аборта крупного рогатого скота в клеще-переносчике Ornithodoros coriaceus . Vet Parasitol 2006;140: 327–333.
-
Chen C, King D, Blanchard M и др. Идентификация возбудителя эпизоотического аборта крупного рогатого скота в собранных в природе клещах вида Ornithodoros coriaceus Koch. Vet Microbiol 2007;120:320–327.
-
Anderson M, Kennedy P, Blanchard M и др. Гистохимические и иммуногистохимические данные о бактерии, связанной с поражениями при эпизоотическом аборте крупного рогатого скота. J Vet Diagn Invest 2006; 18:76–80.
-
Blanchard M, Chen C, Anderson M, Hall M, Barthold S, Stott J. Последовательные пассажи возбудителя эпизоотического аборта крупного рогатого скота на иммунодефицитных мышах. Vet Microbiol 2010;144:177–182.
-
Loomis E, Schmidtmann E, Oliver M. Краткий обзор распространения Ornithodoros coriaceus Koch в Калифорнии (Aracina: Argasidae). California Vector News 1974;21:57–62.
