
Методы культивирования грибов и молекулярная идентификация
Из-за повсеместного распространения грибов в естественной среде результаты культивирования следует интерпретировать с осторожностью. Контаминация образцов от абортированных плодов является частым явлением. По этой причине обычно ищут образцы легкого плода и жидкости или содержимого сычуга. Морфология и характеристики грибов, выращенных в культуре, должны соответствовать результатам прямой микроскопии и гистопатологии. Распространенной средой для культивирования и выделения грибов является декстрозный агар Сабуро (SDA) с добавлением и без добавления антибиотиков. Антибиотики, например, хлорамфеникол и циклогексимид, обычно включают в среду, такую как микобиотический агар (Difco), для подавления роста бактерий и сапрофитных грибов соответственно. При выборе сред необходимо соблюдать осторожность, так как циклогексимид ингибирует зигомицеты. Он также может частично ингибировать некоторые виды Aspergillus. и род Candida, участвующих в микотических абортах. По этой причине для культивирования грибковых агентов из микотических абортов рекомендуется SDA только с хлорамфениколом. Кроме того, зигомицеты могут с трудом культивироваться, так как они не остаются жизнеспособными в ткани в течение длительных периодов времени. Неспособность выращивать эти грибы при прямом микроскопическом наблюдении или гистопатологии может быть связана с токсическим эффектом аутолиза плаценты или плода.11 Агаровые чашки инкубируют при 25– 30 °C в течение нескольких недель до морфологической идентификации.
После изоляции и достижении полного роста классические грибки идентифицируют на основе колониальной и микроскопической морфологии (рис. 63.2). Определение этими методами видов нитчатых грибов может быть проблематичным, и могут потребоваться современные молекулярные методы.
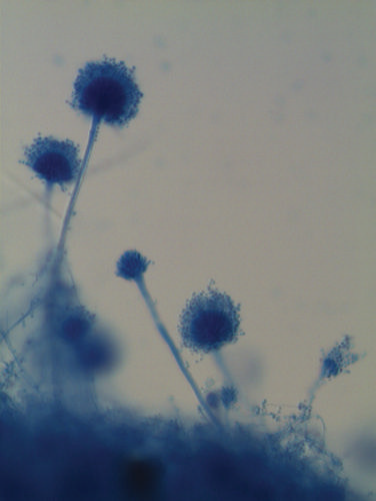
Дрожжи обычно идентифицируются на основе ассимиляции углеводов и биохимических исследований с использованием коммерчески доступных тест-систем.19
Молекулярная детекция специфических генетических последовательностей, полученных методами полимеразной цепной реакции (ПЦР), все чаще используется в микологических референтных (экспертных) лабораториях для идентификации грибов. Эти методы могут применяться к свежим тканям, фиксированным тканям, предназначенным для гистопатологии, или культуральным изолятам.13 Идентификация видов грибов с использованием уникальных генетических последовательностей может значительно сэкономить время и обеспечить беспрецедентную специфичность (определение истинно отрицательных образцов) . Тем не менее, из-за повсеместного распространения грибков в окружающей среде и чрезвычайной чувствительности молекулярных методов, результаты должны анализироваться в сочетании с результатами других тестов для постановки правильного окончательного диагноза.
Профилактика и контроль
Поскольку микотические аборты происходят спорадически и провоцируются вездесущими грибками окружающей среды, которые не являются заразными, лучшим средством борьбы является профилактика. Избегание появления заплесневелого сена и фуража, а также некачественного силоса может снизить вероятность возникновения грибкового аборта. Также следует недопускать возникновение затемненной и влажной среды с высоким содержанием органических компонентов, способствующих росту грибов. Снижение грибковой нагрузки на окружающую среду путем обеспечения адекватной вентиляции, предотвращения содержания животных в закрытых помещениях и снижения их плотности может способствовать предотвращению грибковых абортов. Терапия должна быть направлена на предотвращение поражения матки из-за задержания плаценты и связанных с ним вторичных инфекций.
Ссылки
-
James TY, Kauff F, Schoch CL и др. Реконструкция ранней эволюции грибов на основе филогении по шести генам. Nature 2006; 443:818–822.
-
Hibbett DS, Binder M, Bischoff JF и др. Филогенетическая классификация грибов на уровне высших таксонов. Mycol Res 2007;111:509–547.
-
Mycology Online, Школа молекулярных и биомедицинских наук, Аделаидский университет, Австралия. Доступно по адресу http://www. mycology.adelaide.edu.au/, дата обращения: декабрь 2012 г.
-
Guarro J, Gene J, Stchigel A. Развитие таксономии грибов. Clin Micobiol Rev 1999;12:454–500.
-
Kirkbride C. Возбудители, выявленные в ходе 10-летнего исследования абортов и мертворождений у крупного рогатого скота. J Vet Diagn Invest 1992;4: 175–180.
-
Williams B, Shreeve B, Hergert C, Swire P. Микотические аборты у крупного рогатого скота: эпидемиологические аспекты. Vet Rec 1977;100:382–385.
-
Knudtson WU, Kirkbride CA. Грибы, связанные с абортами у крупного рогатого скота в штатах северных равнин США. J Vet Diagn Invest 1992;4:181–185.
-
Kennedy P, Miller R. Женская половая система. В кн.: Jubb K, Kennedy P, Palmer N (ред.) Патология домашних животных , 4-е изд., т. 3. Сан-Диего, Калифорния: Academic Press, 1993, с. 420–421.
-
Hill M, Whiteman C, Benjamin M и др. Патогенез экспериментального микотического плацентита у крупного рогатого скота, вызванного Aspergillus fumigatus . Vet Pathol 1971;8:190–193.
-
Glover A, Rech R, Howerth E. Патология на практике. Микотический аборт. J Am Vet Med Assoc 2011;239:319–321.
-
Carter M, Cordes D, Di Menna M, Hunter R. Грибы, выделенные при микотических абортах и пневмонии у крупного рогатого скота, с особым вниманием к Mortierella wolfii. Res Vet Sci 1973;14:201–206.
-
Cordes D, Carter M, Di Menna M. Микотическая пневмония, вызванная Mortierella wolfii . II. Патология экспериментальной инфекции у крупного рогатого скота. Vet Pathol 1972;9:190–193.
-
Dongyou Liu (ред.) Молекулярное выявление патогенных для человека грибов . Бока-Ратон, Флорида: CRC Press, 2011.
-
Miller R. Обзор патогенетических механизмов абортов у крупного рогатого скота. Can Vet J 1977;18:87–95.
-
McGinnis MR. Лабораторное руководство по медицинской микологии . Нью-Йорк: Academic Press, 1980.
-
Koneman E, Roberts G. Практическая лабораторная микология . Балтимор: Williams and Wilkins, 1985.
-
Hageage G, Harrington B. Применение калькофлуора белого в клинической микологии. Lab Med 1984;15:109–112.
-
Ribes JA, Vanover-Sams CL, Baker DJ. Зигомицеты при заболеваниях человека. Clin Microbiol Rev 2000;13:236–301.
-
Chengappa M, Maddux R, Greer S, Pincus D, Geist L. Выделение и идентификация дрожжей и дрожжеподобных организмов из клинических образцов в ветеринарии. J Clin Microbiol 1984;19:427–428.
Ранние эмбриональные потери вследствие теплового стресса
Peter J. Hansen
Кафедра зоотехнии, Флоридский университет, Гейнсвилл, штат Флорида, США
Сущность проблемы
Неблагоприятные изменения в материнской среде могут нарушить развитие эмбриона и привести к его гибели. Одним из наиболее важных из этих изменений является гипертермия, которая чаще всего возникает из-за теплового стресса, а также из-за пирогенов, образующихся во время воспаления. Даже небольшое повышение температуры тела может поставить под угрозу выживание эмбриона. У лактирующих молочных коров1 коэффициент зачатия снижался на 6,9–12,8% на каждые 0,5°C повышения температуры матки выше средней температуры 38,3–38,6°C. В указанном исследовании ректальная температура была примерно на 0,2°C ниже, чем температура матки1 , и поэтому можно сделать вывод, что фертильность снижается, когда ректальная температура достигает примерно 39°C. В более раннем исследовании фертильность молочных коров также снижалась при ректальных температурах 39 °C и выше.2
Потеря эмбриона, вызванная гипертермией матери, в значительной степени вызвана прямым и непрямым воздействием повышенной температуры тела на функцию ооцитов и развитие эмбриона. Окно репродуктивного процесса, когда гипертермия может вызвать потерю эмбриона, достаточно широкое. Оно начинается за 15–19 недель до овуляции, поскольку воздействие 28-дневного теплового стресса снижает способность ооцита становиться бластоцистой на протяжении 15 недель после прекращения теплового стресса,3 и продолжается до 2-3 дней после овуляции, когда предимплантационный эмбрион становится устойчивым к повышенной температуре.4–8
В этой главе основное внимание будет уделено механизмам, посредством которых тепловой стресс ставит под угрозу яйцеклетку и эмбрион, а также последствиям для стратегий управления по улучшению фертильности во время теплового стресса. На протяжении всей главы термин «тепловой стресс» будет относиться к совокупности характеристик окружающей среды, которые снижают способность животного регулировать температуру своего тела, в то время как «тепловой шок» будет относиться к влиянию повышенной температуры на клеточные функции.
Участие ооцита в эмбриональной потери
Тепловой стресс может влиять на функцию ооцитов в течение двух определенных периодов их развития. Первый - это период роста фолликулов, когда ооцит испытывает активацию, а затем "заглушает" геном ( в половых клетках, как и впоследствии в зародыше определенные белки выборочно скручивают ДНК, предотвращая преждевременное считывание генетической информации. Например, гены с информацией о расположении частей тела у эмбриона . Т.к. гены должны "включаться" в строгой последовательности, иначе эмбрион не разовьется ) , устанавливает связь с кумулюсными клетками (группа соматических клеток, обеспечивающих питание и участвующих в созревании и оплодотворении ооцитов) и синтезирует кортикальные гранулы (органеллы под наружной оболочкой яйцеклетки, препятствующие полиспермии - см.кортикальная реакция) .9 Второй период следует за овуляцией, когда яйцеклетка подвергается ядерному и цитоплазматическому созреванию при подготовке к оплодотворению и эмбриональному развитию.
Повреждение ооцитов в течение фолликулярного роста
Повреждение ооцита во время роста фолликулов было продемонстрировано в экспериментах по оценке сезонных колебаний способности ооцитов (собранных при убое или с помощью аспирации под контролем УЗИ) к оплодотворению in vitro и развитию в бластоцисты. В этих экспериментах, в которых использовались лактирующие голштинские коровы, доля ооцитов, которые стали бластоцистами после оплодотворения in vitro (экстракорпорально)10–12 или химической активации13 , была ниже летом, чем зимой (см. Пример на рисунке 64.1). Сезонные влияния на формирование бластоцисты в значительной степени отражали снижение способности расщепленных (делящихся) эмбрионов развиваться, а не способность ооцитов к расщеплению. Одна из причин заключается в том, что тепловой стресс уменьшает накопление молекул в ооцитах, что важно для раннего эмбрионального развития. На самом деле, существуют различия в количестве транскриптов (молекул РНК, образующихся в результате транскрипции (экспрессии соответствующего гена или участка ДНК). Примерами транскриптов являются: мРНК, рРНК, тРНК, малые РНК) между эмбрионами, полученными путем in vitro-оплодотворения яйцеклеток, собранных летом и зимой.14 Также возможно, что ооциты летом чаще претерпевают аномальную хромосомную сегрегацию (процесс продольного расщепления хромосом на хроматиды (дочерние хромосомы) , так что получившиеся в итоге эмбрионы являются хромосомно аномальными. Появление хромосомных аномалий может негативно повлиять на скорость эмбрионального развития.15
