
40
a
35
30 a *
b
b
25
b
20
15
c
10
5
0
H PL RB
Зима Лето Зима Лето Зима Лето
(%)Скорость развития бластоцисты
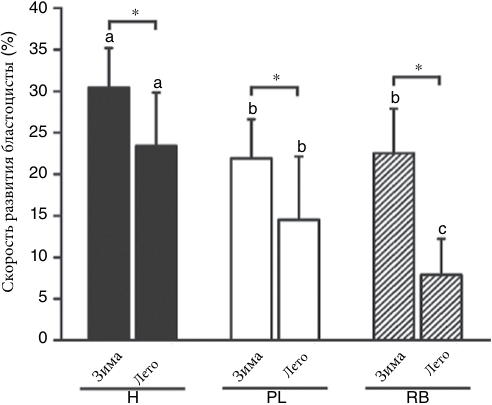
Рисунок 64.1 Влияние сезона года в Бразилии на способность ооцитов к развитию в бластоцисту у телок голштинской породы (H), у лактирующих коров на пике лактации (PL) и у лактирующих коров, классифицируемых как повторно осемененные (RB). Ооциты собирали посредством трансвагинальной аспирации и после созревания подвергали их оплодотворению in vitro. Полученные в результате эмбрионы культивировали до стадии бластоцисты. Звездочки представляют различия в типе животных между сезонами. Буквы над каждым столбцом представляют различия между типами животных в течение отдельного сезона. Данные воспроизводятся из Ferreira R, Ayres H, Chiaratti M и др.Низкая фертильность коров с повторными безрезультатными осеменениями в период летнего теплового стресса связана с низкой способностью ооцитов развиваться до стадии бластоцисты. J Dairy Sci 2011;94:2383–2392 . с разрешения.
Нормальное развитие фолликула имеет решающее значение для овуляции яйцеклетки, способной к оплодотворению и трансформации в эмбрион, способный к успешному развитию.16,17 Тепловой стресс может изменить фолликулярную динамику, замедляя рост доминирующего фолликула и увеличивая количество фолликулов меньшего размера.3,18–20 Кроме того, тепловой стресс может снизить фолликулярные концентрации эстрадиола-17β21 и инсулиноподобного фактора роста (IGF)-1,20 при одновременном повышении фолликулярных концентраций андростендиона.21 Механизм, с помощью которого тепловой стресс изменяет развитие фолликулов, недостаточно изучен. Экспериментальные исследования показали, что тепловой стресс может уменьшить секрецию лютеинизирующего гормона (ЛГ).22,23 Также может быть прямое влияние повышенной температуры тела на синтез стероидов. При культивировании кумулюсных клеток при 40,5°C выработка эстрадиола-17β снижалась осенью, но не летом или зимой.21 В том же исследовании инкубация при 40,5°С снижала стимулируемую форсколином продукцию андростендиона текальными клетками, когда клетки собирали зимой, а не когда их собирали летом или осенью. Тепловой шок при 41°С уменьшал базальный и гонадотропинстимулированный синтез андростендиона и эстрадиола-17β культивируемыми фолликулярными стенками из доминантного фолликула.24
В некоторых случаях тепловой стресс может привести к снижению концентрации циркулирующего прогестерона25 , и такое снижение, по-видимому, может способствовать снижению компетентности ооцитов (способности к росту и норм.функции) . Эта идея основана на наблюдении, что фертильность после овуляции доминантного фолликула первой волны, когда концентрации циркулирующего прогестерона, ниже, чем фертильность после овуляции доминантного фолликула второй волны, когда концентрации прогестерона высоки.26,27
Кроме того, введение прогестерона во время первой фолликулярной волны улучшило фертильность.27
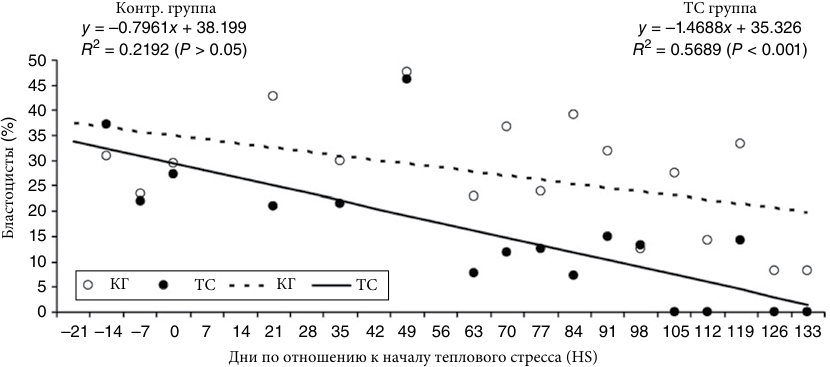
После летнего теплового стресса компетентность ооцитов к фертильности28,29 и к химически активированному развитию постепенно восстанавливается.30 Эти наблюдения говорят о том, что тепловой стресс может влиять на развитие фолликула в начале 16недельного периода, в течение которого первичный фолликул достигает доминирования.31 Действительно, есть экспериментальные данные о замедленном воздействии теплового стресса на функцию фолликула и ооцита. В одном исследовании32 воздействие теплового стресса на лактирующих голштинов повлияло на выработку фолликулярных стероидов через 20–26 дней. Эксперимент на коровах породы Гир (Bos indicus) показал, что эффект от перенесенного теплового стресса может продолжаться до 133 дней после его начала (то есть, в течение 105 дней после окончания теплового стресса).3 Коровы подвергались тепловому стрессу в течение 28 дней, а ооциты аспирировались и подвергались созреванию и оплодотворению in vitro с недельными интервалами в течение до 133 дней после начала теплового стресса. Тепловой стресс не влиял на динамику фолликулов в течение 28-дневного периода теплового стресса, но увеличивал диаметр первого и второго по величине фолликулов, а также количество фолликулов более 9 мм с 28 по 49 день после начала теплового стресса. Более того, процент ооцитов, которые стали бластоцистой, был снижен тепловым стрессом даже в конце эксперимента через 133 дня после начала теплового стресса (рис. 64.2).
Созревание ооцитов
Ооцит остается подверженным разрушительному воздействию теплового стресса в процессе ядерного и цитоплазматического созревания, совпадающего с овуляцией. Тепловой стресс у суперовулированных телок в течение 10-часового периода, начинающегося в начале эструса и до осеменения через 15–20 часов после начала эструса, приводил к сокращению доли выращенных на 7-й день после эструса эмбрионов, которые были классифицированы как нормальные.33 Тепловой стресс не влиял на уровень оплодотворяемости, таким образом поврежденные ооциты давали начало эмбрионам с ограниченной способностью к развитию. Некоторые эффекты теплового стресса на функцию ооцитов во время их созревания могут быть вызваны изменениями в секреции гормонов, потому что тепловой стресс снижает величину преовуляторного всплеска ЛГ и эстрадиола-17β.23,34 Кроме того, воздействие повышенной температуры может вызвать нарушения в созревании ооцитов. В результате культивирования ооцитов при повышенных температурах во время созревания уменьшалась доля ооцитов, завершивших ядерное созревание, увеличивалась доля с аномальным формированием веретена деления, распределением кортикальных гранул, деполяризованными митохондриями и апоптотическими пронуклеусами и уменьшалась доля ооцитов, которые расщеплялись и становились бластоцистой после оплодотворения.35-40 Апоптоз был замешан в нарушении функции ооцитов в период созревания. Ингибирование апоптоза с помощью ингибитора каспазы36 , сфингозин-1-фосфата41 или ингибитора синтеза церамида42 уменьшило влияние теплового шока на компетентность ооцита к развитию. Есть также признаки того, что последствия теплового шока включают ускорение созревания и старение яйцеклетки. Выдерживание ооцитов при 41°C в течение первых 12 часов созревания ускорило как ядерное, так и цитоплазматическое созревание.43 Кроме того, можно избежать пагубного воздействия теплового шока на развитие, если ооциты оплодотворяют на 19 час созревания вместо 24 часов43 или используют химическую активацию в качестве триггера (запуска) развития.44
Контр. группа ТС группа
y = –0.7961 x + 38.199 y = –1.4688 x + 35.326
R 2 = 0.2192 ( P > 0.05) R 2 = 0.5689 ( P < 0.001)
50
45
40
35
30
25
20
15
10
5 КГ ТС КГ ТС
0
–21 –14 –7 0 7 14 21 28 35 42 49 56 63 70 77 84 91 98 105 112 119 126 133
Дни по отношению к началу теплового стресса (HS)
(%)Бластоцисты
32/32
100
36/41 34/38
80
60 21/38
40
20
0
Зима Лето Зима Лето
Лактирующие коровы Нелактирующ.коровыТелки
(%)Уровень оплодотворения
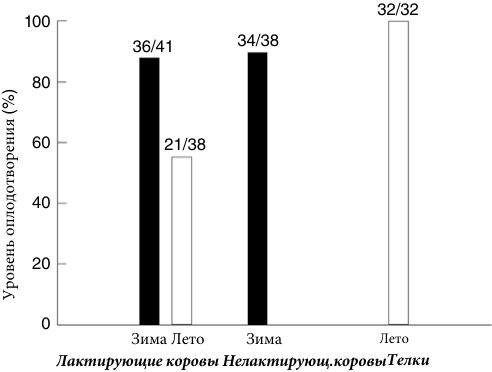
Рисунок 64.3 Сезонные изменения в уровне оплодотворяемости у голштинов в Висконсине. Репродуктивный тракт осемененных самок был промыт через 5 дней после овуляции для извлечения яйцеклеток и эмбрионов. Коэффициент оплодотворения основывался на количестве извлеченных эмбрионов (двухклеточных или более), деленном на количество извлеченных ооцитов и эмбрионов (см. Цифры над каждым столбцом). Для лактирующих коров летом наблюдалось снижение уровня оплодотворения по сравнению с зимним периодом. Для нелактирующих животных, однако, не было различий в % оплодотворения между сезонами (сравните нелактирующих коров зимой с телками летом). Данные взяты из Sartori R, Sartor-Bergfelt R, Mertens S, Guenther J, Parrish J, Wiltbank M. Fertilization and early embryonic development in heifers and lactating cows in summer and lactating and dry cows in winter. J Dairy Sci 2002;85:2803–2812.
Провал в оплодотворяемости: яйцеклетка в сравнении со спермой
Как показано на рисунке 64.3, существуют различия в уровне оплодотворяемости среди лактирующих коров летом и зимой.45
Снижение процента оплодотворения, вероятно, в значительной степени вызвано повреждением яйцеклетки. Другая важная для оплодотворения клетка - сперматозоид, гораздо более устойчива к повышенной температуре. Тепловой стресс может нарушить образование сперматозоидов в яичке46 , но функция сперматозоидов, депонированных в женском репродуктивном тракте, вероятно, не нарушается гипертермией матери. Тепловой шок не снижал оплодотворяющую способность спермы in vitro или последующее развитие эмбрионов до стадии бластоцисты.47,48 Имеются сообщения о том, что у кроликов воздействие повышенной температуры на сперму in vitro49 или in vivo50 может привести к отклонениям в развитии, что приведет к сокращению числа имплантированных эмбрионов, несмотря на отсутствие снижения оплодотворяемости в целом. Необходима дополнительная работа, чтобы определить, может ли повреждение сперматозоидов тепловым шоком привести к нарушениям развития у плода крупного рогатого скота на более позднем этапе развития.
Повреждение предимплантационного эмбриона
В начале формирования предимплантационный эмбрион очень чувствителен к повышенной температуре. Тепловой шок до 40°C в течение 12 часов может снизить развитие эмбрионов на стадии от зиготы до стадии бластоцисты.51 Тепловой шок также может снизить потенциал развития эмбрионов на 2-клеточной стадии развития,7,52, но после этого эмбрион становится более устойчивым к тепловому шоку. Развитие 4-8клеточных эмбрионов может быть нарушено тепловым шоком, но в меньшей степени, чем у 2-клеточных эмбрионов.52 На стадии развития морулы эмбрион достаточно устойчив к воздействию теплового шока.7,8,51,52 Такое же явление наблюдается in vivo. Воздействие теплового стресса на суперовулировавших коров снижает выход бластоцист на 8-й день после эструса, если воздействие происходит на 1-й день после эструса, но выход не снижается, если воздействие происходит на 3, 5 или 7-й день после эструса.4
Механизм эмбриональной смертности, вызванной тепловым стрессом
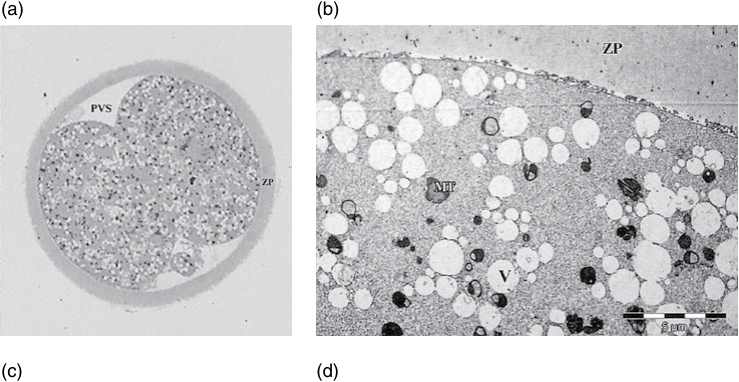
Двухклеточный эмбрион, подвергшийся воздействию температуры 41°C, испытывает изменения в ультраструктуре, характеризующиеся набуханием митохондрий и движением органелл по направлению к центру бластомера (клетки эмбриона на этапе дробления)53 (рис. 64.4).
(a) (b)
(c) (d)
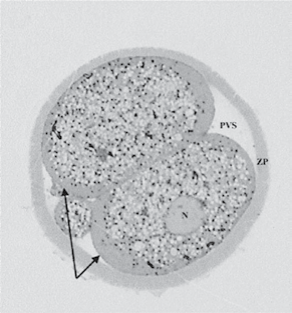
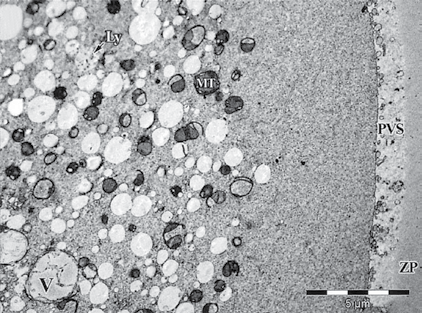
Движение органелл вызвано нарушением цитоскелета.54 Ранний эмбрион, подвергшийся тепловому шоку, также испытывает снижение синтеза белка.5
Некоторые повреждения, вызванные тепловым шоком, могут быть результатом увеличения выработки свободных радикалов, что наблюдалось у эмбрионов в 0 и 2 дни после осеменения.55 Кроме того, эффекты теплового шока были сильнее у 2-клеточных эмбрионов, культивированных в атмосфере с высоким содержанием кислорода, что могло способствовать окислительному стрессу.56 В других исследованиях напротив эффекты теплового шока не зависели от напряженности кислорода (парциальное давление кислорода в плазме) .51, 57 Точно так же антиоксиданты антоцианин58 и дитиотреитол56 , как сообщалось, смягчают действия теплового шока, тогда как другие антиоксиданты, включая витамин Е,59 глутатион,60 и эфир глутатиона60 , не обладают эмбриопротекторными свойствами.
Воздействие теплового стресса на выживание эмбриона in vivo может включать воздействие на репродуктивный тракт, а также непосредственно на эмбрион. Тепловой стресс может уменьшить величину преовуляторного всплеска эстрадиола-17β23 , и это предположительно может изменить функцию яйцеводов или эндометрия. Прямое влияние теплового шока на функцию яйцеводов или эндометрия не изучалось при температурах, характерных для тех, которые испытывали коровы, подвергшиеся тепловой нагрузке. Однако вполне вероятно, что эти ткани устойчивы к тепловому шоку, потому что даже температура до 43°C не оказала существенного влияния на синтез белка эндометрием или яйцеводом.61
Эволюционно приобретенная термотолерантность
Существует несколько гипотез, объясняющих процесс, посредством которого эмбрион переходит из состояния сильной восприимчивости к тепловому шоку на стадии от 1 клетки к 2 клеткам, к состоянию, когда он приобрел устойчивость к тепловому шоку на 16-клеточной стадии. Одна из гипотез заключается в том, что ранний эмбрион очень восприимчив к тепловому шоку, потому что процессы, необходимые для активации эмбрионального генома, легко нарушаются тепловым шоком. Если это так, то развитие эмбрионов, подвергшихся тепловому шоку на 2- или 4- клеточной стадии, должно блокироваться между 8-клеточной и 16клеточной стадиями; активация эмбрионального генома необходима для развития после этой стадии.62 Такой преференциальный (предпочтительный) блок при переходе от 8 клеток к 16 клеткам наблюдался в одном эксперименте с 2-клеточными эмбрионами57 , но не наблюдался в другом, где эмбрионы подвергались тепловому шоку на стадии 1 клетки.51
Другая гипотеза состоит в том, что приобретение способности к транскрипции после стадии от 8 до 16 клеток позволяет эмбриону задействовать более широкий диапазон стрессовых реакций для стабилизации клеточной функции во время теплового шока. Однако, на стабильной стадии количество мРНК для некоторых важных стрессовых белков выше у 1-клеточного или 2-клеточного эмбриона, чем у морулы51,62 (рис. 64.5), возможно, потому, что транскрипты наследуются от ооцита.
