
Стадия P <0.02
2.0 Стадия P <0.001
Температура, P <0.02 Стадия P <0.05
стадия x
температура, P =0.10
1.5
1.0
0.5
0.0
День 0 День 5 День 0 День 5 День 0 День 5 День 0 День 5
HSPA1A HSP90AA1 SOD1 CAT
Кратность изменения показателя
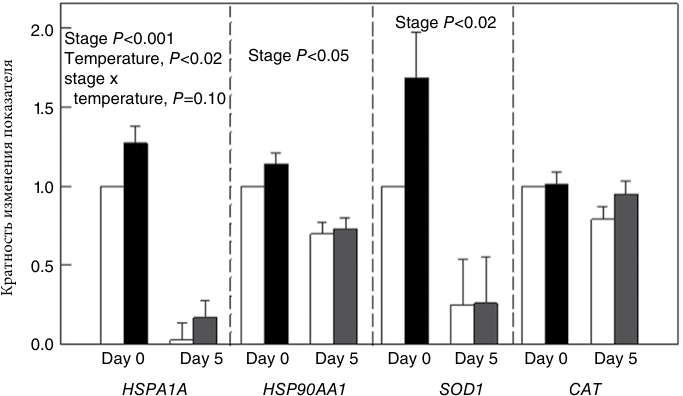
Рисунок 64.5 Различия в устойчивых уровнях мРНК для HSPA1A (белок теплового шока 70), HSP90AA1 (белок теплового шока 90), SOD1 (супероксиддисмутаза) и CAT (каталаза) между эмбрионами, собранными в стадии зиготы (день 0) или морулы (день 5) и культивированными в течение 24 часов при 38,5°C (белые столбцы) или 40°C (черные столбцы) . Данные воспроизводятся из Sakatani M, Alvarez N, Takahashi M, Hansen P. Consequences of physiological heat shock beginning at the zygote stage on embryonic development and expression of stress response genes in cattle. J Dairy Sci 2012;95:3080–3091 с разрешения .
Тепловой шок может вызвать синтез белка теплового шока 70 уже на стадии 2 клеток.5,63 Более того, на стадии морулы транскрипционный ответ эмбриона на тепловой шок приглушен, причем только 4 из 68 генов, связанных с ответным реакцией на тепловой шок, показывают увеличение ответа на повышенную температуру.64 Таким образом, возможно, что повреждение клеточных макромолекул, вызванное тепловым шоком, который провоцирует стрессовые белковые ответы, уменьшается у эмбрионов на устойчивых стадиях развития. Одной из причин может быть изменение баланса между образованием свободных радикалов и антиоксидантной защитой. Тепловой шок вызвал увеличение продукции свободных радикалов в 0 и 2 дни, но не в дни 4 и 6.55 Кроме того, цитоплазматический антиоксидант глутатион находится на самом низком уровне на стадиях от 2 до 8 клеток.65 Одним из механизмов, защищающих эмбрионы от теплового шока, является способность к апоптозу. Проапоптотические сигналы могут активировать ответ на апоптоз только после активации эмбрионального генома; у 2-клеточных эмбрионов этот процесс ингибируется из-за устойчивости митохондрий к деполяризации66 и недоступности каспазо-активированной дезоксирибонуклеазы в межнуклеосомных областях ДНК.67 Воздействие на морулу 41°C в течение 9 часов приводит к апоптозу примерно 10–25% клеток.68,69 Предотвращение апоптоза усугубляет вредное воздействие теплового шока на развитие68,69 , вероятно, потому что апоптоз устраняет клетки, которые наиболее сильно пострадали от теплового шока.
Генетические различия эмбриональной резистентности к тепловому шоку
Определенные породы крупного рогатого скота, выведенные в жарком климате, приобрели гены, защищающие эмбрионы от повышенной температуры. На более поздних стадиях расщепления (4 или 5 день после осеменения) эмбрионы Брахмана, Нелоре и Ромосинуано более устойчивы к повышенной температуре, чем эмбрионы Ангусской, Голштинской или Джерсейской пород.8,70–73 Также обнаружена тенденция к снижению коэффициента стельности после пересадки реципиентам бластоцист Ангуса, которые ранее подвергались тепловому шоку, чего не наблюдалось после пересадки эмбрионов Нелоре, также предварительно подвергавшихся тепловому шоку.73
Факторы, ответственные за породные различия в термотолерантности, по-видимому, наследуются через ооцит. В экспериментах, в которых кроссбредные эмбрионы были получены in vitro, именно порода донора ооцитов, а не порода донора сперматозоидов определяла, проявляют ли эмбрионы повышенную термостойкость.72,74 Одна из теорий состоит в том, что гены, обеспечивающие термотолерантность, импринтированы, причем экспрессируется только женский аллель. По альтернативной версии транскрипты, которые накапливаются в ооците, на более поздней стадии развития становятся ответственны за термотолерантность. Ооцит и вновь образовавшийся эмбрион имеют более высокую степень транскрипции для специфических генов ответа на стресс, чем эмбрионы на 5-й день развития.51,62 Кроме того, ооциты, собранные в теплое время года, более устойчивы к тепловому шоку, примененному in vitro, чем ооциты, собранные в холодное время года.75 Соответственно, характеристики транскриптов, накопленных в ооците во время развития фолликула, могут быть важным фактором, определяющим последующую устойчивость к тепловому шоку.
Важным оставшимся без ответа вопросом является то, существуют ли породные различия в устойчивости ооцитов или ранних эмбрионов к тепловому шоку. Блокирование транскрипции в этих клетках может не позволить проявить генетические различия в термотолерантности. Если это так, генотип, скорее всего, не будет иметь большого значения in vivo, поскольку именно ооцит и очень ранний эмбрион наиболее подвержены повышенной температуре.
Последствия теплового стресса на более поздних сроках стельности
Хотя многочисленные данные указывают на то, что эмбрионы становятся в значительной степени устойчивыми к тепловому стрессу на стадии развития морулы, тепловой стресс может нарушить некоторые аспекты беременности на более поздних гестационных сроках. Получены противоречивые результаты относительно того, влияет ли тепловая нагрузка на позднюю потерю эмбриона и плода. Контролируемый эксперимент для проверки этой гипотезы не проводился. Эпидемиологический анализ (анализ уровня, структуры и динамики заболеваемости за какой-либо период времени или на данный момент) показал связь между жаркой погодой и увеличением потерь стельности между 35–45 и 90 днями стельности у коров в Испании.76
В другом исследовании, проведенном в Испании, увеличение числа жарких событий на 11–20 или 0–40 дни гестации было связано с потерей стельности между 28–34 и 80–86 днями.77 В исследовании в Калифорнии, напротив, не было никакой связи между возникновением теплового стресса до или после осеменения при потере стельности на сроке между 31 и 45 днями.78 Аналогично, отсутствовали сезонные колебания в потере стельности между днями 40–50 и 70–80 или между днями 70–80 и окончанием срока у молочного скота во Флориде.79
Во время поздней стельности тепловой стресс может нарушить функцию плаценты и рост плода.80–83 В результате наблюдается снижение последующего удоя молока у матери80,81,83,84 и постнатальной скорости роста и иммунной функции теленка.82
Способы управления
Лучший способ уменьшить влияние теплового стресса - охладить коров, изменив условия содержания животных. Например, уровень фертильности в израильских молочных фермах летом напрямую связан с величиной охлаждения, которое получают коровы.85 Однако, во многих случаях летнее снижение фертильности происходит, несмотря на попытки обеспечить охлаждение.85,86 Понимание клеточной и физиологической основ эмбриональных потерь во время теплового стресса позволило сформировать некоторые стратегии управления репродуктивными процессами, которые можно было бы использовать в сочетании с охлаждением.
Эмбриотрансфер
Единственный метод репродуктивного управления, который устойчиво демонстрирует улучшение фертильности у крупного рогатого скота во время теплового стресса, - это перенос эмбрионов. Улучшения фертильности при использовании переноса эмбрионов во время теплового стресса были замечены при использовании эмбрионов, полученных в результате суперовуляции87–89 или in vitro (ЭКО) .90–92 На одной коммерческой молочной ферме в Бразилии сезонные колебания рождаемости были устранены с помощью эмбриотрансфера.89
Удаление фолликула
Работа, проведенная в Израиле, показала, что ускорение вскрытия фолликулов в яичнике осенью может ускорить восстановление фертильности после теплового стресса. Благоприятное влияние на качество ооцитов наблюдалось путем "перелистывания" фолликулярного пула (волна роста группы фолликулов) путем фолликулярной аспирации30 , либо путем введения фолликулостимулирующего гормона93 или бычьего соматотропина.93 Ожидается, что такие обработки не будут эффективны летом, потому что фолликулы, появляющиеся в новом растущем пуле, также будут повреждены тепловым стрессом. Лечение лактирующих коров по протоколу с трехкратным введением гонадотропин-рилизинг-гормона и простагландина PGF2α для ускорения смены фолликулов летом и осенью не улучшало оплодотворяемость при первом ИО у повторнородящих коров, хотя тенденция к улучшению оплодотворяемости наблюдалась у первотелок.94 Возможно, было бы замечено больше ответных реакций, если бы исследование было ограничено поздним летом или осенью.
Антиоксиданты
Обработки с целью улучшения фертильности летом посредством введения антиоксидантов дали неоднозначные результаты. Отсутствовало улучшение фертильности, когда коровам вводили витамин Е при осеменении,95 делали многократные инъекции витамина Е и селена до и после отела,96 или инъекции β-каротина через –6, –3 и 0 дней относительно осеменения.97
Напротив, скармливание добавок с β-каротином в течение не менее 90 дней, начиная примерно через 15 дней после отела, увеличило долю коров, которые были стельными через 120 дней после отела.98 Кроме того, лечение коров с помощью мелатониновых имплантатов летом сокращает количество открытых дней.99 Интерпретация результатов исследования с мелатонином затруднена, поскольку мелатонин обладает многими биологическими свойствами, в том числе выступает в качестве антиоксиданта100 , но также является важным медиатором фотопериодической регуляции.101
Генетический контроль эмбриональной резистентности к повышенной температуре
Исследование, проведенное летом в Бразилии на лактирующих голштинах, показало, что количество стельностей на осеменение было выше, когда коров осеменяли спермой быков породы Гир, чем когда осеменяли спермой быков голштинской породы.102 Такой эффект может объясняться генетическими различиями в устойчивости эмбриона к тепловому шоку или эффектом гетерозиса у эмбриона.
Ссылки
-
Gwazdauskas F, Thatcher W, Wilcox C. Физиологические, средовые и гормональные факторы во время осеменения, которые могут влиять на зачатие. J Dairy Sci 1973;56:873–877.
-
Ulberg L, Burfening P. Гибель эмбрионов вследствие неблагоприятного воздействия среды на сперматозоиды или яйцеклетки. J Anim Sci 1967;26:571–577.
-
Torres-Júnior JR de S, de FA Pires M, de Sá WF и др. Влияние теплового стресса у матери на рост фолликулов и способность ооцитов к развитию у крупного рогатого скота Bos indicus. Theriogenology 2008;69:155–166.
-
Ealy A, Drost M, Hansen P. Изменение устойчивости эмбрионов к неблагоприятным последствиям теплового стресса у коров по мере развития эмбрионов. J Dairy Sci 1993;76:2899–2905.
-
Edwards J, Ealy A, Monterroso V, Hansen P. Становление регулируемого температурой синтеза белка теплового шока 70 у преимплантационных эмбрионов крупного рогатого скота. Mol Reprod Dev 1997;48:25–33.
-
Ju J, Parks J, Yang X. Термоустойчивость ооцитов крупного рогатого скота, созревших in vitro, и эмбрионов после кратковременного теплового шока. Mol Reprod Dev 1999;53:336–340.
-
Sakatani M, Kobayashi S, Takahashi M. Влияние теплового шока на развитие in vitro и внутриклеточное окислительное состояние преимплантационных эмбрионов крупного рогатого скота. Mol Reprod Dev 2004;67:77–82.
-
Eberhardt B, Satrapa R, Capinzaiki C, Trinca L, Barros C. Влияние породы быка ( Bos taurus indicus по сравнению с Bos taurus taurus ) и породы коровы ( Bos taurus indicus , Bos taurus taurus и помесной) на устойчивость эмбрионов крупного рогатого скота к нагреванию. Anim Reprod Sci 2009;114:54–61.
-
Fair T. Развитие ооцитов млекопитающих: контрольные этапы формирования способности к развитию. Reprod Fertil Dev 2010;22:13–20.
-
Rocha A, Randel R, Broussard J и др. Высокие температура и влажность окружающей среды снижают качество ооцитов у коров Bos taurus, но не у коров Bos indicus. Theriogenology 1998;49:657–665.
-
Al-Katanani Y, Paula-Lopes F, Hansen P. Влияние сезона и воздействия теплового стресса на способность ооцитов голштинских коров к развитию. J Dairy Sci 2002;85:390–396.
-
Ferreira R, Ayres H, Chiaratti M и др. Низкая фертильность коров с повторными безрезультатными осеменениями во время летнего теплового стресса связана с низкой способностью ооцитов развиваться до стадии бластоцисты. J Dairy Sci 2011;94:2383–2392.
-
Zeron Y, Ocheretny A, Kedar O, Borochov A, Sklan D, Arav A. Сезонные изменения фертильности крупного рогатого скота: связь со способностью ооцитов к развитию, свойствами мембран и жирнокислотным составом фолликулов.
-
Способность ооцитов к развитию, свойства мембран и жирнокислотный состав фолликулов. Reproduction 2001;121:447–454.
-
Gendelman M, Roth Z. Сезонное воздействие на ооциты крупного рогатого скота на стадии зародышевого пузырька также проявляется изменениями уровней транскриптов в развивающихся эмбрионах, связанными со сниженной способностью к развитию. Biol Reprod 2012;86:1–9.
-
Kawarsky S, Basrur P, Stubbings R, Hansen P, King W. Хромосомные аномалии у эмбрионов крупного рогатого скота и их влияние на развитие. Biol Reprod 1996;54:53–59.
-
Sirard M. Фолликулярная среда и качество ооцитов, созревших in vitro. J Assist Reprod Genet 2011;28:483–488.
-
Pohler K, Geary T, Atkins J, Perry G, Jinks E, Smith M. Фолликулярные факторы установления и сохранения беременности. Cell Tissue Res 2012;349:649–664.
-
Badinga L, Thatcher W, Diaz T, Drost M, Wolfenson D. Влияние теплового стресса, вызванного условиями окружающей среды, на развитие фолликулов и стероидогенез у лактирующих голштинских коров. Theriogenology 1993; 39:797–810.
-
Wolfenson D, Thatcher W, Badinga L и др. Влияние теплового стресса на развитие фолликулов в течение эстрального цикла у лактирующих молочных коров. Biol Reprod 1995;52:1106–1113.
-
Shehab-El-Deen M, Leroy J, Fadel M, Saleh S, Maes D, Van Soom A. Биохимические изменения в фолликулярной жидкости доминантного фолликула у высокопродуктивных молочных коров, подвергшихся тепловому стрессу в ранний послеродовой период. Anim Reprod Sci 2010;117:189–200.
-
Wolfenson D, Lew B, Thatcher W, Graber Y, Meidan R. Влияние сезонного и острого теплового стресса на выработку стероидов доминантными фолликулами у коров. Anim Reprod Sci 1997;47:9–19.
-
Wise M, Armstrong D, Huber J, Hunter R, Wiersma F. Гормональные изменения у лактирующих молочных коров в ответ на тепловой стресс. J Dairy Sci 1988;71:2480–2485.
-
Gilad E, Meidan R, Berman A, Graber Y, Wolfenson D. Влияние тонической и индуцированной ГнРГ секреции гонадотропинов в связи с концентрацией эстрадиола в плазме у циклирующих коров. J Reprod Fertil 1993;99:315–321.
-
Bridges P, Brusie M, Fortune J. Повышенная температура (тепловой стресс) in vitro снижает секрецию андростендиона и эстрадиола и повышает секрецию прогестерона фолликулярными клетками доминантных фолликулов крупного рогатого скота. Domest Anim Endocrinol 2005;29:508–522.
-
Wolfenson D, Roth Z, Meidan R. Нарушение воспроизводства у крупного рогатого скота, подвергшегося тепловому стрессу: фундаментальные и прикладные аспекты. Anim Reprod Sci 2000;60–61:535–547.
-
Bisinotto R, Chebel R, Santos J. На фертильность молочных коров влияет волна развития фолликулов, в ходе которой формируется овуляторный фолликул, а не циклический статус. J Dairy Sci 2010;93:3578–3587.
-
Denicol A, Lopes G Jr, Mendonça L и др. Низкая концентрация прогестерона во время развития первой фолликулярной волны снижает частоту наступления беременности на одно осеменение у лактирующих молочных коров. J Dairy Sci 2012;95:1794–1806.
-
Al-Katanani Y, Webb D, Hansen P. Факторы, влияющие на сезонные колебания 90-дневного показателя отсутствия повторной охоты после первого осеменения у лактирующих голштинских коров в жарком климате. J Dairy Sci 1999;82:2611–2615.
-
Huang C, Tsuruta S, Bertrand J, Misztal I, Lawlor T, Clay J. Влияние условий окружающей среды на показатели зачатия у голштинских коров в штатах Нью-Йорк и Джорджия. J Dairy Sci 2008;91:818–825.
-
Roth Z, Arav A, Bor A, Zeron Y, Braw-Tal R, Wolfenson D. Повышение качества ооцитов, полученных осенью, за счёт усиленного удаления повреждённых фолликулов у коров, ранее подвергшихся тепловому стрессу. Reproduction 2001;122:737–744.
-
Webb R, Campbell B. Развитие доминантного фолликула: механизмы отбора и поддержания качества ооцитов. Soc Reprod Fertil Suppl 2007;64:141–163.
-
Roth Z, Meidan R, Shaham-Albalancy A, Braw-Tal R, Wolfenson D. Отсроченное влияние теплового стресса на выработку стероидов в фолликулах крупного рогатого скота среднего размера и предовуляторных фолликулах. Reproduction 2001;121: 745–751.
-
Putney D, Mullins S, Thatcher W, Drost M, Gross T. Эмбриональное развитие у молочных коров с индуцированной суперовуляцией, подвергшихся воздействию повышенной
температуры окружающей среды в период от начала течки до осеменения. Anim Reprod Sci 1989;19:37–51.
-
Gwazdauskas F, Thatcher W, Kiddy C, Paape M, Wilcox C. Характер гормональных изменений при тепловом стрессе после индуцированной солью PGF2α-трометамина регрессии жёлтого тела у тёлок. Theriogenology 1981; 16:271–285.
-
Payton R, Romar R, Coy P, Saxton A, Lawrence J, Edwards J. Восприимчивость ооцитов крупного рогатого скота на стадии зародышевого пузырька, полученных из антральных фолликулов, к прямому воздействию теплового стресса in vitro. Biol Reprod 2004;71:1303–1308.
-
Roth Z, Hansen PJ. Участие апоптоза в нарушении способности ооцитов к развитию под действием теплового шока у крупного рогатого скота. Biol Reprod 2004; 71:1898–1906.
-
Roth Z, Hansen PJ. Нарушение созревания ядра и перестройка элементов цитоскелета в ооцитах крупного рогатого скота, подвергнутых тепловому шоку во время созревания. Reproduction 2005;129:235–244.
-
Ju J, Jiang S, Tseng J, Parks J, Yang X. Тепловой шок снижает способность ооцитов крупного рогатого скота к развитию и изменяет конфигурацию веретена деления. Theriogenology 2005;64:1677–1689.
-
Soto P, Smith L. Пептид BH4, производный от Bcl-xL, и пептид — ингибитор Bax подавляют апоптотические изменения митохондрий в ооцитах крупного рогатого скота, подвергнутых тепловому стрессу. Mol Reprod Dev 2009;76:637–646.
-
Andreu-Vázquez C, López-Gatius F, García-Ispierto I, MayaSoriano MJ, Hunter RH, López-Béjar M. Вызывает ли тепловой стресс исчезновение сплошного слоя кортикальных гранул под плазматической мембраной во время созревания ооцита? Zygote 2010;18:293–299.
-
Roth Z, Hansen P. Сфингозин-1-фосфат защищает ооциты крупного рогатого скота от теплового шока во время созревания. Biol Reprod 2004;71:2072–2078.
-
Kalo D, Roth Z. Участие сфинголипида церамида в апоптозе ооцитов крупного рогатого скота, вызванном тепловым шоком. Reprod Fertil Dev 2011;23:876–888.
-
Edwards J, Saxton A, Lawrence J, Payton R, Dunlap J. Воздействие повышенной температуры, соответствующей физиологическим условиям, ускоряет созревание ооцитов крупного рогатого скота in vitro. J Dairy Sci 2005;88: 4326–4333.
-
Rispoli L, Lawrence J, Payton R и др. Различные последствия воздействия теплового стресса во время мейотического созревания: развитие эмбрионов после химической активации и после оплодотворения ооцитов крупного рогатого скота. Reproduction 2011;142:831–843.
-
Sartori R, Sartor-Bergfelt R, Mertens S, Guenther J, Parrish J, Wiltbank M. Оплодотворение и раннее эмбриональное развитие у тёлок и лактирующих коров летом, а также у лактирующих и сухостойных коров зимой. J Dairy Sci 2002;85:2803–2812.
-
Meyerhoeffer D, Wettemann R, Coleman S, Wells M. Показатели воспроизводства быков мясных пород во время и после воздействия повышенной температуры окружающей среды. J Anim Sci 1985;60:352–357.
-
Monterroso V, Drury K, Ealy A, Howell J, Hansen P. Влияние теплового шока на функцию сперматозоидов быка после замораживания и оттаивания. Theriogenology 1995;44:947–961.
-
Hendricks K, Martins L, Hansen P. Последствия для эмбриона крупного рогатого скота его происхождения от сперматозоида, подвергшегося старению после эякуляции и тепловому шоку: развитие до стадии бластоцисты и соотношение полов. J Reprod Dev 2009;55:69–74.
-
Burfening P, Ulberg L. Выживаемость эмбрионов после культивирования сперматозоидов кролика при 38° и 40 ° C. J Reprod Fertil 1968;15:87–92.
-
Howarth B Jr, Alliston C, Ulberg L. Значение среды матки для сперматозоидов кролика до оплодотворения. J Anim Sci 1965;24:1027–1032.
-
Sakatani M, Alvarez N, Takahashi M, Hansen P. Последствия физиологического теплового шока, начинающегося на стадии зиготы, для эмбрионального развития и экспрессии генов стрессового ответа у крупного рогатого скота. J Dairy Sci 2012;95:3080–3091.
-
Edwards J, Hansen P. Различия в реакции ооцитов и доимплантационных эмбрионов крупного рогатого скота на тепловой шок. Mol Reprod Dev 1997;46:138–145.
