
Эмбрион Концепт Плод
Выживаемости эмбриона Выживаемости концепта Смертности плода
Общего числа клеток Вырождение/ фрагментация Массы тела
Аномальная плоидность Изменение длины трофобласта Измененное развитие органов
Измененная экспрессия Измененная экспрессия генов Измененный метаболизм
генов Измененная экспрессия генов
Плацента Теленок Реципиент
Масса плаценты Перинатальной смертности Абортов
Аномальные плацентомы Веса при рождении Продолжит. беременности
Аномальная сосудистая сеть Врожденных дефектов Дистоции/кесарева сечения
Водянка Респираторных проблем Измененная экспрессия
Гидроаллантоис Измененное соотношение эндометриального гена
Измененная экспрессия генов полов
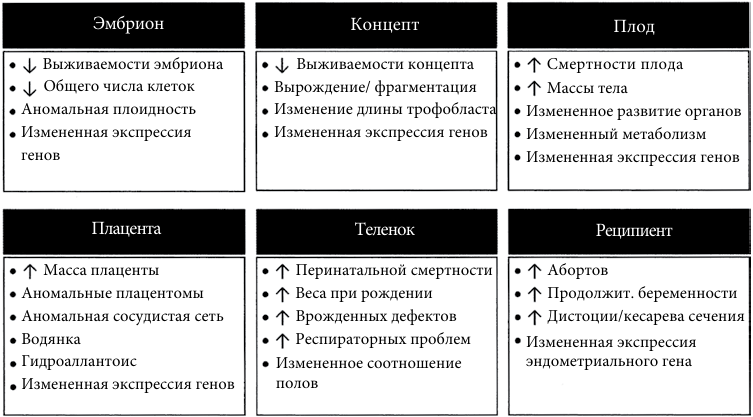
Рисунок 67.3 Выявление аномалий, обычно связанных с синдромом аномального потомства (AOS). В отдельных случаях каждая из перечисленных аномалий может присутствовать или отсутствовать.
Эти диктиатные ооциты должны быть подвергнуты созреванию in vitro (IVM) на протяжении 20–24 часов, в течение которых они достигают стадии метафазы II мейоза и становятся готовыми к оплодотворению. В то время как 50–80% созревших in vivo ооцитов развиваются до стадии бластоцисты после оплодотворения, только 15-40% созревших in vitro ооцитов достигают стадии бластоцисты в стандартных системах продуцирования in vitro.71–75 Более того, бластоцисты из ооцитов, созревших in vitro, имеют меньшеее количество клеток на эмбрион75 и во внутренней клеточной массе76– 78, чем бластоцисты из ооцитов, созревших in vivo. Таким образом, развитие трансгенных бластоцист было больше из ооцитов, созревших in vivo, по сравнению с ооцитами, созревшими in vitro.79 У овец больше беременностей было произведено из бластоцист SCNT, полученных из созревших in vivo цитопластов ооцитов, по сравнению с бластоцистами SCNT из цитопластов ооцитов, созревших in vitro.
Напротив, не было разницы в частоте наступления беременности после переноса трансгенных эмбрионов на стадиях морулы или бластоцисты в зависимости от того, были ли они из условий созревания in vivo или in vitro.79 Но для трансгенных бластоцист, полученных из ооцитов крупного рогатого скота, созревших in vivo, по сравнению с ооцитами, созревшими in vitro, наблюдалась разница в соотношении полов у телят, с более высоким процентом самцов, рожденных в группе созревших in vitro по сравнению с группой, оплодотворенной in vivo.79 Интересно, что средний вес при рождении самцов или самок трансгенных телят в результате переноса бластоцист, полученных из ооцитов, созревших in vitro, был значительно выше, чем у телят самцов или самок из бластоцист, полученных из ооцитов, созревших in vivo.79 Кроме того, 48% телят из ооцитов, созревших in vitro, имели при рождении 45 кг или более, тогда как только 19% телят из ооцитов, продуцированных in vivo, имели при рождении 45 кг или более. Наконец, телята-самки, полученные из ооцитов, созревших in vitro, были значительно тяжелее телят-самцов, полученных из ооцитов, созревших in vivo. В совокупности наблюдения как по крупному рогатому скоту, так и по овцам подтверждают вывод о том, что различия между условиями созревания ооцитов in vitro и in vivo играют важную роль в определении возникновения, по крайней мере, IV типа AOS, а также, возможно, других подтипов AOS.
К другим факторам, которые могут повлиять на нормальное развитие ооцитов, относятся балл упитанности и кормление.81 Ооциты, полученные от телок в умеренной кондиции, которые получали рацион с высоким уровнем обменной энергии, показали снижение выхода бластоцист IVP, в то время как ооциты телок, которые находились в низкой кондиции при таком же высоком уровне пищевой энергии, показали улучшенное развитие бластоцист in vitro.81 Ооциты телок на рационах, предназначенных для выработки повышенных уровней аммиака в плазме, продемонстрировали снижение компетентности (способности) к развитию in vitro (от стадии расщепления на 2 клетки до стадии бластоцисты) по сравнению с контрольной группой.82 У овец эмбрионы, полученные in vitro из ооцитов, подвергшихся in vivo воздействию повышенного содержания кормового азота мочевины, продемонстрировали снижение частоты наступления беременности после переноса.68 Взятые вместе, эти наблюдения дают представление о возможных механизмах, объясняющих ранние наблюдения того, что диеты с высоким содержанием белка связаны со снижением плодовитости молочного скота83 , а также дают представление о потенциальных механизмах, способствующих возникновению АОС типа I.
Преимплантационное развитие
У крупного рогатого скота эмбрионы обычно переносятся на 7-й день беременности на стадии развития бластоцисты. Наибольшая потеря стельности у крупного рогатого скота происходит в течение первых 2–3 недель беременности, при этом большая часть потерь приходится на 8–16-й день.84 По сравнению с ИО или переносом эмбрионов, произведенных in vivo, эмбрионы IVP могут демонстрировать даже более высокие показатели ранней эмбриональной гибели; однако, это может зависеть от качества перенесенного эмбриона. Например, коэффициенты выживаемости для эмбрионов крупного рогатого скота 1 степени качества были одинаковыми независимо от того, получены ли они in vivo или in vitro; но для эмбрионов 2-го уровня качества выживаемость была ниже, если они были получены из систем производства in vitro.45 Процент стельностей и процент отелов после переноса эмбрионов IVP различаются как между лабораториями, так и внутри них, хотя они могут быть ниже, чем те, которые наблюдаются после ИО или переноса эмбрионов, полученных in vivo.54,55,85–88
Другие факторы, такие как оценщик эмбрионов89 и характеристики реципиента86 , также могут влиять на успешное установление и поддержание беременности после переноса незамороженных in vivo и IVP эмбрионов крупного рогатого скота.
Эмбрионы крупного рогатого скота на предимплантационной стадии, полученные in vitro, отличаются по морфологии по сравнению с эмбрионами, полученными in vivo. При выращивании в среде, содержащей сыворотку, эмбрионы крс выглядят более темными, имеют менее организованную внутреннюю клеточную массу и менее компактны.76,78 Эмбрионы IVP, независимо от того, производятся ли они в среде с сывороткой или без нее, имеют большее количество липидных капель, больше незрелых митохондрий и не демонстрируют сопоставимого увеличения плотности митохондрий при переходе от стадии морулы к стадии бластоцисты по сравнению с эмбрионами in vivo.53,90–94
Общее количество клеток на бластоцист и распределение бластомеров во внутренней клеточной массе бластоцист также различаются между системами продуцирования in vitro и in vivo. Бластоцисты IVP демонстрируют меньшее число клеток и меньшую долю клеток, относящихся к внутренней клеточной массе.94,95 Также существуют различия в степени аномальной плоидности (числа хромосом) среди бластомеров эмбрионов, полученных in vivo, по сравнению с их аналогами in vitro.96 В то время как только 20-25% бластоцист из систем продуцирования in vivo демонстрируют миксоплоидию, приблизительно 45-70% бластоцист IVP были определены как миксоплоидные с частотой, зависящей от метода, используемого для определения числа хромосом.97,98 Хотя эмбрионы, несущие повышенную долю миксоплоидии, могут успешно вынашиваться и поддерживать беременность,96 резкое увеличение числа миксоплоидных бластомеров не способствует выживанию эмбрионов.99
Ранние сравнения экспрессии генов предимплантационных эмбрионов крс, полученных in vivo и in vitro, продемонстрировали, что на экспрессию как импринтированных (активны только аллели от одного родителя) , так и не импринтированных генов может влиять продукция эмбрионов in vitro.100–109 Дополнительное подтверждение гипотезе о том, что способность бластоцист устанавливать беременность связана с экспрессией определенных наборов генов, было предоставлено исследователями, которые проанализировали экспрессию мРНК из биопсийных образцов бластоцист, взятых до переноса эмбриона, и сопоставили ее с последующими событиями после переноса. Было обнаружено, что бластоцисты, которым не суждено установить беременность, экспрессируют повышенные уровни ингибитора имплантации CD9, а также воспалительных цитокинов фактора некроза опухоли (TNF) и мРНК, связанных с метаболизмом углеводов.110 Напротив, бластоцисты, перенос которых завершился рождением теленка, продемонстрировали повышенную экспрессию ряда специфических мРНК, в том числе некоторых, связанных с имплантацией (COX2, CDX2, PLAC8) и дифференцировкой (BMP15). Эти наблюдения согласуются с более ранним отчетом о корреляции профилей экспрессии мРНК с успешностью посттрансферной беременности пар демиэмбрионов (полуэмбрионы после разделения исходного эмбриона) , полученных путем расщепления бластоцист, полученных от суперовулированных коров-доноров.111 Эти исследователи также отметили повышенную экспрессию PLAC8 у демиэмбрионов, чья двойная демибластоциста была связана с рождением теленка после переноса. Чтобы ответить на вопрос, когда профили мРНК, предсказывающие компетентность (способность к) в развитии, могут быть определены во время развития, Held et al.112 оценили характер экспрессии мРНК у изолированных бластомеров из двухклеточных IVP-эмбрионов крупного рогатого скота с компетентностью в развитии их сестринских бластомеров.
Эти исследователи определили, что сестринские бластомеры, которым суждено развиться до стадии бластоцисты, экспрессировали повышенные уровни мРНК, связанные с реакциями на окислительный стресс, антиоксидантной активностью и окислительным фосфорилированием.112 В совокупности эти наблюдения подтверждают, что сигнатуры мРНК эмбрионов на различных стадиях развития могут быть связаны как с исходом развития до, так и после переноса. Более того, они согласуются с гипотезой о том, что в будущем также могут быть идентифицированы специфические сигнатуры мРНК у эмбрионов, предназначенных для демонстрации определенных подтипов AOS после переноса эмбриона. Это, в свою очередь, поддержит разработку процедур скрининга эмбрионов перед переносом или усовершенствование методов получения эмбрионов in vitro для устранения возникновения АОС. Например, было продемонстрировано, что включение в среду, используемую для производства эмбрионов крупного рогатого скота in vitro, специальных добавок, включая инсулиноподобный фактор роста (IGF)-1, колонистимулирующий фактор (CSF)-2 и гиалуронан, увеличивает процент стельностей после переноса.113 Интересно, что добавление CSF2 в культуральную среду устраняет возможность потери эмбриона до 35 дня беременности (тип I AOS); однако, количество наблюдений в этом исследовании было несколько ограниченным.113
Пери-имплантационное развитие
Подсчитано, что у молочных коров со средней продуктивностью наблюдается около 40% эмбриональной и плодной смертности; около 70–80% этих потерь приходится на период с 8 по 16 день стельности.114 Материнское распознавание беременности у крупного рогатого скота происходит примерно на 15-16 день беременности и требует адекватной экспрессии тау-интерферона (IFN) в развивающемся концептусе для предотвращения лютеолитического каскада.115,116 Более высокий уровень потерь наблюдаются в периимплантационном периоде среди концептов после переноса IVP-эмбрионов.53,105,117,118 Сходным образом значительная потеря эмбрионов была зарегистрирована в течение 2-х недель после переноса IVP- и SCNT- эмбрионов, хотя часть этих потерь может быть связана с трудностями в восстановлении этих концептов. Например, после переноса IVP-эмбрионов наблюдалось 51,2% выживляемость на 12-й день и 33–38% на 14-й день.105,119 На 14-й день было потеряно 75% перенесенных эмбрионов IVP по сравнению с 85– 93% эмбрионов SCNT.118 На 25-й день беременности было обнаружено только 19% и 15% концептов, полученных из IVP и клонированных эмбрионов, соответственно, по сравнению с 67% концептов, полученных с помощью ИО.120
В дополнение к более низким показателям выживаемости концептов, полученных из IVP-эмбрионов, также обнаруживают некоторые морфологические отличия от таковых, полученных in vivo. У концептов, полученных из эмбрионов IVP, извлеченных на 17й день гестации, наблюдалась повышенная частота фрагментации и/ или дегенерации по сравнению с контрольной группой, полученной in vivo.45 Кроме того, концепты IVP также длиннее, чем концепты, полученные in vivo, как на 12-й, так и на 17-й день гестации.105,117 Напротив, другие исследователи не обнаружили статистической разницы в уровне выживаемости интактных концептов на 16-й день между IVP и in vivo группами; тем не менее, они сообщили, что было больше целых структур или дегенерированных невылупившихся эмбрионов, извлеченных в группе IVP по сравнению с контрольной группой, полученной in vivo.104
В этом исследовании концепты, полученные из IVP-эмбрионов и извлеченные на 16-й день беременности, имели меньшие эмбриональные диски и, как правило, имели более короткую длину трофобласта по сравнению с контрольной группой, полученной in vivo. Различия в длине концепцов между исследованиями можно объяснить различиями в условиях in vitro, используемых при получении эмбрионов, а также временем восстановления относительно признания беременности матерью.
По сравнению с концептами, полученными в результате переноса IVP-эмбрионов, среди эмбрионов SCNT на 20% меньше концептов имели эмбриональный диск при имплантации на 17-й день.121 Скорость имплантации обычно выше, если эмбриональный диск обнаружен без признаков дегенерации концепта.119 Условия культивирования могут влиять на присутствие эмбрионального диска в развивающихся концептах; в одном исследовании сообщается о более высоком проценте присутствия эмбриональных дисков при использовании среды KSOM (72%) по сравнению со средой SOF (46%).
119
Периимплантационные концепты, полученные из IVP- или SCNTэмбрионов, могут иметь разные онтогенетические и ультраструктурные свойства.118 И IVP, и SCNT концепты имели задержку в развитии на 14-й и 21-й день по сравнению с ожидаемым графиком развития, описанным для концептов in vivo.118 При сравнении концептов от эмбрионов, происходящих от IVP и SCNT-эмбрионов, концепты SCNT на 14-й и 21й дни беременности были короче по длине и демонстрировали больше ультраструктурных дефектов в обоих временных точках по сравнению с IVP-концептами.118 Например, SCNT-концепты демонстрируют более частое возникновение апоптоза, больше вакуолей, меньше митохондрий в гипобласте, разрушение базальной мембраны между гипобластом и эпибластом, менее выраженные межклеточные контакты между клетками трофэктодермы, меньшее количество десмосом и меньшее количество полирибосом.
Между концептами, полученными в результате переноса IVP- или in vivo-эмбрионов, наблюдались различия в экспрессии генов.104 Например, контрольные эмбрионы in vivo показали временное снижение транскрипционной активности с 7 по 16 день, чего не наблюдалось в этот период у эмбрионов IVP. Более того, на 16-й день беременности концепты от эмбрионов, полученных из IVP, имели более высокую экспрессию транскрипта мРНК IGF1R по сравнению с in vivoконтролем.104 В то время как бластоцисты IVP на 7 день имели более низкий относительный уровень транскрипта IFN-t au по сравнению с контрольными in vivo бластцистами, концепты IVP на 16 день с задержкой развития имели большее содержание мРНК IFN-t au.104
По сравнению с концептами IVP, концепты, полученные в результате переноса SCNT-эмбрионов, не обладали экспрессией NANOG и FGF4 и сверхэкспрессировали мРНК IFN-tau на 17-й день гестации.121 Используя индивидуальный микрочип, было идентифицировано 47 генов, которые по-разному экспрессируются на 17-й день между концептами из эмбрионов SCNT и IVP. Кроме того, экспрессия генов, участвующих в пролиферации трофобластов (Mash2), дифференцировке (Hand1) и функции трофобластов (PAG9), была изменена в концептах SCNT на 17й день по сравнению с концептами из IVP или ИО.122 На 25-й день беременности концепты, полученные из IVP или NT-эмбрионов, имели более высокую экспрессию мРНК IGF1 по сравнению с контрольнями, полученными посредством ИО. Кроме того, концепты, полученные из эмбрионов SCNT, имели более высокую экспрессию мРНК IGF2, чем концепты, полученные из IVP.120 Интересно отметить, что профили экспрессии генов эндометрия матки при вынашивании эмбрионов SCNT и IVP, различаются.123 Эти наблюдения подтверждают предположение о том, что во время периимплантационного периода аномальная связь эмбриона с матерью может быть ответственной за измененный фенотип у клонированных животных.123
Фактически, изменения в экспрессии генов, жизненно важных для нормальной дифференцировки трофобластов и последующего развития плаценты, связанные с IVP и SCNT, могут быть фактором, способствующим увеличению потерь беременности и другим аномалиям, наблюдаемым на более позднем этапе развития.
Развитие плода
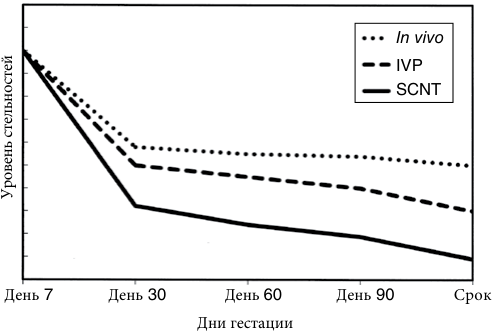
Развитие плода после переноса эмбрионов IVP или SCNT связано с повышенной смертностью и множеством аномалий. После периода эмбриональных потерь у крупного рогатого скота плоды, полученные из эмбрионов IVP или SCNT, испытывают более высокие показатели гестационных потерь по сравнению с плодами, полученными in vivo (Рисунок 67.4). Крупномасштабное исследование, анализирующее результаты более 30 наборов данных по IVP и SCNT, показало, что после поправки на такие эффекты, как время года, родство и пол теленка, потери плода были выше для эмбрионов IVP и SCNT по сравнению с беременностями от ИО или переноса эмбрионов.55 Кроме того, у телят IVP и SCNT наблюдался более длительный срок гестации и более высокий вес при рождении, а также повышенная частота дистоции и перинатальных потерь по сравнению с телятами, полученными путем искусственного осеменения или трансплантации эмбрионов.
Более высокий уровень невынашивания беременности после переноса IVP-эмбрионов наблюдается в позднем эмбриональном периоде (30-й день) и раннем плодном периоде до 90-го дня беременности по сравнению с контролем in vivo.59 В то время как частота выкидышей на сроке примерно от 2 месяцев беременности до доношенного срока составляет менее 10% у реципиентов, несущих in vivo-продуцированные эмбрионы,124–126 эти потери могут быть в два-три раза больше у реципиентов, несущих эмбрионы IVP.7,54,127,128 Беременности IVP сопровождаются гибелью эмбриона и плода, особенно между 30 и 65 днями гестации, при этом большая часть потерь происходит между 30 и 44 днями.128 Для сравнения, беременность, полученная от эмбрионов in vivo, имела более низкие показатели смертности, которые распределялись более равномерно между 30 и 90 днями.128 Кроме того, процент стельных на 60-й день гестации был на 42% ниже среди реципиентов с IVP-эмбрионами 1 степени развития по сравнению с таковыми у реципиентов с эмбрионами 1 степени, полученными in vivо.45 Частота сохранения беременности на 50-60-й день гестации после переноса свежих эмбрионов IVP степени 1 (59%) была значительно ниже по сравнению с таковой у свежих in vivoпродуцированных эмбрионов 1 степени (76%).
In vivo
IVP
SCNT
День 7 День 30 День 60 День 90 Срок
Дни гестации
Уровень стельностей
Рисунок 67.4 Относительный период гестационных потерь после переноса эмбрионов крупного рогатого скота, полученных in vivo, in vitro (IVP) или путем переноса ядра соматических клеток (SCNT).
