
PGF2α в день D3 вечером
и в день D4 утром
PGF2α GnRH Сбор яйцеклеток
GnRH AI AI /эмбрионов
D-8 D-1 D0 D3 D4 D5 D5 D6 D12
вечер утро вечер вечер утро утро вечер утро утро
| FSH | |||
|---|---|---|---|
| Прогестероновый имплант | |||
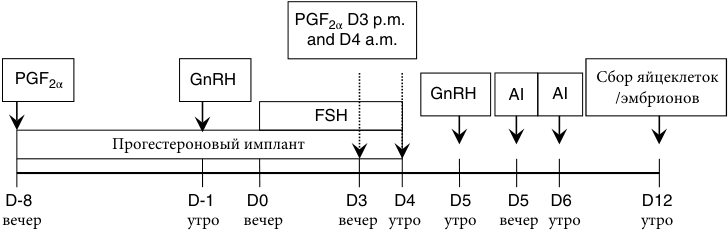
Рис. 75.1 Протокол суперовуляции коров-доноров во время первой фолликулярной волны после овуляции, вызванной ГнРГ (GnRH). Доноры получают прогестиновое устройство вместе с PGF2α с последующим введением ГнРГ через 7 дней. В день (D)0 (36 часов после ГнРГ) начинается суперстимуляция ФСГ (два раза в день с уменьшением дозы в течение 4 дней). PGF2α вводят с двумя последними инъекциями ФСГ, а прогестиновый аппарат удаляют одновременно с последней инъекцией ФСГ. Овуляция индуцируется ГнРГ через 24 часа после удаления прогестина, доноров осеменяют в фиксированное время (AI) через 12 и 24 часа, а яйцеклетки / эмбрионы собирают через 7 дней. От Bó G, Carballo Guerrero D, Tríbulo A и др.Новые подходы к суперовуляции у коров.Reprod Fertil Dev 2010;22:106–112.
Bó и др.59 недавно сообщили о серии экспериментов с целью разработки протокола суперстимуляции после овуляции, синхронно индуцированной введением гонадолиберина. Этот подход был основан на предыдущем исследовании, в котором овуляторный ответ увеличивался за счет развития стойкого фолликула при введении PGF2α и введении прогестинового устройства за 7-10 дней до введения ГнРГ.55 В этом исследовании овуляция и появление фолликулярной волны происходили через 1-2 дня после введения ГнРГ, что указывает на то, что этот подход может быть использован в группах доноров с рандомным циклом.
Рекомендуемый протокол суперстимуляции схематически представлен на рисунке 75.1. Он включает инъекцию PGF2α во время введения прогестинового устройства. Семь дней спустя (когда устройство с прогестином все еще на месте) вводят гонадолиберин, чтобы вызвать овуляцию персистентного фолликула и появление фолликулярной волны; лечение ФСГ начинается через 36 часов после введения ГнРГ. Хотя этот протокол был разработан для 4-дневного лечения ФСГ, можно выполнить 5-дневный протокол суперстимуляции, просто отложив извлечение прогестинового устройства на 1 день. В целом в этой серии экспериментов более 95% животных овулировали к (или после?? овулировали в ответ на первое введение GnRH) первой инъекции ГнРГ, и суперовуляторная реакция, а также количество и качество яйцеклеток / эмбрионов были аналогичны тем, что были получены при использовании эстрадиола для синхронизации появления фолликулярной волны.59
Фиксированное по времени осеменение доноров
Barros и Nogueira60 разработали протокол суперстимуляции для крупного рогатого скота Bos indicus, который они назвали P-36 протокол. В этом протоколе прогестиновое устройство, которое вводится до начала суперстимулирующей терапии, остается на месте в течение 36 часов после инъекции PGF2α и овуляция индуцируется введением pLH (porcine luteinizing hormone - свиной лютеинизирующий гормон) через 12 часов после извлечения прогестинового устройства (то есть через 48 часов после введения PGF2α). Поскольку овуляция происходит между 24 и 36 часами после инъекции LH61 осеменение проводят в фиксированное время через 12 и 24 часа, что устраняет необходимость в выявлении охоты.
В серии экспериментов, в которых время овуляции контролировалось ультразвуком, Bó и др.11 разработали протокол для доноров Bos taurus с фиксированным временем ИО без необходимости выявления охоты и без ущерба для результатов. По сути, время удаления прогестинового устройства откладывалось, чтобы предотвратить раннюю овуляцию и позволить поздно развивающимся фолликулам «наверстать упущенное» с последующей индукцией овуляции с помощью ГнРГ или pLH. В этом протоколе появление фолликулярной волны было синхронизировано эстрадиолом и прогестиновым устройством в день 0, а лечение ФСГ было начато на 4 день. На 6 день вводили PGF2α утром и вечером, а прогестиновое устройство было удалено утром на 7 день (через 24 часа после первого введения PGF2α). Утром 8-го дня (через 24 часа после удаления прогестинового устройства) вводили GnRH или pLH, а через 12 и 24 часа проводили ИО в фиксированное время. Отсрочка извлечения прогестинового устройства до утра 7-го дня привела к сбору большего количества яйцеклеток / эмбрионов и оплодотворенных яйцеклеток, чем его удаление утром 6-го дня (P. Chesta, докторская диссертация, Национальный университет Кордовы, Аргентина, 2010). С практической точки зрения, ИО доноров в фиксированное время показало свою эффективность в том плане, что специалистам по пересадке эмбрионов не нужно выявлять охоту.62.
Исследования на высокопродуктивных коровах голштинской породы (Bos taurus) в Бразилии показали, что для них предпочтительно подождать еще 12 часов перед удалением прогестинового устройства (например, на 7-й день вечером; P36), а затем через 24 часа ввести ГнРГ или pLH (т.е. вечером на 8 день).63 Подтверждено также, что у пород Bos indicus Baruselli и др.64 предпочтительнее удалить прогестиновое устройство вечером 7-го дня (P36), а затем инъецировать ГнРГ через 12 часов (т. е. утром 8-го дня). Хотя доноров обычно осеменяют дважды, через 12 и 24 часа после введения pLH или ГнРГ11 , можно использовать однократное осеменение высококачественной спермой через 16 часов после pLH.64
Снижение потребности в нескольких инъекциях ФСГ
Поскольку период полувыведения гипофизарного ФСГ у коровы короткий,8 традиционные протоколы суперстимулирующей терапии состоят из внутримышечных инъекций ФСГ два раза в день в течение 4 или 5 дней.9 Это требует частого внимания со стороны персонала фермы и увеличивает вероятность неудач из-за несоблюдения протокола. Кроме того, инъекции два раза в день могут вызвать чрезмерный стресс у доноров с последующим снижением суперовуляторной реакции и / или изменением преовуляторного выброса ЛГ.65,66
Таблица 75.1 Среднее (± SEM) продуцирование яйцеклеток / эмбрионов у доноров мясных пород, получавших Folltropin-V путем внутримышечных инъекций два раза в день в течение 4 дней (контроль) или ФСГ, разбавленный 2% гиалуронаном и вводимый путем однократной внутримышечной инъекции.
| Лечение | Общее число яйцекл/ | Оплодотворенных | Трансферабельных | Коров без трансферабельных | |
|---|---|---|---|---|---|
| N | эмбрионов | яйцеклеток | эмбрионов | эмбрионов (%) | |
| Контроль (дважды в день) | 146 | 12.1 ± 0.6 | 8.8 ± 0.5 | 6.7 ± 0.4 | 12 (8.2%) |
| Однократная инъекция | 146 | 11.2 ± 0.8 | 8.3 ± 0.6 | 6.4 ± 0.5 | 19 (13.0%) |
Средние показатели и проценты не различались ( P > 0.1). Источник: Bó G, Carballo Guerrero D, Tríbulo Aи др.Новые подходы к суперовуляции у коров.Reprod Fertil Dev 2010;22:106– 112.
Можно ожидать, что упрощенные протоколы уменьшат количество подходов к донорам и улучшат ответную реакцию на гормоны, особенно у менее податливых животных.
Было показано, что однократное подкожное введение ФСГ вызывает суперовуляторную реакцию, эквивалентную традиционным протоколам с инъекцией два раза в день у мясных коров с высокой упитанностью (т. е. оценка состояния тела >3 баллов по пятибальной шкале)67 , но эти результаты не подтвердились у коров голштинской породы, у которых было меньше жировой ткани. Однако, суперовуляторные реакции у коров голштинской породы улучшились, когда однократную инъекцию разделили на две; 75% дозы ФСГ вводилось подкожно в первый день лечения, а оставшиеся 25% вводились через 48 часов после стандартного введения PGF2α.68
Альтернативой для индукции последовательной суперовуляторной реакции с помощью однократной инъекции ФСГ является сочетание экстракта гипофиза с агентами, которые вызывают медленное высвобождение гормона в течение нескольких дней. Эти агенты обычно называют полимерами, которые биоразлагаемы и инертны по отношению к тканям, что облегчает их использование у животных.69
В серии экспериментов, в которых ФСГ, разведенный в 2% растворе гиалуронана, вводился однократно внутримышечно (чтобы избежать влияния упитанности), было получено такое же количество яйцеклеток / эмбрионов, что и в традиционном протоколе с введением ФСГ два раза в день70 (Таблица 75.1). Однако 2% гиалуроновая кислота была вязкой и трудно смешивалась с ФСГ, особенно в полевых условиях. Хотя более разбавленные препараты гиалуронана были менее эффективны при однократном введении, их использование было улучшено путем разделения их на две инъекции с интервалом 48 часов, как это было сделано с подкожными инъекциями ФСГ.
Протокол с раздельными внутримышечными инъекциями состоит из разбавления лиофилизированного порошка ФСГ 10 мл 1% или 0,5% раствора гиалуронана и введения 2/3 от дозы в первый день с последующим введением оставшейся 1/3 дозы через 48 часов, когда обычно вводится PGF2α.71 При сравнении с протоколом, где ФСГ вводится два раза в день (контроль) у 29 мясных коров, подвергнутых трехкратной гиперстимуляции по перекрестной схеме, количество трансферабельных эмбрионов по протоколу раздельной инъекции (1,0% гиалуронана, 5,0 ± 0,9; 0,5% гиалуронана, 6,1 ± 1,3) не отличались от контроля (4,0 ± 0,8). Эти данные предполагали, что разделение дозы ФСГ в любой концентрации гиалуронана на две внутримышечные инъекции с интервалом 48 часов приведет к сравнимой суперовуляторной реакции с традиционным протоколом внутримышечной инъекции два раза в день у мясного крупного рогатого скота. Более того, менее концентрированные растворы гиалуронана было несложно смешать с ФСГ даже в полевых условиях. Недавний отчет, основанный на данных коммерческого переноса эмбрионов, теперь подтвердил эти результаты у мясного скота в Северной Америке.72
Заключительные заметки
Хотя разработка протоколов, контролирующих возникновение фолликулярной волны и овуляцию, не устранила вариабельность суперовуляторной реакции, эти методы лечения оказали положительное влияние на применение технологии пересадки эмбрионов на ферме, позволяя начинать лечение в любое назначенное время. Эти протоколы обеспечивают возможность оперативно провести суперстимуляцию без необходимости выявления охоты. Кроме того, эти протоколы облегчили ИО доноров в фиксированное время, тем самым избегая необходимости обнаружения течки во время протокола суперстимуляции. Однако эстрадиол, который оказался наиболее эффективным в этой области, был изъят из продажи почти по всему миру, оставив в арсенале практика только абляцию фолликулов, которую трудно использовать в полевых условиях, в качестве надежного метода синхронизации появления фолликулярной волны для супер стимуляции. Хотя синхронность появления фолликулярной волны после введения ГнРГ или рLH на случайных стадиях эстрального цикла считается слишком вариативной для суперстимуляции, в нескольких недавних сообщениях предлагается пересмотреть этот подход. Альтернативой может быть использование ФСГ во время появления первой фолликулярной волны после индуцированной ГнРГ овуляции персистирующего фолликула, возникшего под воздействием прогестина. Наконец, однократная или раздельная внутримышечная инъекция ФСГ в гиалуронане может использоваться для индукции удовлетворительного суперовуляторного ответа у доноров мясного крс, упрощая весь протокол и уменьшая число подходов к с животным, а также стресс, связанный с инъекциями.
Ссылки
-
Armstrong D. Последние достижения в области суперовуляции у крупного рогатого скота.Theriogenology 1993;39:7–24.
-
Looney C. Суперовуляция у самок мясного крупного рогатого скота. В кн.:Материалы 5-го ежегодного собрания Американской ассоциации трансплантации эмбрионов, Форт-Уэрт, Техас, 1986, с. 16–29.
-
Lerner S, Thayne W, Baker Rи др.Возраст, доза FSH и другие факторы, влияющие на суперовуляцию у коров голштинской породы.J Anim Sci 1986;63:176–183.
-
Hasler J, McCauley A, Schermerhorn E, Foote R. Реакция коров голштинской породы на стимуляцию суперовуляции.Theriogenology 1983;19:83–99.
-
Murphy B, Mapletoft R, Manns J, Humphrey W. Вариабельность препаратов гонадотропинов как фактор, влияющий на реакцию при стимуляции суперовуляции.Theriogenology 1984;21:117–125.
-
Alkemade S, Murphy B, Mapletoft R. Суперовуляция у коров: влияние биологической активности гонадотропинов. В кн.:Материалы 12-го ежегодного собрания Американской ассоциации трансплантации эмбрионов, Портленд, Мэн, 1993, с. 1–19.
-
McGowan M, Braithwaite M, Jochle W, Mapletoft R. Стимуляция суперовуляции у мясного крупного рогатого скота препаратом пергонал (HMG): исследование зависимости эффекта от дозы.Theriogenology 1985;24:173–184.
-
Laster D. Выведение и поглощение I125 FSH у крыс, кроликов, овец и коров.J Reprod Fertil 1972;30:407–415.
-
Looney C, Boutle B, Archibald L, Godke R. Сравнение однократного и двукратного ежедневного введения FSH для стимуляции суперовуляции у мясного крупного рогатого скота.Theriogenology 1981;15:13–22.
-
Monniaux D, Chupin D, Saumande J. Реакция крупного рогатого скота на стимуляцию суперовуляции.Theriogenology 1983;19:55–82.
-
Bó G, Baruselli P, Chesta P, Martins C. Сроки овуляции и схемы осеменения у крупного рогатого скота после стимуляции суперовуляции.Theriogenology 2006;65:89–101.
-
Mapletoft R, Bó G. Развитие усовершенствованных и упрощённых протоколов стимуляции суперовуляции у крупного рогатого скота.Reprod Fertil Dev 2012; 24: 278–283.
-
Murphy B, Martinuk S. Хорионический гонадотропин лошадей.Endocrine Rev 1991;12:27–44.
-
Dieleman S, Bevers M, Vos P, de Loos F. PMSG/анти-PMSG у крупного рогатого скота: простой и эффективный метод стимуляции суперовуляции.Theriogenology 1993;39:25–42.
-
Mikel-Jenson A, Greve T, Madej A, Edqvist L. Гормональные профили и качество эмбрионов у коров после обработки PMSG-PGF2α.Theriogenology 1982;18:33–34.
-
Moor R, Kruip T, Green D. Внутрияичниковая регуляция фолликулогенеза: пределы суперовуляции?Theriogenology 1984;21:103–116.
-
Saumande J, Chupin D, Mariana J, Ortavant R, Mauleon P. Факторы, влияющие на вариабельность частоты овуляции после стимуляции PMSG. В кн.: Sreenan JM (ред.)Регуляция размножения коров. Гаага: Martinus Nijhoff, 1978, с. 195–224.
-
Schams D, Menzer D, Schalenberger E, Hoffman B, Hahn J, Hahn R. Некоторые исследования гонадотропина сыворотки жеребых кобыл (PMSG) и эндокринных реакций после его применения для стимуляции суперовуляции у крупного рогатого скота. В кн.: Sreenan JM (ред.)Регуляция размножения коров. Гаага: Martinus Nijhoff, 1978, с. 122–142.
-
Gonzalez A, Wang H, Carruthers T, Murphy B, Mapletoft R. Повышение частоты овуляции у тёлок мясных пород после стимуляции PMSG и введения моноклонального антитела к PMSG.Theriogenology 1994;41:1631–1642.
-
Elsden R, Nelson L, Seidel G. Стимуляция суперовуляции у коров с помощью фолликулостимулирующего гормона и гонадотропина сыворотки жеребых кобыл.Theriogenology 1978;9:17–26.
-
Goulding D, Williams D, Roche J, Boland M. Факторы, влияющие на суперовуляцию у тёлок после введения PMSG.Theriogenology 1996;45:765–773.
-
Mapletoft R, Pawlyshyn V, Garcia A и др. Сравнение четырёх схем применения гонадотропинов для индукции суперовуляции у коров с транслокацией 1:29. Theriogenology 1990;33:282 (тезисы).
-
Greve T, Callesen H, Hyttel P. Гормональные профили и качество яйцеклеток у коров после суперовуляции. Nord Vet Med 1983; 35: 408–421.
-
Callesen H, Greve T, Hyttel P. Предовуляционные гормональные изменения и созревание ооцитов у крупного рогатого скота после суперовуляции. Theriogenology 1986; 25:71–86.
-
Chupin D, Combarnous Y, Procureur R. Антагонистическое действие LH в коммерчески доступных препаратах гонадотропинов. Theriogenology 1984;25:167 (тезисы).
-
Armstrong D, Opavsky M. Биологические характеристики гипофизарного препарата FSH с пониженной активностью LH. Theriogenology 1986;25:135 (тезисы).
-
Gonzalez A, Lussier J, Carruthers T, Murphy B, Mapletoft R. Суперовуляция у тёлок мясных пород с применением Folltropin. Новый препарат FSH
с пониженной активностью LH. Theriogenology 1990;33:519–529.
-
Looney C, Bondioli K, Hill K, Massey J. Суперовуляция у коров-доноров с применением бычьего фолликулостимулирующего гормона (bFSH), полученного с помощью технологии рекомбинантной ДНК. Theriogenology 1988;29:271 (тезисы).
-
Rogan D, Strauss C, Mapletoft R и др. Возможности производства рекомбинантных гонадотропинов для вспомогательной репродукции и переноса эмбрионов. В кн.: Материалы совместного ежегодного собрания Канадской и Американской ассоциаций по переносу эмбрионов, Монреаль, Квебек, 2009, с. 59–67.
-
Tribulo H, Bó G, Jofre F, Carcedo J, Alonso A, Mapletoft R. Влияние концентрации LH в экстракте гипофиза свиней и сезона на ответ на стимуляцию суперовуляции у Bos indicus тёлок. Theriogenology 1991;35:286 (тезисы).
-
Page R, Jordan J, Johnson S. Суперовуляция у тёлок голштинской породы в условиях теплового стресса с применением FSH-P или Folltropin. Theriogenology 1985;31:236 (тезисы).
-
Adams G. Управление динамикой фолликулярных волн в яичниках крупного рогатого скота: значение для синхронизации и суперстимуляции. Theriogenology 1994;41:19–24.
-
Nasser L, Adams G, Bó G, Mapletoft R. Ответ яичников тёлок на суперстимуляцию в зависимости от момента появления фолликулярной волны. Theriogenology 1993;40:713–724.
-
Adams G, Matteri R, Kastelic J, Ko J, Ginther O. Связь между подъёмами уровня фолликулостимулирующего гормона и появлением фолликулярных волн у тёлок. J Reprod Fertil 1992;94:177–188.
-
Adams G, Nasser L, Bó G, Garcia A, Del Campo M, Mapletoft R. Ответ фолликулов яичников тёлок на стимуляцию суперовуляции при волне 1 по сравнению с волной 2. Theriogenology 1994;42:1103–1113.
-
Bó G, Adams G, Pierson R, Mapletoft R. Управление появлением фолликулярных волн у крупного рогатого скота с помощью внешних воздействий. Theriogenology 1995;43: 31–40.
-
Mapletoft R, Bennett-Steward K, Adams G. Последние достижения в области стимуляции суперовуляции у крупного рогатого скота. Reprod Nutr Dev 2002;42:1–11.
-
Lindsell C, Murphy B, Mapletoft R. Ответ на стимуляцию суперовуляции и гормональные изменения у тёлок при введении FSH на разных стадиях полового цикла. Theriogenology 1986;26:209–219.
-
Pierson R, Ginther O. Популяции фолликулов в течение полового цикла у тёлок. I. Влияние дня цикла. Anim Reprod Sci 1987;14: 165–176.
-
Ginther O, Kastelic J, Knopf L. Временные связи между событиями в яичниках крупного рогатого скота в течение половых циклов с двумя и тремя фолликулярными волнами. J Reprod Fertil 1989;87:223–230.
-
Bó G, Carballo Guerrero D, Adams G. Альтернативные подходы к подготовке коров-доноров к суперстимуляции. Theriogenology 2008;69:81–87.
-
García Guerra A, Tribulo A, Yapura J, Singh J, Mapletoft R. Увеличение продолжительности протокола суперстимуляции усиливает ответ яичников и повышает число пригодных для переноса эмбрионов у коров мясных пород. Theriogenology 2012;78:353–360.
-
Bó G, Baruselli P, Moreno D и др. Управление развитием фолликулярных волн для программ переноса эмбрионов у крупного рогатого скота с самостоятельно назначаемыми сроками. Theriogenology 2002;57:53–72.
-
Mapletoft R, Bó G, Baruselli P. Контроль функции яичников при применении вспомогательных репродуктивных технологий у крупного рогатого скота. Anim Reprod 2009;6:114–124.
-
Lane E, Austin E, Crowe M. Синхронизация течки у крупного рогатого скота. Современные варианты с учётом нормативных ограничений ЕС на применение эстрогенных соединений у сельскохозяйственных животных, используемых для производства пищевой продукции: обзор. Anim Reprod Sci 2008;109:1–16.
-
Bergfelt D, Bó G, Mapletoft R, Adams G. Ответ на суперовуляционную стимуляцию после возникновения фолликулярной волны, вызванного абляцией фолликулов на произвольных стадиях полового цикла у крупного рогатого скота. Anim Reprod Sci 1997;49:1–12.
-
Baracaldo M, Martinez M, Adams G, Mapletoft R. Ответ на суперовуляционную стимуляцию после трансвагинальной абляции фолликулов у крупного рогатого скота. Theriogenology 2000;53:1239–1250.
