
уровня энергетического питания после отела увеличивало долю самок, у которых в течение случного сезона проявлялась охота. BCS при отеле и в период осеменения — основные факторы, влияющие на вероятность наступления беременности, хотя изменение массы тела на поздних сроках стельности несколько меняет степень их влияния. Улучшение недостаточной упитанности после отела может ослабить отрицательное влияние на воспроизводство, но редко позволяет полностью его преодолеть или устранить. В недавнем исследовании Стивенсона и др.8 по образцам крови, взятым в начале случного сезона для определения наличия эстральных циклов, было установлено, что на этот момент циклы наблюдались лишь у 47.2% коров. Однако с повышением BCS доля коров с эстральными циклами также увеличивалась. Важно отметить, что среди коров, у которых в начале случного сезона оценка упитанности была ниже 4, эстральные циклы возобновились лишь у 33.9%.
Влияние кормления до отела на воспроизводство
Принято считать, что у коров, которых до отела содержат при повышении уровня кормления, интервал до первой овуляции обычно короче, чем у коров, уровень кормления которых снижают. Ограничение энергетического питания до отела приводит к низкой BCS при отеле, затяжному послеродовому анэструсу и снижению доли коров, у которых в течение случного сезона проявляется охота.9Уровень энергетического питания до отела также влияет на частоту наступления беременности и продолжительность интервала от отела до ее наступления.9И наоборот, если после ограничения поступления питательных веществ до отела их поступление после отела увеличивали, отрицательный эффект такого ограничения частично компенсировался. Однако эффективность усиленного кормления после отела зависела от степени ограничения питания до него.7,9BCS перед отелом также влияет на массу телят при рождении и отъеме. Когда коров кормили так, чтобы перед отелом их BCS достигала 4 или 6, у коров с BCS 6 масса тела была больше; больше была и масса их телят при рождении и отъеме при сходной генетике.10Несмотря на большую массу телят при рождении, различий в трудности отела не наблюдалось. Это свидетельствует о дополнительном преимуществе для реципиентов — возможности вырастить телят с большей массой при отъеме. Кроме того, среди отелившихся коров со средней BCS в начале случного сезона и после 60-дневного случного сезона доля животных с эстральными циклами имела тенденцию быть выше, чем среди коров с недостаточной упитанностью. В результате доля коров с эстральными циклами на разных этапах случного сезона была выше.10
Кормление после отела
Многочисленные исследования показывают, что повышение уровня кормления после отела увеличивает частоту зачатия и наступления беременности у коров мясных пород.4,11Повышение энергетической плотности рациона после отела увеличивало массу тела и BCS и сокращало интервал до первой охоты.7Однако у подсосных коров мясных пород со сравнительно низкой упитанностью, прибавлявших в массе более 1 kg/day при потреблении рациона с 85% концентратов, циклическая активность яичников не возобновлялась ранее чем через 70 дней после отела.7Поэтому, хотя улучшение кормления после отёла может частично компенсировать отрицательные последствия недостаточного
кормления до отёла, необходимо также учитывать дополнительную нагрузку и отрицательное влияние сосания телёнком и лактации.
Существенное влияние на фертильность после отёла оказывает продолжительность случного сезона. Ограниченный по времени случной сезон имеет много преимуществ, в том числе позволяет получить более однородных и более старших по возрасту телят. Но важнее всего то, что при продолжительности случного сезона 60 дней или менее возрастает доля самок, у которых в следующем случном сезоне происходит половой цикл. Сокращение случного сезона повышает вероятность наступления стельности у всех коров в следующем случном сезоне. Чтобы с помощью целенаправленного кормления добиться оптимальной упитанности (BCS), необходимо понимать производственный цикл коровы. Наибольшая потребность в питательных веществах возникает вскоре после отёла: корова должна вырабатывать молоко для растущего телёнка, восстанавливать массу тела, потерянную незадолго до родов и после них, и восстанавливать половые пути, чтобы вновь стать стельной в течение 3 месяцев после отёла. В этот период корова обычно потребляет столько корма, сколько может, поэтому попытки скорректировать её упитанность в это время часто бесполезны. Обычно коровы пасутся и получают достаточно протеина, витаминов и минеральных веществ, однако трава нередко бывает сочной и содержит много влаги, что иногда приводит к дефициту энергии.12
Регуляция полового цикла
Разработка протоколов синхронизации охоты
Такие факторы, как кормление, организация содержания и недостаточно эффективное выявление охоты, препятствуют широкому применению трансплантации эмбрионов в товарном мясном скотоводстве. Наиболее перспективный способ увеличить число животных, получающих эмбрионы, — использовать протоколы, позволяющие проводить трансплантацию без выявления охоты. Их обычно называют протоколами трансплантации эмбрионов в фиксированные сроки (FTET). Однако значительная часть исследований систем, применяемых сегодня в программах трансплантации эмбрионов, была посвящена искусственному осеменению в фиксированные сроки (TAI), а не FTET. Трансплантация эмбрионов коровам с синхронизированной охотой была наиболее эффективной, когда её проводили через 6–8 дней после выявления охоты или инъекции гонадотропин-рилизинг-гормона (GnRH).13Первые системы синхронизации охоты были направлены на изменение полового цикла путём индукции лютеолиза инъекцией простагландина (PG)F2α с последующим выявлением охоты. После успешного применения схем с однократным введением PGF2α исследователи сосредоточились на многократных инъекциях PGF2α, чтобы ещё больше сократить время, необходимое для выявления охоты.14,15В системах синхронизации охоты следующего поколения применяли экзогенные прогестины, такие как интравагинальное устройство для высвобождения прогестерона (CIDR) или ацетат меленгестрола (MGA). Их использовали, чтобы отсрочить наступление охоты после естественного или индуцированного лютеолиза и удлинить половой цикл.16,17
Лишь после открытия того, что рост фолликулов у крупного рогатого скота происходит отдельными волнами,18учёные смогли приступить к разработке систем синхронизации охоты третьего поколения. Регуляция фолликулярных волн с помощью однократной инъекции GnRH на произвольной стадии полового цикла вызывает резкий выброс лютеинизирующего гормона (LH), который приводит к синхронной овуляции или лютеинизации доминантных фолликулов.19–21В результате у большинства
(>60%) коров новая фолликулярная волна начинается в течение 1–3 дней после введения GnRH. Образовавшаяся после введения GnRH лютеиновая ткань подвергается лютеолизу, индуцированному PGF2α, спустя 6–7 дней.22Недостаток этого метода синхронизации охоты заключается в том, что примерно у 5–15% коров охоту выявляют в день введения PGF2α или раньше, что уменьшает долю самок, у которых её выявляют в период синхронизированной охоты.23–25
Совершенствование протоколов для мясных коров
Предварительные исследования выявили значительное повышение фертильности у коров, получавших MGA перед введением PGF2α, по сравнению с коровами, получавшими только PGF2α.26Когда коровам устанавливали CIDR на 7 дней и делали инъекцию PGF2α за день до удаления CIDR, синхронность наступления охоты и частота наступления стельности повышались.17Когда GnRH вводили за 6 или 7 дней до PGF2α, у 70–83% коров охота наступала в течение 4-дневного периода.22
Применение GnRH для регуляции возникновения фолликулярных волн и овуляции, а PGF2α — для индукции лютеолиза привело к разработке протокола Ovsynch для молочных коров.27Совмещение второй инъекции GnRH с осеменением в фиксированные сроки (CO-Synch) оказалось более практичным для производителей мясного скота, чем выявление охоты, поскольку не оказывало отрицательного влияния на фертильность.28Однако недостаток этого протокола состоит в том, что примерно у 5–15% мясных коров, вскармливающих телят, охота наступает до введения PGF2α или сразу после него.24Если у этих коров не выявить охоту и не осеменить их, они не станут стельными в результате TAI. Поэтому мы предположили, что добавление CIDR к протоколу на основе GnRH предотвратит преждевременное наступление охоты и обеспечит
повышение фертильности после TAI. В целом добавление CIDR к протоколу TAI на основе GnRH повысило частоту наступления стельности (59% против 48% соответственно). CIDR задерживал начало овуляции, благодаря чему она происходила более синхронно, и способствовал возобновлению полового цикла у коров, у которых он отсутствовал.24Однако эффективность этих протоколов TAI с применением CIDR ещё не сравнивали в рамках одного исследования с протоколами искусственного осеменения, требующими выявления охоты у мясных коров, вскармливающих телят. Поэтому мы организовали и координировали эксперимент, проводившийся в нескольких штатах и местах, чтобы определить, может ли протокол TAI на основе GnRH с добавлением CIDR обеспечить частоту наступления стельности, сопоставимую с протоколами, требующими выявления охоты.29Результаты показали, что протокол TAI обеспечивал частоту наступления стельности, сопоставимую с протоколом, предусматривающим выявление охоты, хотя у 35% коров на момент обработки наблюдался послеродовой анэструс.
Подробное изложение современных протоколов синхронизации охоты и TAI, рассмотренных рабочей группой Beef Reproduction Task Force, приведено на рисунке 78.1. Применение аналогичного протокола FTET у коров-реципиентов было бы практичным и эффективным способом добиться высокой частоты наступления стельности.
Совершенствование протоколов для тёлок мясных пород
Ранние исследования на тёлках мясных пород показали, что скармливание MGA в течение 14 дней с последующим введением PGF2α через 17 дней эффективно регулирует половой цикл тёлок.16,30Однако при введении тёлкам PGF2α через 19 дней после 14-дневного периода скармливания MGA фертильность не изменялась, но охота наступала более синхронно.31После успешного применения этого протокола исследователи начали включать в него GnRH
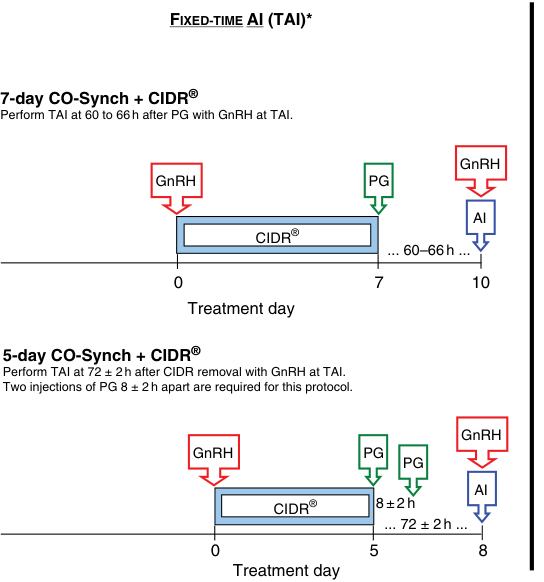
ИСКУССТВЕННОЕ ОСЕМЕНЕНИЕ В ФИКСИРОВАННЫЕ СРОКИ (TAI)*
7-дневный протокол CO-Synch + CIDR ®
Проводить TAI через 60–66 ч после введения PG; GnRH вводить во время TAI.
GnRH
GnRH PG
Искусственное осеменение
CIDR ®
... 60–66h ...
0 7 10
День обработки
5-дневный протокол CO-Synch + CIDR ®
Проводить TAI через 72 ± 2 ч после удаления CIDR; GnRH вводить во время TAI.
Для этого протокола необходимы две инъекции PG с интервалом 8 ± 2 ч.
GnRH
GnRH PG
PG
Искусственное осеменение
CIDR ® 8 ± 2 ч
... 72 ± 2h ...
0 5 8
День обработки
ИСКУССТВЕННОЕ ОСЕМЕНЕНИЕ В ФИКСИРОВАННЫЕ СРОКИ (TAI)*
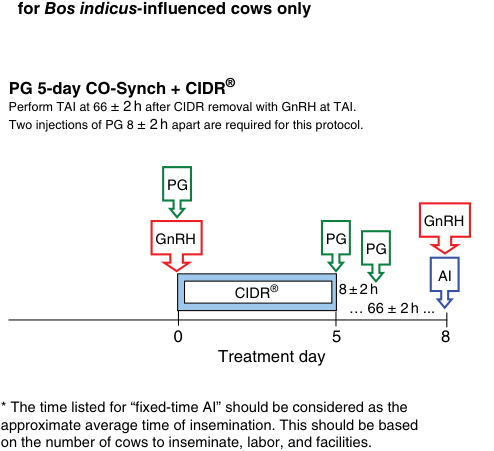
только для коров с примесью крови Bos indicus
PG 5-дневный протокол CO-Synch + CIDR ®
Проводить TAI через 66 ± 2 ч после удаления CIDR; GnRH вводить во время TAI.
Для этого протокола необходимы две инъекции PG с интервалом 8 ± 2 ч.
PG
GnRH
GnRH PG
PG
Искусственное осеменение
CIDR ® 8±2 ч
… 66 ± 2h ...
0 5 8
День обработки
* Время, указанное для «искусственного осеменения в фиксированные сроки», следует считать
приблизительным средним временем осеменения. Его следует определять исходя из
от числа коров, подлежащих осеменению, наличия работников и оборудования.
Рисунок 78.1Действующие протоколы синхронизации половой охоты и осеменения в фиксированное время (TAI) у коров мясных пород, рассмотренные Рабочей группой по воспроизводству мясного скота. Доступны по адресу http://beefrepro.unl.edu.
ИСКУССТВЕННОЕ ОСЕМЕНЕНИЕ В ФИКСИРОВАННОЕ ВРЕМЯ (TAI)
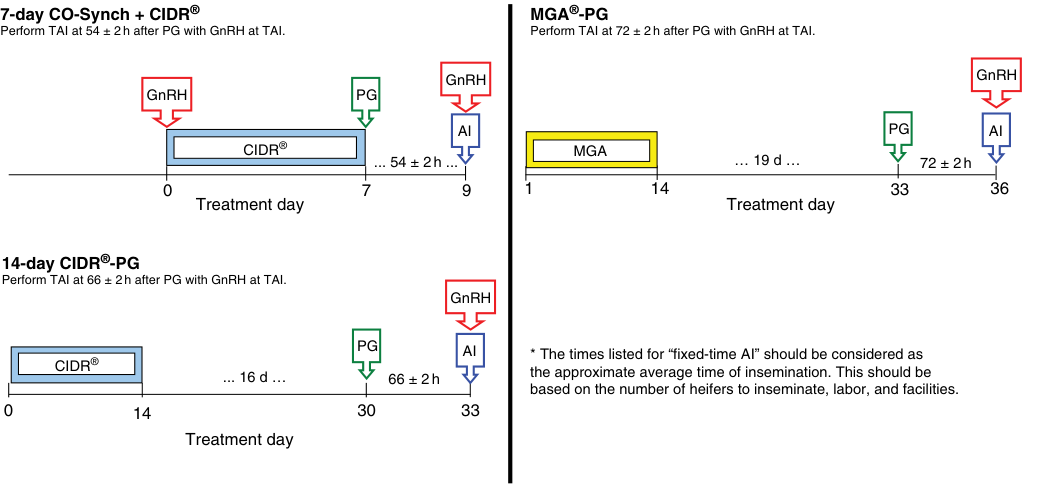
7-дневная схема CO-Synch + CIDR ®; MGA ® -PG
Проводить TAI через 54 ± 2 ч после введения PG, вводя GnRH во время TAI. Проводить TAI через 72 ± 2 ч после введения PG, вводя GnRH во время TAI.
GnRH GnRH
GnRH PG
ИО PG ИО
CIDR ® MGA
... 54 ± 2 h ... … 19 d … 72 ± 2h
0 7 9 1 14 33 36
День обработки День обработки
14-дневная схема CIDR ® -PG
Проводить TAI через 66 ± 2 ч после введения PG, вводя GnRH во время TAI.
GnRH
PG ИО * Указанное время «осеменения в фиксированное время» следует считать
CIDR ®
... 16 сут … 66 ± 2 ч приблизительным средним временем осеменения. Его следует определять
с учётом числа тёлок, подлежащих осеменению, наличия работников и оборудования.
0 14 30 33
День обработки
Рисунок 78.2Действующие протоколы синхронизации половой охоты и TAI у тёлок мясных пород, рассмотренные Рабочей группой по воспроизводству мясного скота. Доступны по адресу http://beefrepro.unl.edu.
в протоколах синхронизации половой охоты для TAI. Однако добавление GnRH к описанному выше протоколу не повысило частоту стельности у тёлок после TAI.32Синхронизация половой охоты с помощью GnRH с последующим введением PGF2α успешно синхронизировала тёлок, однако описанный выше протокол MGA–PGF2α обеспечивал более высокую синхронность половой охоты и потому, как правило, был эффективнее.31
Разработка протокола TAI для тёлок мясных пород оказалась не столь простой, как для коров, особенно с учётом того, что к моменту синхронизации половой охоты большинство (>85%) тёлок достигают половой зрелости.33Основной причиной неудач TAI у тёлок, по-видимому, является невозможность синхронизировать фолликулярные волны с помощью GnRH. После инъекции GnRH на произвольных стадиях полового цикла овуляция произошла у 75–90% коров мясных пород после отёла,34,35тогда как среди тёлок мясных и молочных пород овуляция в ответ на такое же воздействие произошла лишь у 48–60%.27,36,37Мы не обнаружили различий в синхронности половой охоты или частоте стельности у тёлок, получавших CIDR, независимо от того, вводили ли им GnRH при установке CIDR. Это указывает на то, что ответ на GnRH при установке CIDR у тёлок может иметь ограниченное значение.33
В крупном многоцентровом исследовании с применением GnRH, PGF2α и CIDR введение GnRH не повысило частоту стельности после выявления половой охоты, однако добавление CIDR к протоколу TAI на основе GnRH обеспечило частоту стельности, сопоставимую с таковой при выявлении половой охоты.33Тем не менее остаётся труднообъяснимым тот факт, что средняя частота стельности при этих протоколах составляла от 53 до 58%, тогда как, по имеющимся данным, при протоколах с MGA (с введением PGF2α через 19 дней после удаления MGA) или длительным применением CIDR (с введением PGF2α через 16 дней после удаления MGA) с последующим введением PGF2α частота стельности составляла от 60 до 75%.23,31,33,38Подробное изложение действующих протоколов синхронизации половой охоты и TAI, рассмотренных Рабочей группой по воспроизводству мясного скота, приведено на рисунке 78.2. Применение аналогичного протокола у реципиентов
при переносе эмбрионов в фиксированное время (FTET) было бы практичным и эффективным способом достижения высокой частоты стельности у тёлок-реципиентов.
Повторная синхронизация половой охоты
Повторное осеменение нестельных коров при первой подходящей половой охоте можно облегчить путём повторной синхронизации полового цикла,39что могло бы найти широкое применение в интенсивных программах переноса эмбрионов. Чтобы максимально сократить период отёлов, второй цикл синхронизации половой охоты необходимо начинать до того, как станет известно, стельны ли животные. Хотя повторная синхронизация с помощью прогестина повышала долю нестельных самок с синхронным повторным наступлением половой охоты,40,41повторная синхронизация с применением устройств CIDR и ципионата или бензоата эстрадиола снижала частоту зачатия после последующего искусственного осеменения.40В то же время в последующих исследованиях снижения фертильности при использовании эстрогенов для повторной синхронизации с помощью CIDR не наблюдали.42Кроме того, установка CIDR на 13 дней в день переноса эмбриона, через 7 дней после половой охоты,43или на период с 5-го дня после TAI до 21-го дня29эффективно обеспечивала повторную синхронизацию половой охоты у нестельных коров, но не повышала фертильность по сравнению с контрольной группой.
Факторы, связанные с реципиентами
Факторы, связанные с переносом эмбрионов
Извлечение эмбриона из естественной среды матки, а во многих случаях также замораживание и оттаивание усиливают стрессовое воздействие на эмбрионы, в результате чего снижается их выживаемость после переноса. Выявленное нами снижение частоты стельности с 83% при переносе свежих эмбрионов ( n = 122) до 69% при переносе замороженных и оттаянных эмбрионов
