
Диаметр жёлтого тела 2.4
Стадия развития эмбриона 2.5
Свежий или замороженный эмбрион 3.3
Место размещения эмбриона 3.3
Возраст реципиента 3.4
Анамнез реципиента 3.5
Упитанность при пересадке эмбриона 3.7
Специалист по пересадке эмбрионов 4.1
Качество эмбриона 4.2
1 2 3 4 5
Слабое влияние Сильное влияние
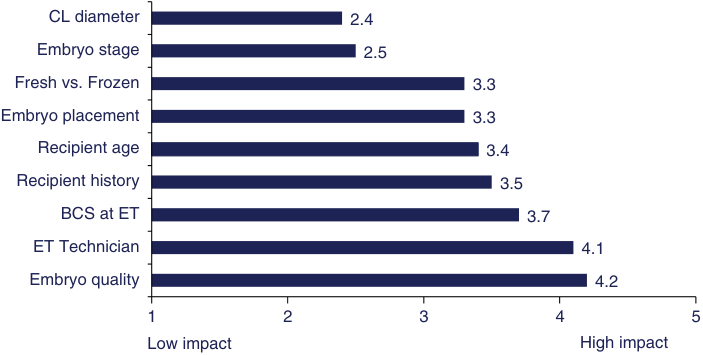
Рисунок 78.3 Оценка относительного влияния факторов на плодовитость реципиентов при пересадке эмбрионов (1 — наименьшее влияние, 5 — наибольшее). BCS — оценка упитанности; ET — пересадка эмбриона.
использование свежих или замороженных эмбрионов, а также стадия развития эмбриона при пересадке и анамнез реципиента оказывают большое влияние на результативность программ пересадки эмбрионов.67 Считается, что диаметр жёлтого тела слабо влияет на плодовитость реципиентов при пересадке эмбрионов. Действительно, в исследовании лютеиновых характеристик и концентрации прогестерона в плазме крови беременных и небеременных реципиентов различий в диаметре жёлтого тела, объёме лютеиновой ткани и концентрации прогестерона в плазме не обнаружили.47
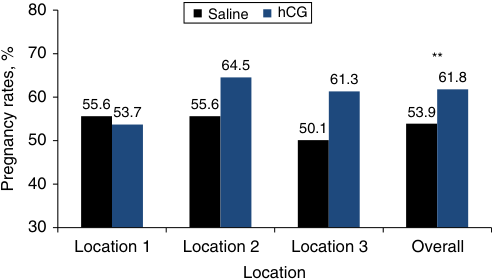
Удивительно, что 61% участников опроса заявили об отсутствии опыта применения хорионического гонадотропина человека (hCG), 23% сочли его применение безрезультатным и лишь 16% полагали, что применение hCG в программах пересадки эмбрионов эффективно. Тем не менее наша недавняя работа68 показала, что введение hCG при пересадке эмбриона повышало частоту образования дополнительных жёлтых тел, концентрацию прогестерона у беременных реципиентов и частоту наступления беременности после пересадки. В трёх местах проведения исследования реципиентами служили чистопородные и помесные животные пород ангус, симментальская и герефордская (n = 719) поочерёдно назначали внутримышечное введение hCG 1000 IU или физиологического раствора 1 mL (контроль) при переносе эмбриона. При первой диагностике на день 33 доля стельных животных составила 61.8 и 53.9% в группах hCG и контроля соответственно (рисунок 78.4), а при второй диагностике на день 68 — 59.0 и 51.4% соответственно. В соответствии с нашими результатами применение hCG при переносе эмбрионов также повысило долю стельных животных среди коров-реципиентов голштинской породы при переносе эмбрионов в фиксированные сроки.69
На вопрос о влиянии флуниксина меглумина (FM), ингибитора синтеза простагландинов, на фертильность реципиентов при переносе эмбрионов 53% участников опроса ответили, что применение FM не принесло успеха, 18% сообщили, что не имеют опыта применения FM, и лишь 29% оценили применение FM в программах переноса эмбрионов как успешное. В исследовании влияния FM при введении перед переносом эмбрионов доля стельных животных была выше среди реципиентов, получивших инъекцию FM. Однако результаты различались в зависимости от места проведения исследования.43 В другом исследовании применение FM повысило общую долю стельных реципиентов (65.3% против 60.2% в группе FM и контрольной группе соответственно), причём влияние FM, по-видимому, было ещё более благоприятным при переносе эмбрионов класса 2.70
80 Физиологический раствор hCG
70 **
64.5
61.3 61.8
60
55.6 55.6
53.7 53.9
50.1
50
40
30
Место проведения 1 Место проведения 2 Место проведения 3 В целом
Место проведения
Доля стельных животных, %
Рисунок 78.4 Влияние введения hCG 1000 IU при переносе эмбрионов на долю стельных животных на день 33 (данные по свежим и замороженным эмбрионам объединены). ** — показатели в группе hCG отличаются от показателей в группе физиологического раствора, P = 0.03). Адаптировано по: Wallace L, Breiner C, Breiner R и др. Введение хорионического гонадотропина человека при переносе эмбриона вызывало овуляцию доминантного фолликула первой волны и повышало уровень прогестерона и долю стельных животных после переноса эмбрионов. Theriogenology 2011;75:1506–1515.
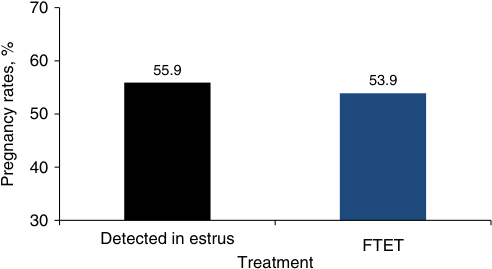
Наконец, мы спросили участников, насколько успешными они считают программы переноса эмбрионов в фиксированные сроки (FTET): 73% ответили, что FTET успешен, 14% — что FTET неуспешен, а 13% не имели опыта применения FTET. Применение протоколов синхронизации устраняет необходимость выявлять охоту и увеличивает число животных, которым переносят эмбрионы. Большинство современных протоколов FTET основано на применении устройств, высвобождающих прогестаген, в сочетании с эстрадиолом или GnRH; это позволяет контролировать и синхронизировать динамику фолликулярных волн и овуляцию. Сообщалось, что частота зачатия после одного FTET сходна с таковой после выявления охоты (рисунок 78.5); однако доля стельных животных выше, поскольку эти методы увеличивают долю реципиентов, которым переносят эмбрион.66
Заключение
Для эффективности программы переноса эмбрионов необходимо обеспечить множество условий. Питание, контроль полового цикла и содержание реципиентов — всё это
70
60
55.9
53.9
50
40
30
Охота выявлена
FTET
Метод
Доля стельных животных, %
Рисунок 78.5 Доля стельных животных после переноса эмбрионов (замороженных) реципиентам с выявленной охотой или при FTET ( P = 0.36). Адаптировано по: Bó G, Peres L, Cutaia L и др. Методы синхронизации коров-реципиентов для переноса эмбрионов в фиксированные сроки и повышения доли стельных животных. Reprod Fertil Dev 2011;24:272–277.
определяет успех или неудачу конкретной программы. Производители, эмбриологи, ветеринарные врачи и все участники команды по содержанию реципиентов должны учитывать краткосрочные и долгосрочные факторы, способствующие зачатию у реципиентов после переноса эмбриона, сохранению эмбриона и плода до срока родов, рождению телёнка без посторонней помощи, а также выращиванию и отъёму здорового телёнка.
Резюме
Коммерчески жизнеспособная отрасль переноса эмбрионов крупного рогатого скота сформировалась в начале 1970-х годов. Первоначально перенос эмбрионов крупного рогатого скота выполняли исключительно хирургическим способом. Однако к началу 1980-х годов большинство эмбрионов переносили без хирургического вмешательства. Для эффективности программы переноса эмбрионов необходимо обеспечить множество условий. Питание, контроль полового цикла и содержание реципиентов определяют успех или неудачу воспроизводства в конкретном стаде. Оценка упитанности по шкале BCS — практический способ определения состояния питания стада реципиентов. Питание перед отёлом крайне важно: оно должно обеспечивать коровам достаточную упитанность к отёлу, чтобы послеродовые половые циклы возобновились достаточно рано для применения протоколов синхронизации. Синхронизация охоты для переноса эмбрионов после выявления охоты или для переноса в фиксированные сроки — эффективный способ увеличить число телят, полученных благодаря переносу эмбрионов. Кроме того, повторная синхронизация нестельных самок позволяет обеспечить возвращение к охоте высокого процента реципиентов в течение 72-часового интервала и их пригодность для последующего переноса эмбрионов. Чтобы стадо реципиентов реализовало свой репродуктивный потенциал, необходимо учитывать множество дополнительных факторов. К ним относятся оценка преимуществ нерожавших, первородящих и многократно рожавших коров, обеспечение условий содержания, сводящих стресс к минимуму, а также наличие чётко определённой программы охраны здоровья стада и соблюдение её требований. Многочисленные краткосрочные и долгосрочные факторы способствуют зачатию у реципиентов после переноса эмбриона, сохранению эмбриона и плода до срока родов, рождению телёнка без посторонней помощи, а также выращиванию и отъёму здорового телёнка.
Список литературы
-
Seidel GE Jr, Seidel SM. Применение переноса эмбрионов. В кн.: Учебное руководство по переносу эмбрионов у крупного рогатого скота . Рим: FAO, 1991, с. 3–13.
-
Wright J. Безоперационный перенос эмбрионов у крупного рогатого скота: взаимодействие эмбриона и реципиента. Theriogenology 1981;15:43–56.
-
Short R, Adams D. Взаимосвязи питания и гормональной регуляции при воспроизводстве мясного крупного рогатого скота. Can J Anim Sci 1988;68:29–39.
-
Whitman R. Изменение массы тела, упитанность и воспроизводство мясных коров . Диссертация на соискание степени PhD, Университет штата Колорадо, Форт-Коллинс, 1975.
-
Mapletoft R, Lindsell C, Pawlyshyn V. Влияние кленбутерола, упитанности и оборудования для безоперационного переноса эмбрионов на долю стельных коров-реципиентов. Theriogenology 1986; 25:172 (аннотация).
-
Beal W. Оптимизация переноса эмбрионов. В материалах: 18-й ежегодный съезд Американской ассоциации переноса эмбрионов, Колорадо-Спрингс, штат Колорадо , 1999, с. 78–85.
-
Lalman D, Keisler D, Williams J, Scholljegerdes E, Mallet D. Влияние массы тела и изменения упитанности после отёла на продолжительность анэструса у недостаточно упитанных подсосных тёлок мясных пород. J Anim Sci 1997;75:2003–2008.
-
Stevenson J, Johnson S, Milliken G. Частота послеродового анэструса у подсосных коров мясных пород: методы стимуляции охоты, овуляции и зачатия. Prof Anim Sci 2003;19:124–134.
-
Perry R, Corah L, Cochran R и др. . Влияние энергетической ценности рациона на развитие фолликулов, содержание гонадотропинов в сыворотке крови и первую овуляцию после отёла у подсосных коров мясных пород. J Anim Sci 1991;69:3762–3773.
-
Spitzer J, Morrison D, Wetteman R, Faulkner L. Влияние упитанности при отёле и прироста массы тела после отёла на показатели воспроизводства, массу телят при рождении и отъёме у первородящих коров мясных пород. J Anim Sci 1995;73:1251–1257.
-
Wiltbank J, Rowden W, Ingalls J, Gregory K, Koch R. Влияние уровня энергетического питания на репродуктивные процессы у взрослых коров герефордской породы. J Anim Sci 1962;21:219–225.
-
Национальный исследовательский совет. Потребности мясного крупного рогатого скота в питательных веществах , 7-е изд. Вашингтон, округ Колумбия: National Academy Press, 1996, с. 85–96.
-
Bó G, Baruselli P, Moreno D и др. Контроль развития фолликулярных волн в программах переноса эмбрионов у крупного рогатого скота с самостоятельно назначаемыми сроками. Theriogenology 2002;57:53–72.
-
Lauderdale J, Seguin B, Stellflung J и др. Фертильность крупного рогатого скота после инъекции PGF2α. J Anim Sci 1974;38:964–967.
-
Seguin B, Gustafson B, Hurtgen J и др. Применение аналога простагландина F2α клопростенола (ICI 80,996) у молочных коров, у которых не была замечена течка. Theriogenology 1978;10:55–64.
-
Brown L, Odde K, LeFever D, King M, Neubauer C. Сравнение схем MGA–PGF2α и Syncro-Mate B для синхронизации течки у тёлок мясных пород. Theriogenology 1988;30:1–12.
-
Lucy M, Billings H, Butler W и др. Эффективность внутривлагалищного устройства с прогестероном и инъекции PGF2alpha для синхронизации течки и сокращения периода до наступления стельности у мясных коров после отёла, тёлок мясных пород в околопубертатный период и тёлок молочных пород. J Anim Sci 2001;70:1904–1910.
-
Fortune J, Sirois J, Quirk S. Рост и дифференцировка фолликулов яичников в течение полового цикла у крупного рогатого скота. Theriogenology 1988;29:95–109.
-
Garverick H, Elmore R, Vaillancourt D, Sharp A. Реакция яичников на гонадотропин-рилизинг-гормон у молочных коров после отёла. Am J Vet Res 1980;41:1582–1585.
-
Bao B, Garverick H. Экспрессия генов стероидогенных ферментов и рецепторов гонадотропинов в фолликулах крупного рогатого скота в ходе фолликулярных волн: обзор. J Anim Sci 1998;76:1903–1921.
-
Sartori R, Fricke P, Ferreira J, Ginther O, Wiltbank M. Отклонение в развитии фолликулов и приобретение ими способности к овуляции у крупного рогатого скота. Biol Reprod 2001;65:1403–1409.
-
Twagiramungu H, Guilbault A, Dufour J. Синхронизация фолликулярных волн яичников с помощью
агониста гонадотропин-рилизинг-гормона для повышения точности синхронизации течки у крупного рогатого скота: обзор. J Anim Sci 1995;73:3141–3151.
-
Kojima F, Salfen B, Ricke W, Lucy M, Smith M, Patterson D. Разработка протокола синхронизации течки у мясного крупного рогатого скота с краткосрочным скармливанием ацетата меленгестрола: 7–11 Synch. J Anim Sci 2000;78:2186–2191.
-
Lamb G, Stevenson J, Kesler D, Garverick H, Brown D, Salfen B. Применение внутривлагалищного устройства с прогестероном в сочетании с GnRH и простагландином F2α для контроля овуляции у подсосных мясных коров после отёла. J Anim Sci 2001;79:2253–2259.
-
Martinez M, Kastelic J, Adams G, Mapletoft R. Применение GnRH или эстрадиола для проведения осеменения в фиксированное время при использовании схемы синхронизации на основе MGA у мясного крупного рогатого скота. Anim Reprod Sci 2001;67:221–229.
-
Patterson D, Hall J, Bradley N, Schillo K, Woods B, Kearnan J. Улучшение синхронности течки, повышение доли успешных зачатий и плодовитости у подсосных мясных коров после отёла при скармливании ацетата меленгестрола перед введением простагландина F2α. J Anim Sci 1995;73:954–959.
-
Pursley J, Mee M, Wiltbank M. Синхронизация овуляции у молочных коров с использованием PGF2alpha и GnRH. Theriogenology 1995; 44:915–923.
-
Geary T, Whittier J, Hallford D, MacNeil M. Отъём телят повышает долю успешных зачатий при применении протоколов Ovsynch и CO-Synch. J Anim Sci 2001;79:1–4.
-
Larson J, Lamb G, Stevenson J и др. Синхронизация течки у подсосных мясных коров для искусственного осеменения при выявленной течке и в фиксированное время с использованием гонадотропин-рилизинг-гормона, простагландина F2alpha и прогестерона. J Anim Sci 2006;84:332–342.
-
Patterson D, Kiracofe G, Stevenson J, Corah L. Управление половым циклом крупного рогатого скота с помощью ацетата меленгестрола (MGA): обзор. J Anim Sci 1989;67:1895–1906.
-
Lamb G, Nix D, Stevenson J, Corah L. Увеличение интервала между применением MGA и простагландина F2α с 17 до 19 дней в схеме синхронизации течки у тёлок. Theriogenology 2000; 53:691–698.
-
Wood-Follis S, Kojima F, Lucy M, Smith M, Patterson D. Синхронизация течки у тёлок мясных пород с помощью протоколов на основе прогестинов. I. Различия в реакции в зависимости от достижения половой зрелости к началу лечения. Theriogenology 2004;62:1518–1528.
-
Lamb G, Larson J, Geary T и др. Синхронизация течки и искусственное осеменение ремонтных тёлок мясных пород с использованием GnRH, PGF2α и прогестерона. J Anim Sci 2006;84:3000–3009.
-
Thompson K, Stevenson J, Lamb G, Grieger D, Loest C. Реакции фолликулов, изменения гормонального статуса и наступление стельности в ответ на введение GnRH, норгестомета и простагландина F2α у подсосных мясных коров в ранний период после отёла. J Anim Sci 1999;77:1823–1832.
-
El-Zarkouny S, Cartmill J, Hensley B, Stevenson J. Наступление стельности у молочных коров после применения схем синхронизации овуляции с предварительной синхронизацией и прогестероном или без них. J Dairy Sci 2000; 87:1024–1037.
-
Macmillan K, Thatcher W. Влияние агониста гонадотропин-рилизинг-гормона на фолликулы яичников у крупного рогатого скота. Biol Reprod 1991;45:883–889.
-
Moreira F, de la Sota R, Diaz T, Thatcher W. Влияние дня полового цикла, в который начинают протокол искусственного осеменения в фиксированное время, на репродуктивные показатели тёлок молочных пород. J Anim Sci 2000;78:1568–1576.
-
Patterson D, Wood S, Randle R. Методы, обеспечивающие управление воспроизводством ремонтных тёлок мясных пород. J Anim Sci 2000;77:1–15.
-
Van Cleeff J, Macmillan K, Drost M, Thatcher W. Влияние введения прогестерона через определённые интервалы после осеменения тёлок с синхронизированным половым циклом на частоту наступления стельности и повторную синхронизацию половой охоты у нестельных животных. Theriogenology 1996; 4:1117–1130.
-
Stevenson J, Johnson S, Medina-Britos M, Richardson-Adams A, Lamb G. Повторная синхронизация половой охоты у крупного рогатого скота с неизвестным
статусом стельности с использованием эстрогена, прогестерона или обоих гормонов. J Anim Sci 2003; 81:1681–1692.
-
Colazo M, Kastelic J, Mainar-Jaime R и др. Повторная синхронизация половой охоты у тёлок мясных пород после осеменения в установленное время с применением прогестинов. Theriogenology 2006;65:557–572.
-
Cavalieri J, Hepworth G, Smart V, Ryan M, Macmillan K. Показатели воспроизводства у лактирующих молочных коров и тёлок, которым перед повторным осеменением проводили повторную синхронизацию с помощью внутривлагалищного устройства, высвобождающего прогестерон, в течение 7 или 8 дн. с введением бензоата эстрадиола при установке устройства и через 24 ч после его удаления. Theriogenology 2007;67:824–834.
-
Purcell S, Beal W, Gray K. Влияние устройства CIDR и флуниксина меглумина, применённых при переносе эмбрионов, на частоту наступления стельности и повторную синхронизацию половой охоты у мясного крупного рогатого скота. Theriogenology 2005;64:867–878.
-
Leibo S. Получение стельности в коммерческих условиях путём переноса замороженных и оттаянных эмбрионов крупного рогатого скота, разбавленных в один этап. Theriogenology 1986; 25:166 (аннотация).
-
Sreenan J, Diskin M. Факторы, влияющие на частоту наступления стельности после переноса эмбрионов у коров. Theriogenology 1987;27: 99–113.
-
Hasler J. Факторы, влияющие на частоту наступления стельности при переносе замороженных и свежих эмбрионов крупного рогатого скота. Theriogenology 2001;56:1401–1415.
-
Spell A, Beal W, Corah L, Lamb G. Оценка факторов, связанных с реципиентами и эмбрионами, которые влияют на частоту наступления стельности при переносе эмбрионов у мясного крупного рогатого скота. Theriogenology 2001;56:287–298.
-
Coleman D, Dailey R, Leffel R, Baker R. Синхронизация половой охоты и наступление стельности у коров — реципиентов эмбрионов. J Dairy Sci 1987;70:858–866.
-
Hasler J, McCauley A, Lathrop W, Foote R. Влияние взаимодействия донора и реципиента на частоту наступления стельности в крупномасштабной программе переноса эмбрионов крупного рогатого скота. Theriogenology 1987;27: 139–168.
-
Schneider H Jr, Castleberry R, Griffin J. Коммерческие аспекты переноса эмбрионов крупного рогатого скота. Theriogenology 1980;13:73–85.
-
Wright J. Нехирургический перенос эмбрионов у крупного рогатого скота: взаимодействие эмбриона и реципиента. Theriogenology 1981;15:43–56.
-
Niemann H, Sacher B, Elasaesser F. Частота наступления стельности в зависимости от уровня прогестерона в плазме крови реципиента в день нехирургического переноса замороженных и оттаянных эмбрионов крупного рогатого скота. Theriogenology 1985;23:631–639.
-
Hasler J, Bowen R, Nelson L, Seidel G Jr. Концентрация прогестерона в сыворотке крови коров — реципиентов эмбрионов. J Reprod Fertil 1980;58:71–77.
-
Rowe R, Del Campo M, Crister J, Ginther O. Перенос эмбрионов у крупного рогатого скота: нехирургический метод. Am J Vet Res 1980:41:1024–1028.
-
Schrick F. Влияние ингибитора синтеза простагландинов, введённого при переносе эмбрионов, на частоту наступления стельности у коров-реципиентов. Prostaglandins Other Lipid Mediat 2005;78:38–45.
-
Patterson D, Wood S, Randle R. Методы, обеспечивающие управление воспроизводством ремонтных тёлок мясных пород. J Anim Sci 1999;77:1–15.
-
Stroud B, Hasler J. Анализ причин, по которым суперовуляция и перенос эмбрионов обычно дают результат в одних хозяйствах, но не дают в других. Theriogenology 2006;65:65–76.
-
Whittier W, Baitis H. Сроки вакцинации в программах синхронизации половой охоты. В кн.: Материалы конференции «Прикладные стратегии воспроизводства мясного крупного рогатого скота», Лексингтон, штат Кентукки , 2005, с. 147–156.
-
Daly R. Сроки вакцинации в стадах мясного крупного рогатого скота. В кн.: Материалы конференции «Прикладные стратегии воспроизводства мясного крупного рогатого скота», Рапид-Сити, штат Южная Дакота , 2006, с. 190–195.
-
Harrington T, King M, Mihura H, LeFever D, Hill R, Odde K. Влияние продолжительности транспортировки на частоту наступления стельности у годовалых тёлок мясных пород с синхронизированным половым циклом. Отчёт программы по мясному скотоводству Университета штата Колорадо, Форт-Коллинз, 1995, с. 81–86.
-
Mickelson W, Evermann J. Внутриутробные инфекции, вызывающие аборты, мертворождения и рождение слабых телят у коров мясных пород. Vet Clin North Am Food Anim Pract 1994;10:1–14.
