Таблица 82.3 Сравнение потерь беременности после SCNT у коров при использовании гомозиготных и гетерозиготных по MHC клеточных линий
| Число эмбрионов | Число беременных реципиентов | ||||||
|---|---|---|---|---|---|---|---|
| Клеточная линия | Год | Тип MHCᵃ | перенесено | День 28ᵇ | День 90ᶜ | День 200ᶜ | До срока родовᶜ |
| MHC класса I | гомозиготные | Клеточные линии для SCNT | |||||
| UT3388 | 2001 | AH68/AH68 | 48 | 29 (60.4%) | 21 | 21 | 13 |
| UT3388 | 2002 | AH68/AH68 | 21 | 6 (28.5%) | 5 | 5 | 4 |
| UT4585 | 2002 | AH67/AH67 | 39 | 10 (25.6%) | 8 | 6 | 6 |
| Итого | 108 | 45 (41.6%) | 34 | 32 | 23 | ||
| MHC класса I | гетерозиготные | Клеточные линии для SCNT | |||||
| UT4381 | 2001 | AH12/AH68 | 48 | 18 (37.5%) | 0 | 0 | 0 |
| UT4472 | 2002 | AH12/AH68 | 5 | 3 (60%) | 1 | 1 | 1 |
| Итого | 53 | 21 (39.6) | 1 | 1 | 1 | ||
a Гаплотипы MHC класса I (AH), присутствовавшие в донорских клеточных линиях для SCNT, определяли методом типирования на микрочипах MHC класса I и секвенирования геномных последовательностей MHC класса I.
b Частота беременности на 28-й день после переноса каждому реципиенту одного эмбриона, полученного методом SCNT, достоверно не различалась между двумя группами ( P = 0.80).
c Потери беременности при использовании гомозиготных и гетерозиготных по MHC класса I клеточных линий для SCNT сравнивали для трёх периодов: дни 28–90, дни 28–200 и период с дня 28 до срока родов. Во всех трёх периодах различия в потерях беременности были статистически значимыми при P < 0.001 (критерий хи-квадрат). Источник : адаптировано по Davies C, Hill J, Edwards J и др. Экспрессия антигенов главного комплекса гистосовместимости в плаценте крупного рогатого скота: связь с патологическим течением беременности и задержанием последа. Anim Reprod Sci 2004;82–83:267–280; с разрешения Elsevier.
сельскохозяйственных животных до 100%. Возможность получать трансгенных сельскохозяйственных животных, которые служат биореакторами для производства лекарственных препаратов или потенциальными донорами органов для людей, породила новое направление — «фарминг», обладающее неограниченным потенциалом для охраны здоровья человека. Трансгенные животные также позволяют исследовать в сельскохозяйственной и биомедицинской науке гены, участвующие в работе различных биологических и физиологических систем. Кроме того, SCNT служит мощным инструментом биологии развития, позволяющим выяснять взаимозависимость ядерных и цитоплазматических компонентов, необходимых для развития эмбриона и определения судьбы клеток.
Клонирование с целью получения генетических копий существующих особей принято называть «репродуктивным» клонированием. Поскольку SCNT может применяться для клонирования человека, моральные и этические вопросы его использования обсуждались и будут обсуждаться правительствами разных стран мира. Хотя большинство согласилось бы с необходимостью запретить клонирование человека в репродуктивных целях, возможность применения этой технологии в лечебных целях остаётся предметом споров. Терапевтическое клонирование означает использование SCNT для перепрограммирования соматических клеток пациента с целью получения стволовых клеток для регенерации тканей, поражённых болезнью или повреждённых в результате травмы. Использование стволовых клеток, полученных от самого пациента, устранило бы опасения, связанные с отторжением тканей или клеток. Однако получение стволовых клеток после SCNT приводит к уничтожению человеческих эмбрионов, созданных в ходе этого процесса.
Проблемы, связанные с клонированием методом SCNT
Главным ограничением применения SCNT для клонирования сельскохозяйственно важных продуктивных и других животных остаётся низкая эффективность получения живого потомства. Долли была одним из 277 клонированных эмбрионов, развившихся до срока родов (эффективность 0.3%).1 «Милли», клон взрослой коровы джерсейской породы, полученный в нашей лаборатории, была единственным потомком,
полученным после 95 попыток (эффективность 1.1%). Управление по санитарному надзору за качеством пищевых продуктов и медикаментов США (FDA) представило подробную оценку потенциальных опасностей и рисков, чтобы показать масштаб проблем, связанных с сохраняющейся низкой эффективностью клонирования продуктивных животных, таких как крупный рогатый скот, овцы, свиньи и козы.9 Данные многочисленных академических и частных лабораторий по всему миру показывают, что независимо от вида животного и типа соматических клеток гибель клонированных эмбрионов и плодов происходит на протяжении всей беременности. Более того, необычно высокая доля клонированных детёнышей имеет размеры больше нормальных и погибает вскоре после рождения.
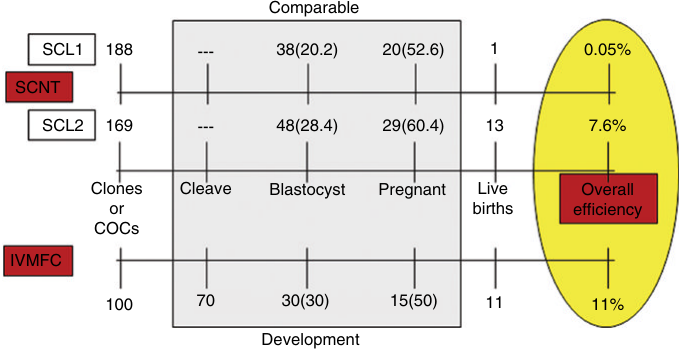
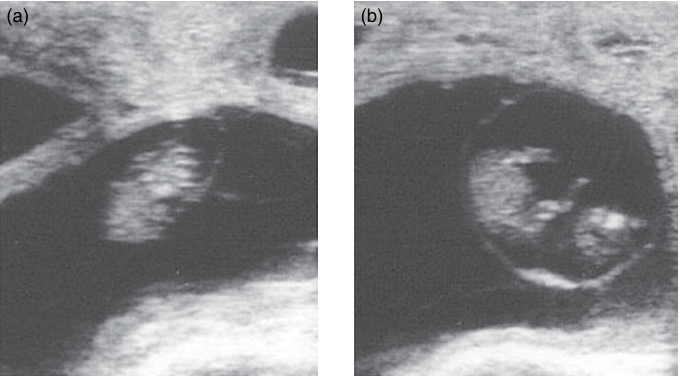
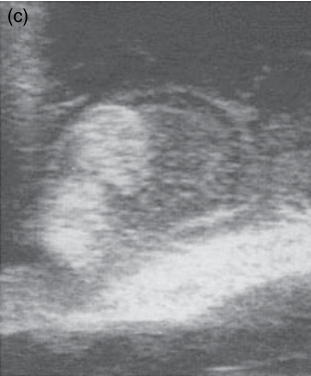
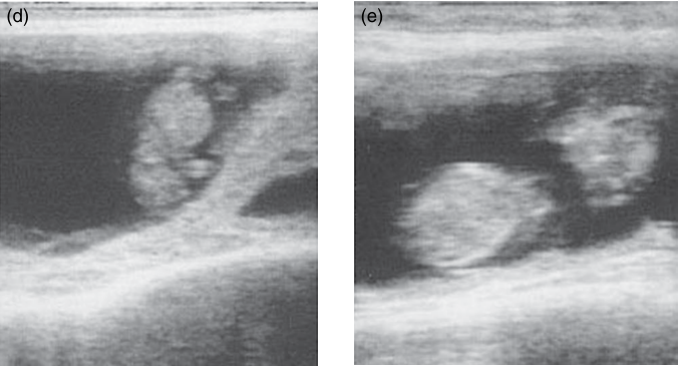
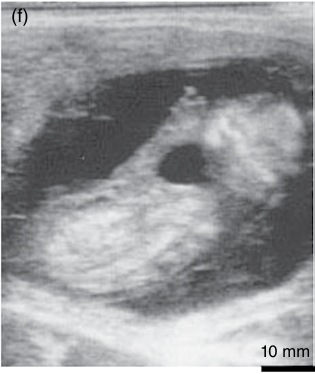
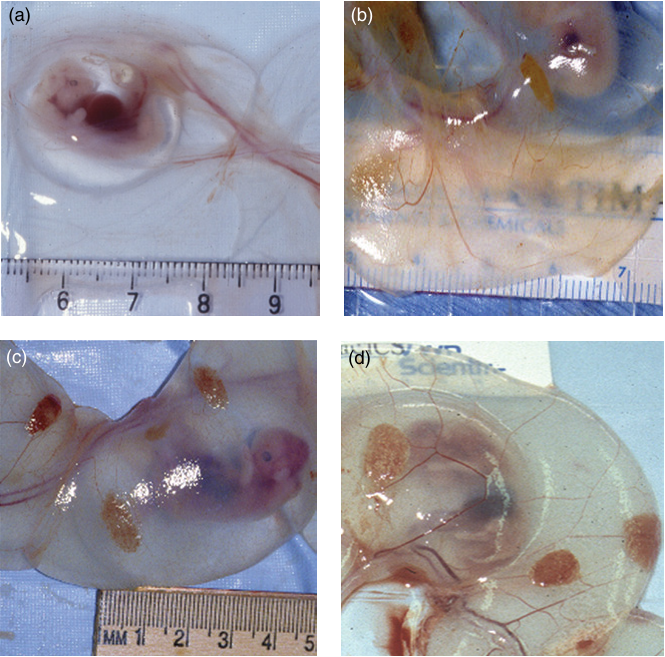
Интересно, что в течение первых 29–32 дней развитие клонированных эмбрионов крупного рогатого скота протекает сходно с развитием эмбрионов, полученных после in vitro созревания, оплодотворения и культивирования (IVMFC) до стадии бластоцисты (рисунок 82.5 и таблица 82.3). Однако после этого периода сходство резко исчезает. В зависимости от клеточной линии примерно между 30 и 90 днями беременности происходит гибель эмбрионов (её определяют по отсутствию сердцебиения и отслоению плодных оболочек13 ) может наблюдаться в 100% случаев беременности клонированным плодом (таблица 82.3 и рисунок 82.6). Хотя это не оказывает неблагоприятного воздействия на корову-реципиента, потери беременности такого масштаба у крупного рогатого скота значительно превышают ожидаемые после естественного осеменения (2–10%)14 или после получения эмбрионов с применением процедур IVMFC (16%).15,16При подробном исследовании плацент клонированных эмбрионов на сроках между 40 и 50 днями беременности выяснилось, что значительная их доля была гипоплазированной или частично развитой, с рудиментарными котиледонами13 (рисунок 82.7). Плацентарная недостаточность могла бы объяснить гибель клонированных плодов в этот период. Хотя этот процесс изучен не полностью, причиной проблем может быть иммунное отторжение, связанное с неправильной экспрессией антигенов главного комплекса гистосовместимости (MHC) класса I в трофобласте.17Хотя другие исследователи не смогли получить доказательств аномальной экспрессии MHC класса I в трофобласте клонированных плодов,18примечательно, что обе линии клеток, широко использовавшиеся в нашей лаборатории и позволившие получить значительное число успешных беременностей, были получены
Сопоставимо
SCL1 188 --- 38(20.2) 20(52.6) 1 0.05%
SCNT
SCL2 169 --- 48(28.4) 29(60.4) 13 7.6%
Клоны Дробление Бластоцисты Беременность Живорождённые Общая
или роды эффективность
Комплексы ооцит — кумулюс (COCs)
IVMFC
100 70 30(30) 15(50) 11 11%
Развитие
(a) (b)
(c)
(d) (e)
(f)
10 mm
Рисунок 82.6Сравнение развития нежизнеспособного (a–c) и жизнеспособного (d–f) плодов, полученных методом SCNT, с помощью трансректального ультразвукового исследования на 45-й (a, d), 55-й (b, e) и 65-й (c, f) дни. Нежизнеспособный плод был жив на 45-й день (регистрировалось сердцебиение) и мёртв на 55-й день (сердцебиение отсутствовало). На 65-й день по мере дегенерации плода стало заметно повышение эхогенности амниотической жидкости. Копчиково-теменная длина (cm) нежизнеспособного и жизнеспособного плодов на каждом из этих сроков составляла соответственно 3 и 2.8, 3.7 и 5.7, 3.7 и 7.5. Воспроизведено по работе Hill J, Burghardt R, Jones Kи др.Доказательства того, что аномалии плаценты являются основной причиной гибели клонированных методом переноса ядер соматических клеток плодов крупного рогатого скота в первом триместре.Biol Reprod2000;63:1787–1794, с разрешения Wiley-Blackwell. Изображение любезно предоставлено доктором Джонатаном Хиллом из Квинслендского университета.
(a) (b)
(c) (d)
Рисунок 82.7Каждую исследованную плаценту после SCNT можно было отнести к одной из групп: гипоплазированная (a, 40-й день), частично развитая, с уменьшенным числом рудиментарных котиледонов (b, 45-й день), или практически нормальная (c, 50-й день). Для сравнения показана контрольная плацента (d, плацента плода, полученного методом IVMFC, на 53-й день). Воспроизведено по работе Hill J, Burghardt R, Jones Kи др.Доказательства того, что аномалии плаценты являются основной причиной гибели клонированных методом переноса ядер соматических клеток плодов крупного рогатого скота в первом триместре.Biol Reprod2000;63:1787–1794, с разрешения Wiley-Blackwell. Изображение любезно предоставлено доктором Джонатаном Хиллом из Квинслендского университета.
от коров, гомозиготных по MHC19(см. таблицу 82.3). Напротив, клеточные линии, при использовании которых наблюдалась высокая частота гибели плодов, были получены от коров, гетерозиготных по MHC, что указывает на определённую степень несовместимости.
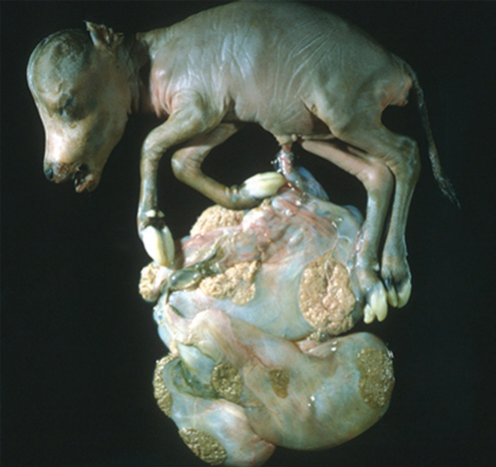
Во втором триместре беременности клонированным плодом частота самопроизвольных абортов возрастает. При полном макроскопическом и гистопатологическом исследовании абортированных плодов выявляется мало аномалий. Однако плаценты нередко имеют выраженные патологические изменения: число плодных котиледонов значительно снижено (иногда их менее 20 вместо ожидаемых 70–120)9(рисунок 82.8). Плодные оболочки обычно утолщены и отёчны.
Потери беременности в третьем триместре, особенно между 200 и 265 днями (нормальный срок родов — 280 дней), представляют собой более сложную проблему. Многие случаи гибели плодов в этот период связаны с повышенной частотой водянки аллантоиса (то есть водянки плодных оболочек) — чрезмерного накопления жидкости в различных отделах плаценты (например, g водянки аллантоиса или амниона)20и у плода (водянка плода). При умеренной или тяжёлой водянке живот заметно увеличивается из-за чрезмерного накопления жидкости (рисунок 82.9). В быстро развивающихся случаях возникает риск разрыва матки и других опасных осложнений у суррогатной коровы-реципиента, что требует немедленной эвтаназии.20Попытки «спасти»