
(a) (b)
(c) (d)
(e) (f)
(g) (h)
(i) (j)
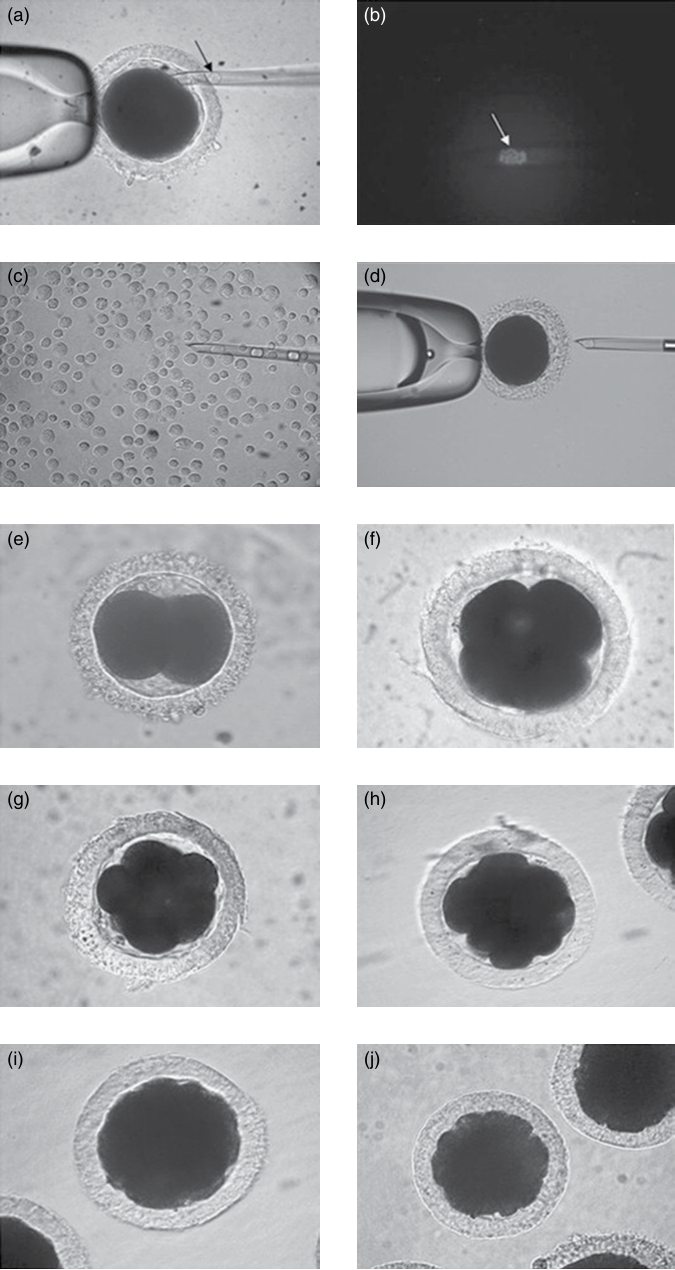
Рисунок 82.12Схематическое изображение процедуры SCNT и развития эмбрионовin vitroпри клонировании собак. Первое полярное тельце (a, стрелка) и ядро ооцита (b, стрелка) удаляют из ооцитов, созревшихin vivoс помощью аспирационной пипетки. Удаление ядра можно подтвердить окрашиванием ядерного материала (b, стрелка). Соматические клетки втягивают в микропипетку (c) и помещают в перивителлиновое пространство ооцита с удалённым ядром (d). Слившиеся пары клеток активируют и культивируют в течение 7 дней. Клонированные эмбрионы на стадиях дробления: 2-клеточный (e), 4-клеточный (f), 8-клеточный (g), 16-клеточный (h), 32-клеточный или морула (i, j). Воспроизведено по публикации Jang G, Oh H, Kim Mи соавт.«Совершенствование процедуры переноса ядра соматической клетки у собак».Theriogenology2008;69:146–154 с разрешения Elsevier.
взрослых соматических клеток лошадей. Хотя частота потерь эмбрионов и плодов сопоставима с наблюдаемой у крупного рогатого скота (потери могут достигать 75–100% в зависимости от клеточной линии), в доступной литературе не описаны случаи осложнений беременности и нарушений у потомства, связанных с водянкой и синдромом крупного потомства.21,22В большинстве случаев плаценты к концу беременности выглядят «нормальными», хотя у некоторых жеребят пуповина увеличена и отёчна.
Хотя процедура SCNT у собак поразительно похожа на применяемую у крупного рогатого скота и других видов (рисунок 82.12), невозможность получить значительное количество зрелых ооцитовin vitroобусловливает необходимость использования ооцитов, созревшихin vivo.23Помимо того, что для собак характерна моноэстральность, особую трудность при выборе стадии созревания ооцитов для SCNT создаёт их созревание в яйцеводах после овуляции: этот процесс может продолжаться в течение 48–72 часов. Несмотря на успешное получение потомства после переноса клонированных эмбрионов в яйцеводы, низкая эффективность SCNT у собак в значительной степени связана с гибелью эмбрионов и плодов на ранних стадиях. Синдром аномального потомства, по-видимому, представляет проблему при клонировании собак. Как и у крупного рогатого скота, более тяжёлые плаценты были связаны с более низкой выживаемостью.24У погибших клонированных плодов и потомства отмечены различные патологии, в том числе увеличенная мышечная масса.25
Возможные факторы низкой эффективности клонирования методом SCNT
Если учесть неизбежное физическое повреждение при проведении SCNT и сложность взаимодействия факторов в цитоплазме ооцита, от которых «ожидают» перепрограммирования соматического ядра, поистине удивительно, что из некоторых клонов развиваются здоровые животные. Ряд процедурных аспектов многочисленных микроманипуляций, необходимых для создания клонированных эмбрионов из ооцитов и соматических клеток, далёк от идеала (см. рисунок 82.3). Удаление ядерной ДНК из ооцита обычно сопровождается физическим удалением 5–15% или более ооплазмы и её воздействием химического вещества, которое в иных обстоятельствах считалось бы «вредным». При проверке результатов этой процедуры ооплазма может подвергаться воздействию ультрафиолетового излучения, которое, как показано, нарушает целостность мембран, усиливает поглощение метионина и изменяет синтез белка и активность митохондрий.26Для введения ядра соматической клетки в цитоплазму ооцита обычно используют электрически индуцированное слияние или микроинъекцию. Как бы осторожно ни выполнялась каждая из этих процедур, некоторая степень лизиса неизбежна. Кроме того, описаны различные протоколы активации клонированных эмбрионов, большинство из которых предусматривает воздействие химических веществ, в иных обстоятельствах считающихся вредными.
Кроме того, культивирование клонированных эмбрионов, полученных из ооцитов, созревшихin vitroперед переносом суррогатным самкам тоже не обходится без неблагоприятных последствий. Как и при SCNT, к осложнениям, свойственным получению эмбрионов методами IVMFC, относятся изменения экспрессии генов у эмбрионов на ранних стадиях развития и у плодов,27повышенная частота абортов (~16%),16аномалии плаценты, повышенная частота гидроаллантоиса (~1%),15увеличенная масса плодов, затруднённые роды, синдром крупного потомства и смертность (~15%),15,16,28–32хотя и с гораздо меньшей частотой (см. главу 67). Какие именно факторы SCNT усугубляют проблемы, присущие методам IVMFC, изучено недостаточно. Однако резкие различия между отдельными клеточными линиями по способности давать живое потомство после переноса ядра, причём показатели у некоторых приближаются к значениям,
достигаемым при использовании методов IVMFC (см. рисунок 82.5), указывают на неправильное или неполное перепрограммирование соматического ядра цитоплазмой ооцита. Так, характер метилирования генома в клонированных бластоцистах часто напоминает наблюдаемый в соматических клетках, что могло бы объяснить аномальную экспрессию важных для развития генов у клонированных эмбрионов и плодов.33,34
Краткие итоги и выводы
Клонирование методом SCNT бросает вызов основным принципам биологии развития. Для полноценного применения SCNT в сельском хозяйстве и медицине человека крайне необходимо повысить количество и выживаемость клонированных эмбрионов, плодов и потомства. Учитывая сложность создания эмбриона лишь из соматического ядра и цитоплазмы ооцита, вероятно, потребуются ещё многие годы исследований, прежде чем этот процесс удастся понять достаточно хорошо, чтобы улучшить результаты.
Литература
-
Wilmut I, Schnieke A, McWhir J, Kind A, Campbell K. Жизнеспособное потомство, полученное из эмбриональных и взрослых клеток млекопитающих.Nature 1997;385:810–813.
-
Briggs R, King T. Пересадка живых ядер из клеток бластулы в яйцеклетки лягушек с удалёнными ядрами.Proc Natl Acad Sci USA 1952;38:455–463.
-
McGrath J, Solter D. Пересадка ядер в эмбрионе мыши с помощью микрохирургии и слияния клеток.Science 1983;220: 1300–1302.
-
Willadsen S. Пересадка ядер в эмбрионах овец.Nature 1986;320:63–65.
-
Prather R, Barnes F, Sims M, Robl J, Eyestone W, First N. Пересадка ядер в эмбрионах крупного рогатого скота: оценка донорских ядер и реципиентных ооцитов.Biol Reprod 1987;37:859–866.
-
Stice S, Robl J. Перепрограммирование ядер в эмбрионах кролика, полученных методом переноса ядра.Biol Reprod 1988;39:657–664.
-
Prather R, Sims M, First N. Пересадка ядер в эмбрионах свиней на ранних стадиях развития.Biol Reprod 1989;41:414–418.
-
Campbell K, McWhir J, Ritchie W, Wilmut I. Овца, клонированная путём переноса ядра из культивируемой клеточной линии. Nature 1996;380: 64–66.
-
Управление по контролю качества пищевых продуктов и лекарственных средств. Клонирование животных: оценка рисков, глава V, риски для здоровья животных, 2008. http://www. fda.gov/AnimalVeterinary/SafetyHealth/AnimalCloning/ ucm124840.htm. Дата обращения: 15 января 2013 г.
-
Wells D, Misica P, Tervit H, Vivanco W. Перенос ядра взрослой соматической клетки для сохранения последней выжившей коровы породы острова Эндерби. Reprod Fertil Dev 1998;10:369–378.
-
Lanza R, Cibelli J, Diaz F и др. Клонирование исчезающего вида (Bos gaurus) с использованием межвидового переноса ядер. Cloning 2000;2:79–90.
-
Schnieke A, Kind A, Ritchie W и др. Получение трансгенных овец, продуцирующих человеческий фактор IX, путём переноса ядер из трансфицированных фетальных фибробластов. Science 1997;278:2130–2133.
-
Hill J, Burghardt R, Jones K и др. Данные о том, что аномалии плаценты являются основной причиной гибели плодов крупного рогатого скота, клонированных из соматических клеток, в первом триместре беременности. Biol Reprod 2000;63:1787–1794.
-
Hawk H. Бесплодие у молочного крупного рогатого скота. Монтклер, штат Нью-Джерси: Allanheld, Osmun and Co. Publishing, 1979.
-
Hasler J. Современное состояние методов получения ооцитов, in vitro получения эмбрионов и их пересадки у домашних животных с особым вниманием к крупному рогатому скоту. J Anim Sci 1998;76(прил. 3):52–74.
-
Hasler J, Henderson W, Hurtgen P и др. Получение, замораживание и пересадка эмбрионов крупного рогатого скота, полученных методом экстракорпорального оплодотворения, и последующие результаты отёлов. Theriogenology 1995;43:141–152.
-
Hill J, Schlafer D, Fisher P, Davies C. Аномальная экспрессия антигенов главного комплекса гистосовместимости класса I в трофобласте при беременности клонированными плодами крупного рогатого скота связана с выраженной лимфоцитарной реакцией эндометрия. Biol Reprod 2002;67: 55–63.
-
Chavatte-Palmer P, Guillomot M, Roiz J и др. Экспрессия главного комплекса гистосовместимости класса I в плаценте соматических клонов крупного рогатого скота. Cloning Stem Cells 2007;9:346–356.
-
Davies C, Hill J, Edwards J и др. Экспрессия антигенов главного комплекса гистосовместимости в плаценте крупного рогатого скота: её связь с патологическим течением беременности и задержанием последа. Anim Reprod Sci 2004;82–83:267–280.
-
Peek S. Водяночные состояния, осложняющие беременность. В кн.: Youngquist RS, Threlfall WR (ред.) Современные методы лечения в териогенологии крупных животных. Сент-Луис, штат Миссури: Saunders Elsevier, 2007, с. 428–431.
-
Galli C, Lagutina I, Duchi R, Colleoni S, Lazzari G. Перенос ядер соматических клеток у лошадей. Reprod Domest Anim 2008;43(прил. 2):331–337.
-
Lagutina I, Lazzari G, Duchi R и др. Перенос ядер соматических клеток у лошадей: влияние морфологии ооцита, метода реконструкции эмбриона и типа донорской клетки. Reproduction 2005;130:559–567.
-
Jang G, Kim M, Lee B. Современное состояние и области применения переноса ядер соматических клеток у собак. Theriogenology 2010;74: 1311–1320.
-
Oh H, Hong S, Park J и др. Повышение эффективности переноса ядер у собак при использовании фибробластов собак, обработанных росковитином. Theriogenology 2009;72:461–470.
-
Hong I, Jeong Y, Shin T и др.Морфологические аномалии, нарушения развития плода и снижение экспрессии миостатина после переноса ядер соматических клеток у собак. Mol Reprod Dev 2011;78:337–346.
-
Smith L. Влияние ультрафиолетового облучения с использованием Hoechst 33342 на мембраны и внутриклеточные структуры вторичных ооцитов крупного рогатого скота, созревших in vitro . J Reprod Fertil 1993;99:39–44.
-
Blondin P, Farin P, Crosier A, Alexander J, Farin C. In vitro получение эмбрионов изменяет уровень матричной рибонуклеиновой кислоты инсулиноподобного фактора роста II у плодов крупного рогатого скота через 63 дней после переноса. Biol Reprod 2000;62:384–389.
-
Hasler J. Получение эмбрионов крупного рогатого скота in vitro: проблемы во время беременности и родов. Hum Reprod 2000;15(доп. вып. 5): 47–58.
-
Farin P, Farin C. Перенос эмбрионов крупного рогатого скота, полученных in vivo или in vitro: выживаемость и развитие плода. Biol Reprod 1995;52:676–682.
-
Garry D, Bassel-Duby R, Richardson J, Grayson J, Neufer P, Williams R. Постнатальное развитие и пластичность специализированных характеристик мышечных волокон задней конечности. Dev Genet 1996;19: 146–156.
-
Walker S, Hartwich K, Seamark R. Рождение необычно крупного потомства после манипуляций с эмбрионами: концепции и проблемы. Theriogenology 1996;45:111–120.
-
Young L, Sinclair K, Wilmut I. Синдром крупного потомства у крупного рогатого скота и овец. Rev Reprod 1998;3:155–163.
-
Niemann H, Tian X, King W, Lee R. Эпигенетическое перепрограммирование в ходе эмбрионального и плодного развития после клонирования методом переноса ядра соматической клетки. Reproduction 2008;135:151–163.
-
Rodriguez-Osorio N, Urrego R, Cibelli J, Eilertsen K, Memili E. Перепрограммирование соматических клеток млекопитающих. Theriogenology 2012;78:1869–1886.
