
Таким образом, поскольку предотвращение загрязнения брюшной полости содержимым матки практически невозможно, рекомендуется избегать использования J-Lube в акушерских случаях, которые в конечном итоге приводят к кесареву сечению. Напротив, натрийкарбоксиметилцеллюлоза, которая является очень хорошей акушерской смазкой, не только безопасна, но и используется в жидкостях для промывания брюшной полости для минимизации спаек.15
Закрытие брюшной стенки
Закрытие брюшной стенки производится в три слоя. Брюшину и поперечную мышцу живота сшивают простым непрерывным швом, используя хромовый кетгут №2 или №3, либо синтетический полиглактин № 3 № 910. Внутренние и внешние косые мышцы живота, а также подкожную фасцию закрывают простым непрерывным швом с использованием полиглактина № 3 № 910. Я рекомендую зашивать снизу вверх, что помогает удерживать внутренние органы в брюшной полости. Сшивание кожи может быть выполнено с помощью нейлона 0,6 мм (Braunamid™) с использованием шва по выбору хирурга.1–3
Вентральный срединный доступ
Корова находится в положении лежа на спине, голова и передние конечности связаны в вытянутом положении. Живот выбрит и обработан антисептиком. Разрез по средней линии начинают сразу же от краниальной области вымени, распространяясь краниально на 5–7 см за пупок.2 После того, как кожа и подкожные ткани рассечены, делается небольшой колотый разрез по белой линии. Этот разрез является достаточно большим, чтобы пройти пальцем или пинцетом, чтобы поднять стенку тела и позволить увеличить разрез вдоль белой линии при минимальном риске проникновения в висцеральные органы. После вскрытия брюшной полости, давление вниз на стенку тела поможет подтолкнуть беременный рог матки к разрезу. Манипуляции с маткой, извлечение теленка и закрытие матки производятся так же, как описано ранее.
Закрытие белой линии и брюшины производят с помощью простого непрерывного шва или шва по схеме близко-далеко-далеко-близко (шов «ближний — дальний — дальний — ближний») с полиглактином 910 №3 (см.рисунок ниже)
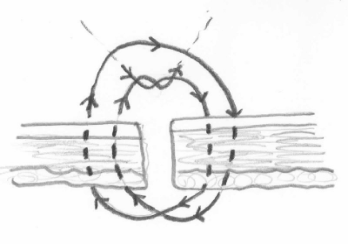
Для облегчения закрытия вдоль разреза размещают бельевые зажимы или несколько прерывистых крестообразных швов, которые помогут смягчить натяжение по мере закрытия разреза. Подкожные ткани ушивают рассасывающимся шовным материалом простым непрерывным швом. Кожа должна быть прошита 0,6 мм нейлоном (Браунамид) по схеме простого прерывистого крестообразного рисунка; непрерывные швы трудно удалить из вентрального разреза по средней линии.
Послеоперационное управление и осложнения
Осложнения после кесарева сечения включают эндотоксемию, перитонит, метрит, спайки и снижение фертильности.1–3,5 В основном эти осложнения являются результатом бактериального заражения.
Как указывалось ранее, все КС следует рассматривать как условночистые операции даже в самых лучших обстоятельствах. Следовательно, до операции следует вводить антибиотики широкого спектра действия и нестероидные противовоспалительные средства. Системные антибиотики следует применять в течение 3–5 дней после операции в зависимости от степени хирургического загрязнения. Животных с сильной эндотоксемией по определению следует лечить антимикробными препаратами еще несколько дней после разрешения эндотоксемии. Также им потребуется дополнительная поддержка сердечно-сосудистой системы внутривенной жидкостной терапией. Клинические признаки перитонита, гипертермии (пирексии) , отсутствия аппетита и кишечной непроходимости обычно проявляются через 3 дня после операции. При отсутствии этих клинических признаков антибиотики могут быть отменены. Интра-абдоминальные спайки могут снизить фертильность в будущем. Ранее в этой главе говорилось, что использование шва Утрехта и удаление кровяных сгустков с серозной оболочки матки (периметрий) значительно сократит риск образования послеоперационных спаек. Я рекомендую использовать 1 л карбоксиметилцеллюлозы до закрытия стенки тела для дополнительного снижения риска послеоперационных спаек. Послеоперационная фертильность снижается примерно на 15% по сравнению с показателями фертильности у коров, у которых не было кесарева сечения. Кроме того, в послеоперационном периоде уровень стельности может составлять от 60 до 80%.1,2
Ссылки
-
Fubini S. Хирургия матки. В: Fubini SL, Ducharme N (ред.) Хирургия сельскохозяйственных животных . Сент-Луис, MO: Saunders, 2004, с. 382–390.
-
Frazer G. Кесарево сечение. Vet Clin North Am Food Anim Pract 1995;11:19–35.
-
Turner A, McIlwraith C. Кесарево сечение у коровы. В: Turner A, McIlwraith C (ред.) Методы хирургии крупных животных . Филадельфия: Lea & Febiger, 1989, с. 318–316.
-
Mijten P, van den Bogard A, Hazen M, de Kruif A. Бактериальная контаминация плодных вод на момент кесарева сечения у коровы. Theriogenology 1997;48:513–521.
-
Newman K. Кесарево сечение у крупного рогатого скота в полевых условиях. Vet Clin North Am Food Anim Pract 2008;24:273–293.
-
Uystepruyst C, Coghe J, Dorts T и соавт. Оптимальные сроки планового кесарева сечения у крупного рогатого скота бельгийской бело-голубой породы: с точки зрения телёнка. Vet J 2002;163:267–282.
-
Probo M, Giordano A, Moretti P, Opsomer G, Fiems L, Veronesi M. Способ родоразрешения связан с различиями в гематологических показателях новорождённых телят. Theriogenology 2012;77:865–872.
-
Wenzel J, Baird A, Wolfe D, Carson R. Хирургия матки. В: Wolfe DF, Moll HD (ред.) Урогенитальная хирургия крупных животных . Балтимор: Williams & Wilkins, 1999, с. 413–433.
-
Youngquist R. Хирургическая коррекция аномалий половых органов коров. В: Youngquist RS (ред.) Современные методы лечения в териогенологии крупных животных . Филадельфия: WB Saunders, 1997, с. 429–440.
-
Frazer G, Perkins N, Constable P. Перекрут матки у крупного рогатого скота: 164 случаев направления в стационар. Theriogenology 1996;46:739–758.
-
Abrahamsen E. Анестезия жвачных животных в полевых условиях. Vet Clin North Am Food Anim Pract 2008;24:429–441.
-
Parish S, Tyler J, Ginsky J. Левосторонняя косая лапаротомия для проведения кесарева сечения у стоящих коров. J Am Vet Med Assoc 1995;207: 751–752.
-
Mijten P, de Kruif A, Van der Weyden G, Deluyker H. Сравнение кетгута и полиглактина 910 для наложения швов на матку при кесаревом сечении у коров. Vet Rec 1997;140:458–459.
-
Frazer G. Системные эффекты введения в брюшную полость лошадей акушерской смазки на основе полиэтиленового полимера. В: Материалы ежегодной конференции Общества териогенологии , 2004, с. 93–97.
-
Moll H, Wolfe D, Schumacher J, Wright J. Оценка применения карбоксиметилцеллюлозы натрия для профилактики спаек после травмы матки у овец. Am J Vet Res 1992;53:1454–1456.
-
Newman K. Кесарево сечение у крупного рогатого скота: факторы риска и исходы. В кн.: Anderson DE, Rings M (ред.) Современная ветеринарная терапия: практика лечения сельскохозяйственных животных 5 . Сент-Луис, Миссури: WB Saunders, 2009, с. 372–382.
Задержание плодных оболочек
Augustine T. Peter
Ветеринарные клинические науки, Колледж ветеринарной медицины, Университет Пердью, Уэст-Лафайет, штат Индиана, США
Вступление
Плацента, способствующая обмену веществ через эпителий между внутриутробным и материнским кровообращением, создающая плод и тесно связанная с ним, защищенная маткой и избегающая антигенного отторжения, теряет свое назначение сразу же после разрыва пуповины и удаляется после родов. Плацента крупного рогатого скота увлекла ранних фермеров, побудила многих ученых создать более 1500 документов с 1910 года1 и продолжает предоставлять вознаграждение ветеринарам во всем мире из-за своего задержания. Отсутствие выхода плаценты представляет собой задержание плаценты. Множество данных о задержке плаценты было задокументировано в учебниках по териогенологии,2–7 которые основывались на обширном клиническом опыте их авторов и информации, полученной из научных публикаций. В превосходных обзорных статьях ведущих ветеринарных клинических исследователей более ярко проиллюстрированы различные аспекты этого клинического состояния. Однако на протяжении многих лет было выдвинуто много гипотез относительно его возникновения (особенно на тканевом и клеточном уровнях), факторов риска, профилактических мер и схем лечения. Разделы этой темы включают определения, морфологию развития плаценты для лучшего понимания процесса отслойки и этиологии, патогенез, лечение и профилактику. После прочтения этой главы станет очевидным, что среди этих разделов есть много поучительных сходств.
Терминология
Фетальная часть плаценты, а именно плодная мембрана (аллантохорион), обычно отделяется от своей материнской основы в процессе родов. Процесс родов характеризуется сосудистой, сократительной и механической динамикой, направленной на удаление плода и его оболочек (аллантохориона и амниона). Фетальная и материнская части плаценты играют одинаковую роль в регуляции своевременного отделения плодной части плаценты. Следовательно, использование термина «плацента» в этой главе будет указывать на коллективную структуру, созданную маткой и плодом.
Задержка происходит главным образом из-за неспособности ворсин котиледона плода отделиться от крипт материнского карункула. Процесс разделения и инверсии аллантохориона (поверхность аллантоиса, обращенная наружу) завершается в среднем в течение 8 часов после начала родов, в зависимости от количества отелов и возраста пациента. Как правило, все части аллантохориона и амниона должны быть удалены в течение 0,5–12 часов после отела. Таким образом, задержка плодных оболочек свыше этого периода называется задержанной плацентой (последом) или, точнее, задержанными плодными оболочками (RFM), причем термин «плодные оболочки» относится как к аллантохориону, так и к амниону. Хотя для аллантохориона допускается использование понятия «плодной мембраны» (в единственном числе), во избежание путаницы здесь будет использоваться термин «аллантохорион».
Морфология развития
В настоящее время бычья плацента описывается как котиледонная синэпителиохориальная, исходя из морфологии, которая устанавливается примерно к 40–50 дням стельности. Более ранняя классификация как синдесмохориальная была основана на неправильном понимании количества и формы слоев, находящихся между кровообращением плода и матери. Эта классификация нуждалась в исправлении ввиду появления новых данных. Более раннее предположение о том, что эпителий матки утрачивается в процессе плацентации, что приводит к прямому наложению трофэктодермы на соединительную ткань матки матери, более не является верным. В настоящее время известно, что эпителий матки сохраняется, хотя первоначальный его вид в различной степени изменен на участки смешанного фетоматеринского синцития, образованного в результате миграции и слияния трофэктодермальных клеток определенного типа с эпителиальными (UE) клетками матки. Эти двуядерные/гигантские клетки трофобласта (TGC) мигрируют и модифицируют эпителий матки путем апикального слияния с образованием гибридных (смешанных) синцитиальных фетоматеринских бляшек на стыке ткани плода и матери, имеющих до восьми ядер. Эти синцитиальные бляшки заменяются посредством возобновления роста эпителиальных клеток матки к 40 дню, и впоследствии слияние TGC-UE производит только преходящий тринуклеатный минисинцитий (т.е. двуядерные клетки трофобласта у крс сливаются с материнским эпителием матки и превращаются в трехядерный минисинцитий) в течение оставшегося периода беременности.
Результаты исследований обусловили необходимость изменения морфологической терминологии плацентации и определили бычью плаценту как синэпителиохориальную. Приставка «син» указывает на вклад TGC (гигантских клеток трофобласта) в фетоматеринский синцитий и контрастирует с простой микровиллярной интердигитацией (зубчатый контакт или соединение клеток по типу "замка", когда билипидные мембраны соседних клеток вместе с участком цитоплазмы вдавливаются друг в друга, чем достигается большая поверхность соприкосновения и более прочная механическая связь) между трофобластом и маточным эпителием (эпителиохориальная) на остальной части плаценты. Понятие "котиледонная" относится к наличию локализованных областей трофэктодермальной пролиферации, образующих котиледоны в плаценте, где каждый котиледон является плодной частью плацентомы. Плацентома образована пучком ветвящихся ворсинок хориона из котиледона, которые растут и входят в соответствующие материнские карункулярные крипты, обеспечивая соединение по типу пальцев в перчатке. Эти крипты развиваются из предварительно сформированных плоских эндометриальных карункулов (рис. 49.1), присутствующих у небеременных коров, которые расположены рядами вдоль маточных рогов. Обычно плацента содержит 80–90 таких плацентом. Плацентомы связаны между собой областями плоского наложения между трофобластом и эпителием карункула (CE). Клетки СЕ сходны с клетками UE (маточного эпителия) и гомогенны по популяции в отличие от трофобласта. Плацентомы гарантируют прочное закрепление за счет дополнительной интердигитации ворсинчатых древ плода с материнскими криптами и за счет интердигитации апикальных микроворсинок на мононуклеарных ( одноядерных) клетках трофобласта (UTC) и карункулярного эпителия как напрямую через межклеточные контакты смежных клеток, так и опосредованно через внеклеточный матрикс. Во-вторых, образование плацентом с синэпителиохориальным межгемальным барьером обеспечивает значительное увеличение площади поверхности, необходимой для постоянно увеличивающегося обмена веществ между маткой и плодом. Важно отметить, что макроскомическая морфология плаценты и характер фетоматеринской взаимосвязи (архитектура ворсинок/крипт плаценты в середине и конце стельности) значительно различаются у разных видов полорогих жвачных но детальная клеточная структура материнско-плодного интерфейса (общая граница взаимодействия двух функцинальных объектов) одинакова на протяжении всей беременности.
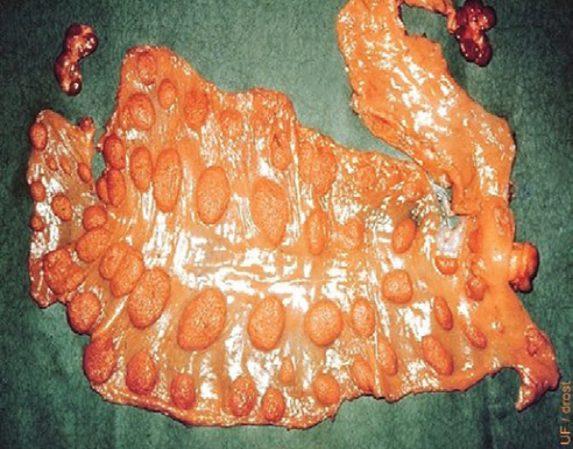
Уместно указать, что у крупного рогатого скота материнская ткань не выделяется в последе. С другой стороны, несколько ворсин плода могут застрять и остаться в материнских криптах.
Этиология
Созревание плаценты в сочетании с соответствующими структурными, эндокринологическими и иммунологическими изменениями приводит к легкому отделению и изгнанию плодных оболочек. Кроме того, сосудистые, сократительные и инволюционные изменения, которые происходят в матке до и во время родов, также помогают в отделении и изгнании плодных оболочек. Должно быть общеизвестно, что процесс созревания и своевременного отделения последа включает в себя хорошо организованную регуляцию как материнским, так и плодным компонентами плаценты.
Созревание плаценты
Установлено, что физиологические роды происходят на фоне зрелых плацентарных структур. Тот факт, что индукция родов сопровождается RFM (задержанием последа) , в большинстве случаев подтверждает наблюдение, что незрелость плацентом может быть одним из факторов, способствующих RFM, поскольку в таких случаях роды начинаются раньше срока. Также тот факт, что RFM происходил в большинстве случаев аборта, подкрепляет мнение, что зрелый плацентом является необходимым условием для отделения аллантохориона.
Эндокринные изменения
Созревание плаценты сопровождается специфическими эндокринными изменениями. Эти изменения важны для того, чтобы вызвать контрактительные (сократительные) и апоптотические события и экспрессию генов для матричных металлопротеиназ (семейство внеклеточных цинк-зависимых эндопептидаз, способных разрушать все типы белков внеклеточного матрикса) и их ингибиторов. Хотя зрелая плацента способна инициировать благоприятные стероидогенные и арахидоновые каскады, измененная экспрессия механизмов антиоксидантной защиты в этот момент может нарушить стероидогенез на клеточном метаболическом уровне. Недостаточная экспрессия антиоксидантных защитных механизмов против активных форм кислорода (АФК) может привести к дисбалансу между выработкой и нейтрализацией АФК, препятствуя правильному отделению аллантохориона.
Ближе к родам наблюдается увеличение концентраций периферического эстрадиола и менее заметные изменения уровня прогестерона. Прогестерон проникает в плацентомы, что может способствовать его "впитыванию" в плацентому, приводящему к структурным и функциональным изменениям. Эти изменения способствуют сокращению миометрия под воздействием эстрадиола наряду с другими гормонами, включая окситоцин и специфические простагландины. Важно отметить, что эти структурные изменения могут произойти только в зрелой плацентоме, которая подвергалась воздействию достаточного по продолжительности и количеству эстрадиола.
Что касается простагландинов, тип и количество продуцируемых простагландинов могут влиять на сократимость миометрия. Например, более низкое отношение простагландина (PG)E2 к PGF2α в маточноплацентарном компартменте плацентомы и повышенный статус рецептора стероидного гормона, возможно, снижает скорость апоптоза, возникающего в эпителии хориона до отела.
