
-
Gumen A, Wiltbank M. Продолжительность воздействия прогестерона, необходимая для устранения ановуляторного состояния, связанного с крупным фолликулом, у молочных коров. Theriogenology 2005;63:202–218.
-
Crane M, Bartolome J, Melendez P, deVries A, Risco C, Archbald L. Сравнение синхронизации овуляции с осеменением в установленное время и применения экзогенного прогестерона как методов лечения кист яичников у лактирующих молочных коров. Theriogenology 2006;65:1563–1574.
-
Bartolome J, Sozzi A, McHale J и др. . Повторная синхронизация овуляции и осеменение в установленное время у лактирующих молочных коров. II. Выбор протокола в зависимости от стадии полового цикла либо наличия кист яичников или анэструса. Theriogenology 2005;63: 1628–1642.
-
Bartolome J, Sozzi A, McHale J и др. . Повторная синхронизация овуляции и осеменение в установленное время у лактирующих молочных коров. III. Введение GnRH через 23 дней после искусственного осеменения и ультразвуковая диагностика отсутствия стельности на 30-й день. Theriogenology 2005;63: 1643–1658.
-
Bartolome J, Archbald L, Morresey P и др. . Сравнение синхронизации овуляции и индукции охоты как методов лечения кист яичников у молочных коров. Theriogenology 2000;53:815–825.
-
Ambrose D, Schmitt E, Lopes F, Mattos R, Thatcher W. Реакции яичников и эндокринной системы при лечении кистозных фолликулов яичников у молочных коров гонадотропин-рилизинг-гормоном и простагландином F2-альфа с применением экзогенного прогестерона или без него. Can Vet J 2004;45:931–937.
-
Palomar M, Acosta J, Salvetti N и др. . Лечение кистозной болезни яичников налоксоном у высокопродуктивных молочных коров. J Vet Pharmacol Ther 2008;31:184–186.
-
Malven P. Подавление высвобождения LH гипофизом под действием эндогенных опиоидных пептидов. Domest Anim Endocrinol 1986;3: 135–144.
-
Byerley D, Kiser T, Bedrand J, Kraeling R. Высвобождение лютеинизирующего гормона после введения налоксона телкам до наступления половой зрелости и в период ее наступления. J Anim Sci 1992;70:2794–2800.
-
Cole W, Eppard P, Boysen B и др. . Реакция молочных коров на высокие дозы бычьего соматотропина пролонгированного действия, вводимого в течение двух лактаций. 2. Здоровье и воспроизводство. J Dairy Sci 1992;75:111–123.
-
Judge L, Bartlett J, Lloyd J, Erskine R. Рекомбинантный бычий соматотропин: связь с воспроизводительной способностью молочных коров. Theriogenology 1999;52:481–496.
-
Bendixen P, Oltenacu P, Anderson L. Исследование методом «случай — контроль»: кисты яичников как показатель риска рождения двоен у молочных коров. Theriogenology 1989;31:1059–1066.
-
Emanuelson U, Bendixen P. Распространенность кист яичников у молочных коров в Швеции. Prev Vet Med 1991;10:261–271.
-
Zulu V, Penny C. Факторы риска кистозной болезни яичников у молочного крупного рогатого скота. J Reprod Dev 1998;44:191–195.
-
Johnson C. Кистозная болезнь яичников у крупного рогатого скота на молочных фермах центрального и западного Огайо: ультразвуковая, гормональная, гистологическая и метаболическая оценка . Докторская диссертация, Университет штата Огайо, 2004.
-
Cole W, Bierschwal C, Youngquist R, Braun W. Кистозная болезнь яичников в стаде коров голштинской породы: наследственная связь. Theriogenology 1986;25:813–820.
-
Uribe H, Kennedy B, Martin S, Kelton D. Генетические параметры распространенных нарушений здоровья у коров голштинской породы. J Dairy Sci 1995; 78: 421–430.
-
Garverick H. Фолликулярные кисты яичников. В кн.: Youngquist RS, Threlfall WR (ред.) Современные методы лечения в териогенологии крупных животных . Филадельфия: WB Saunders, 2007, с. 379–383.
Послеродовой анэструс у молочного скота и его менеджмент
Дивакар Дж. Амброуз
Отдел исследований животноводства, Министерство сельского хозяйства и развития сельских районов Альберты и Университет Альберты, Эдмонтон, Альберта, Канада
Введение
Послеродовый анеструс - это состояние, при котором коровы не наблюдались или не регистрировались в охоте в течение нескольких недель после отела, часто до конца периода добровольного ожидания. В то время как короткий период отсутствия овариальной активности в течение непосредственного послеродового периода является нормальным, его увеличение у некормящих коров, в частности у молочных коров, может иметь отрицательные последствия для своевременного оплодотворения.1–4 Послеродовый анэструс был признан специалистами по животным проблемой нескольких десятилетий. Согласно одному источнику,5 анэструс у крупного рогатого скота впервые был описан в качестве репродуктивной проблемы еще в 1920-х годах.6 В последние два-три десятилетия наблюдался значительный интерес к пониманию и лечению послеродового анэструса, как у мясных, так и у молочных коров.5–13 Тем не менее, данная патология по-прежнему является проблемой для практиков и фермеров молочного животноводства. В этой главе основное внимание будет уделено проблеме послеродового анэструса у молочного скота и мерам борьбы с ним, хотя, по мере необходимости будут указываться ссылки на аналогичное состояние у мясного скота.
Фертильность высокопродуктивных молочных коров
Современная молочная корова - важный вид домашнего скота, обладающий замечательной способностью производить десятки тысяч литров молока в течение своей жизни. Понятно, что прибыльность молочного животноводства тесно связана с эффективностью воспроизводства молочной коровы. Тем не менее, субоптимальная (ниже нормы) фертильность современных молочных коров является проблемой, от которой страдает молочная промышленность во всем мире14–18 , причем репродуктивная недостаточность часто является основной причиной выбраковки молочных коров.19-21 Хотя причины снижения фертильности у молочного скота будут обсуждаться и в последующие годы, важно иметь в виду, что современная молочная корова физиологически довольно сильно отличается от своих аналогов прошлых десятилетий16 , требуя новых и улучшенных стратегий управления воспроизводством для поддержания или повышения его эффективности.
Продолжительный период послеродового анэструса является одним из многих факторов, способствующих плохой репродуктивной эффективности у молочного скота. Rajala-Schultz и Gröhn22 показали, что если корова вообще не была осеменена, ее риск выбраковки был в десять раз выше, чем если бы она была осеменена хотя бы один раз. В то время как преднамеренное управленческое решение не осеменять корову из-за прошлого анамнеза могло непосредственно способствовать увеличению риска выбраковки, анэструс также мог бы повысить риск, подчеркивая важность выявления коров в охоте и своевременного их осеменения.
Распространенность и последствия
послеродового анэструса
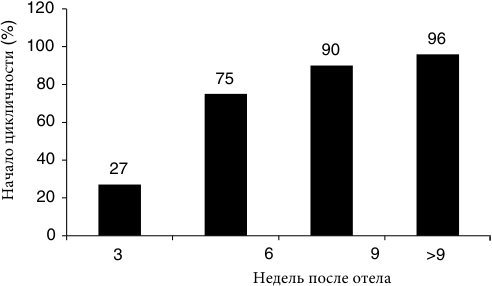
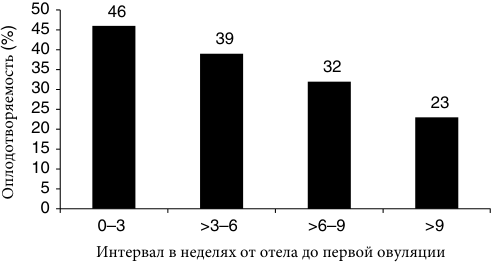
Распространенность послеродового анэструса у молочного скота является специфической для каждого стада и широко варьируется от одного стада к другому. Однако, типичный уровень заболеваемости в конце добровольного периода ожидания (60–80 дней после отела) находится в диапазоне 10–30%,23–28 тогда как в отдельных стадах отмечались более высокие показатели до 59%.16,25,27 В канадском исследовании, в котором участвовало 23 стада, у 637 коров два раза в неделю измеряли концентрации прогестерона в молоке, чтобы определить начало цикличности, начиная примерно с 7-го дня после отела и до 120 дней после отела.28 Общий интервал от отела до первого роста уровня прогестерона, указывающего на овуляцию, составил 32,0 ± 0,7 дня. Совокупный процент коров, начинающих циклировать через 3, 6, 9 и более 9 недель после отела, показан на рисунке 52.1. Хотя эти результаты могут свидетельствовать о том, что послеродовой анэструс не обязательно является огромной проблемой, поскольку 90% коров начали цикличность к 9 неделе, что является стандартным завершением периода добровольного ожидания, важно отметить, что коровы, которые инициировали цикличность в течение раннего послеродового периода, имели более высокую оплодотворяемость при первом осеменении (Рисунок 52.2). Аналогичные результаты были сообщены другими авторами.1,2,4,24,28
Наибольшее влияние послеродового анэструса - это увеличение сервиспериода, что соответственно влияет на межотельный интервал.
120
96
100 90
80 75
60
40
27
20
0
3 6 9 >9
Недель после отела
(%)Начало цикличности
50 46
45
39
40
35 32
30
25 23
20
15
10
5
0
0–3 >3–6 >6–9 >9
Интервал в неделях от отела до первой овуляции
(%)Оплодотворяемость
Рисунок 52.2 Оплодотворяемость по первому осеменению в зависимости от дней до первой послеотельной овуляции, определенной на основе повышения концентрации прогестерона в молоке. Пробы молока брали у 637 коров (23 стада) в период от 7 до 120 дней после родов или до первого осеменения. Первый рост прогестерона был показателем овуляции. У коров, у которых был первый рост прогестерона в течение 3-х недель после отела, был самый высокий (P <0,03) коэффициент зачатия по первому осеменению. Воспроизведено с разрешения Ambrose D, Colazo M. Репродуктивный статус молочных стад в Альберте: подробное рассмотрение. В: Достижения в Молочной Технологии, Труды Западно-канадского Молочного Семинара, 2007, с. 227–244.
Следует учитывать, что высокопродуктивные молочные коровы, которые не способны прийти в охоту и забеременеть вскоре после окончания периода добровольного ожидания, могут продолжать оставаться прибыльными в течение определенного периода времени, в то время как коровы с более низкой продуктивностью, которые остаются ациклическими и соответственно, нестельными в течение длительного периода, часто убыточны и становятся потенциальными претендентами на выбраковку.
Физиологические основы послеродового анэстрального периода и возобновления цикличности
Эндокринные события, ведущие к анэструсу
Во время беременности циркулирующие концентрации прогестерона и эстрогена остаются высокими, оказывая подавляющее влияние на гипоталамо-гипофизарную ось.29 Хотя концентрации периферического прогестерона в поздней беременности не намного выше, чем в середине или в начале гестационного периода,30,31 циркулирующие эстрогены прогрессивно увеличиваются начиная примерно через 60 дней после осеменения, достигая в 50-1000 раз более высоких концентраций в дни, непосредственно предшествующие родам.30,32 Непрерывное длительное воздействие высоких концентраций эстрадиола, либо само по себе, либо в сочетании с прогестероном, ингибирует секрецию гонадотропин-рилизинггормона гипоталамуса (ГнРГ), что отрицательно влияет на синтез лютеинизирующего гормона (ЛГ) и, следовательно, приводит к постепенному истощению запасов ЛГ в гипофизе. Хотя механизмы высвобождения ЛГ из передней доли гипофиза остаются неповрежденными и функциональными на протяжении всей беременности29 , отсутствие пульсирующей секреции ГнРГ из гипоталамуса, по-видимому, негативно влияет на выработку ЛГ.
В отличие от ЛГ изменения концентрации фолликулостимулирующего гормона (ФСГ) во время поздней беременности менее заметны. В то время как средние концентрации ФСГ не различаются в предродовом и послеродовом периоде30,33 , периодические подъемы и падения (всплески) ФСГ, которые обычно происходят каждые несколько дней у циклирующих и стельных коров, в основном отсутствуют30 или замедляются33 в течение последних недель, предшествующих родам. Следовательно, соответствующее появление новой фолликулярной волны также отсутствует в течение последних 30 дней до родов.33
Не смотря на то, что можно восстановить пульсирующее высвобождение ЛГ в экспериментальных условиях путем введения инъекций малых доз ГнРГ с частыми интервалами (1-2 часа), не все коровы реагируют на такое лечение. Из-за противоречивой реакции на такой подход считается, что ингибирование секреции ГнРГ, возможно, не единственный механизм, участвующий в анэструсе..5
Эндокринные события, ведущие к возобновлению цикличности
По мере приближения родов наблюдается постепенное снижение концентрации прогестерона. Напротив, концентрации эстрогена продолжают расти и достигать пика за счет двукратного увеличения в течение последних 24 часов до отела. Поскольку почти все циркулирующие эстрогены имеют плацентарное происхождение, их концентрации резко снижаются после изгнания концепта в течение 1 дня после отела.32 В отсутствие прогестерона и эстрадиола в ближайшем послеродовом периоде ось гипоталамус-гипофиз «освобождается» от подавляющего воздействия этих стероидов, что приводит к восстановлению нормальной функции генератора импульсов ГнРГ и, как следствие, к импульсному высвобождению ГнРГ, который действует на гипофиз и восстанавливает нормальный характер выделения ФСГ. Нормальные импульсы ФСГ возобновляются в течение 3-х дней после отела, вызывая появление фолликулярной волны.30 Хотя ранние стадии развития фолликула не зависят от гонадотропина, поддержка ФСГ необходима для роста фолликулов от 4 до 9 мм, а импульсы ЛГ необходимы для продолжения роста фолликулов диаметром более 9 мм.34,35
В раннем послеродовом периоде частота импульсов ЛГ остается очень низкой, обычно менее одного импульса каждые 4 часа, но впоследствии увеличивается до примерно одного-двух импульсов в час по мере увеличения пульсации ГнРГ. Восстановление функции гипофиза и повторное накопление ЛГ может занять до 3 недель или дольше в зависимости от некоторых факторов. Таким образом, когда условия для пополнения запасов ЛГ в гипофизе оптимальны, нормальная пульсирующая способность ЛГ восстанавливается, что приводит к росту и формированию доминантных фолликулов, способных продуцировать большее количество эстрадиола.
