
-
Cordes D, Carter M, Di Menna M. Микотическая пневмония, вызванная Mortierella wolfii . II. Патология экспериментальной инфекции у крупного рогатого скота. Vet Pathol 1972;9:190–193.
-
Dongyou Liu (ред.) Молекулярное выявление патогенных для человека грибов . Бока-Ратон, Флорида: CRC Press, 2011.
-
Miller R. Обзор патогенетических механизмов абортов у крупного рогатого скота. Can Vet J 1977;18:87–95.
-
McGinnis MR. Лабораторное руководство по медицинской микологии . Нью-Йорк: Academic Press, 1980.
-
Koneman E, Roberts G. Практическая лабораторная микология . Балтимор: Williams and Wilkins, 1985.
-
Hageage G, Harrington B. Применение калькофлуора белого в клинической микологии. Lab Med 1984;15:109–112.
-
Ribes JA, Vanover-Sams CL, Baker DJ. Зигомицеты при заболеваниях человека. Clin Microbiol Rev 2000;13:236–301.
-
Chengappa M, Maddux R, Greer S, Pincus D, Geist L. Выделение и идентификация дрожжей и дрожжеподобных организмов из клинических образцов в ветеринарии. J Clin Microbiol 1984;19:427–428.
Ранние эмбриональные потери вследствие теплового стресса
Peter J. Hansen
Кафедра зоотехнии, Флоридский университет, Гейнсвилл, штат Флорида, США
Сущность проблемы
Неблагоприятные изменения в материнской среде могут нарушить развитие эмбриона и привести к его гибели. Одним из наиболее важных из этих изменений является гипертермия, которая чаще всего возникает из-за теплового стресса, а также из-за пирогенов, образующихся во время воспаления. Даже небольшое повышение температуры тела может поставить под угрозу выживание эмбриона. У лактирующих молочных коров1 коэффициент зачатия снижался на 6,9–12,8% на каждые 0,5°C повышения температуры матки выше средней температуры 38,3–38,6°C. В указанном исследовании ректальная температура была примерно на 0,2°C ниже, чем температура матки1 , и поэтому можно сделать вывод, что фертильность снижается, когда ректальная температура достигает примерно 39°C. В более раннем исследовании фертильность молочных коров также снижалась при ректальных температурах 39 °C и выше.2
Потеря эмбриона, вызванная гипертермией матери, в значительной степени вызвана прямым и непрямым воздействием повышенной температуры тела на функцию ооцитов и развитие эмбриона. Окно репродуктивного процесса, когда гипертермия может вызвать потерю эмбриона, достаточно широкое. Оно начинается за 15–19 недель до овуляции, поскольку воздействие 28-дневного теплового стресса снижает способность ооцита становиться бластоцистой на протяжении 15 недель после прекращения теплового стресса,3 и продолжается до 2-3 дней после овуляции, когда предимплантационный эмбрион становится устойчивым к повышенной температуре.4–8
В этой главе основное внимание будет уделено механизмам, посредством которых тепловой стресс ставит под угрозу яйцеклетку и эмбрион, а также последствиям для стратегий управления по улучшению фертильности во время теплового стресса. На протяжении всей главы термин «тепловой стресс» будет относиться к совокупности характеристик окружающей среды, которые снижают способность животного регулировать температуру своего тела, в то время как «тепловой шок» будет относиться к влиянию повышенной температуры на клеточные функции.
Участие ооцита в эмбриональной потери
Тепловой стресс может влиять на функцию ооцитов в течение двух определенных периодов их развития. Первый - это период роста фолликулов, когда ооцит испытывает активацию, а затем "заглушает" геном ( в половых клетках, как и впоследствии в зародыше определенные белки выборочно скручивают ДНК, предотвращая преждевременное считывание генетической информации. Например, гены с информацией о расположении частей тела у эмбриона . Т.к. гены должны "включаться" в строгой последовательности, иначе эмбрион не разовьется ) , устанавливает связь с кумулюсными клетками (группа соматических клеток, обеспечивающих питание и участвующих в созревании и оплодотворении ооцитов) и синтезирует кортикальные гранулы (органеллы под наружной оболочкой яйцеклетки, препятствующие полиспермии - см.кортикальная реакция) .9 Второй период следует за овуляцией, когда яйцеклетка подвергается ядерному и цитоплазматическому созреванию при подготовке к оплодотворению и эмбриональному развитию.
Повреждение ооцитов в течение фолликулярного роста
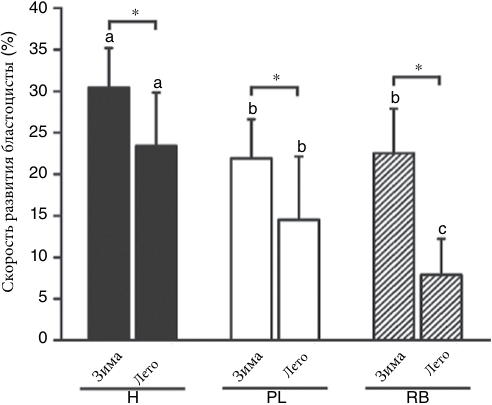
Повреждение ооцита во время роста фолликулов было продемонстрировано в экспериментах по оценке сезонных колебаний способности ооцитов (собранных при убое или с помощью аспирации под контролем УЗИ) к оплодотворению in vitro и развитию в бластоцисты. В этих экспериментах, в которых использовались лактирующие голштинские коровы, доля ооцитов, которые стали бластоцистами после оплодотворения in vitro (экстракорпорально)10–12 или химической активации13 , была ниже летом, чем зимой (см. Пример на рисунке 64.1). Сезонные влияния на формирование бластоцисты в значительной степени отражали снижение способности расщепленных (делящихся) эмбрионов развиваться, а не способность ооцитов к расщеплению. Одна из причин заключается в том, что тепловой стресс уменьшает накопление молекул в ооцитах, что важно для раннего эмбрионального развития. На самом деле, существуют различия в количестве транскриптов (молекул РНК, образующихся в результате транскрипции (экспрессии соответствующего гена или участка ДНК). Примерами транскриптов являются: мРНК, рРНК, тРНК, малые РНК) между эмбрионами, полученными путем in vitro-оплодотворения яйцеклеток, собранных летом и зимой.14 Также возможно, что ооциты летом чаще претерпевают аномальную хромосомную сегрегацию (процесс продольного расщепления хромосом на хроматиды (дочерние хромосомы) , так что получившиеся в итоге эмбрионы являются хромосомно аномальными. Появление хромосомных аномалий может негативно повлиять на скорость эмбрионального развития.15
40
a
35
30 a *
b
b
25
b
20
15
c
10
5
0
H PL RB
Зима Лето Зима Лето Зима Лето
(%)Скорость развития бластоцисты
Рисунок 64.1 Влияние сезона года в Бразилии на способность ооцитов к развитию в бластоцисту у телок голштинской породы (H), у лактирующих коров на пике лактации (PL) и у лактирующих коров, классифицируемых как повторно осемененные (RB). Ооциты собирали посредством трансвагинальной аспирации и после созревания подвергали их оплодотворению in vitro. Полученные в результате эмбрионы культивировали до стадии бластоцисты. Звездочки представляют различия в типе животных между сезонами. Буквы над каждым столбцом представляют различия между типами животных в течение отдельного сезона. Данные воспроизводятся из Ferreira R, Ayres H, Chiaratti M и др.Низкая фертильность коров с повторными безрезультатными осеменениями в период летнего теплового стресса связана с низкой способностью ооцитов развиваться до стадии бластоцисты. J Dairy Sci 2011;94:2383–2392 . с разрешения.
Нормальное развитие фолликула имеет решающее значение для овуляции яйцеклетки, способной к оплодотворению и трансформации в эмбрион, способный к успешному развитию.16,17 Тепловой стресс может изменить фолликулярную динамику, замедляя рост доминирующего фолликула и увеличивая количество фолликулов меньшего размера.3,18–20 Кроме того, тепловой стресс может снизить фолликулярные концентрации эстрадиола-17β21 и инсулиноподобного фактора роста (IGF)-1,20 при одновременном повышении фолликулярных концентраций андростендиона.21 Механизм, с помощью которого тепловой стресс изменяет развитие фолликулов, недостаточно изучен. Экспериментальные исследования показали, что тепловой стресс может уменьшить секрецию лютеинизирующего гормона (ЛГ).22,23 Также может быть прямое влияние повышенной температуры тела на синтез стероидов. При культивировании кумулюсных клеток при 40,5°C выработка эстрадиола-17β снижалась осенью, но не летом или зимой.21 В том же исследовании инкубация при 40,5°С снижала стимулируемую форсколином продукцию андростендиона текальными клетками, когда клетки собирали зимой, а не когда их собирали летом или осенью. Тепловой шок при 41°С уменьшал базальный и гонадотропинстимулированный синтез андростендиона и эстрадиола-17β культивируемыми фолликулярными стенками из доминантного фолликула.24
В некоторых случаях тепловой стресс может привести к снижению концентрации циркулирующего прогестерона25 , и такое снижение, по-видимому, может способствовать снижению компетентности ооцитов (способности к росту и норм.функции) . Эта идея основана на наблюдении, что фертильность после овуляции доминантного фолликула первой волны, когда концентрации циркулирующего прогестерона, ниже, чем фертильность после овуляции доминантного фолликула второй волны, когда концентрации прогестерона высоки.26,27
Кроме того, введение прогестерона во время первой фолликулярной волны улучшило фертильность.27
После летнего теплового стресса компетентность ооцитов к фертильности28,29 и к химически активированному развитию постепенно восстанавливается.30 Эти наблюдения говорят о том, что тепловой стресс может влиять на развитие фолликула в начале 16недельного периода, в течение которого первичный фолликул достигает доминирования.31 Действительно, есть экспериментальные данные о замедленном воздействии теплового стресса на функцию фолликула и ооцита. В одном исследовании32 воздействие теплового стресса на лактирующих голштинов повлияло на выработку фолликулярных стероидов через 20–26 дней. Эксперимент на коровах породы Гир (Bos indicus) показал, что эффект от перенесенного теплового стресса может продолжаться до 133 дней после его начала (то есть, в течение 105 дней после окончания теплового стресса).3 Коровы подвергались тепловому стрессу в течение 28 дней, а ооциты аспирировались и подвергались созреванию и оплодотворению in vitro с недельными интервалами в течение до 133 дней после начала теплового стресса. Тепловой стресс не влиял на динамику фолликулов в течение 28-дневного периода теплового стресса, но увеличивал диаметр первого и второго по величине фолликулов, а также количество фолликулов более 9 мм с 28 по 49 день после начала теплового стресса. Более того, процент ооцитов, которые стали бластоцистой, был снижен тепловым стрессом даже в конце эксперимента через 133 дня после начала теплового стресса (рис. 64.2).
Созревание ооцитов
Ооцит остается подверженным разрушительному воздействию теплового стресса в процессе ядерного и цитоплазматического созревания, совпадающего с овуляцией. Тепловой стресс у суперовулированных телок в течение 10-часового периода, начинающегося в начале эструса и до осеменения через 15–20 часов после начала эструса, приводил к сокращению доли выращенных на 7-й день после эструса эмбрионов, которые были классифицированы как нормальные.33 Тепловой стресс не влиял на уровень оплодотворяемости, таким образом поврежденные ооциты давали начало эмбрионам с ограниченной способностью к развитию. Некоторые эффекты теплового стресса на функцию ооцитов во время их созревания могут быть вызваны изменениями в секреции гормонов, потому что тепловой стресс снижает величину преовуляторного всплеска ЛГ и эстрадиола-17β.23,34 Кроме того, воздействие повышенной температуры может вызвать нарушения в созревании ооцитов. В результате культивирования ооцитов при повышенных температурах во время созревания уменьшалась доля ооцитов, завершивших ядерное созревание, увеличивалась доля с аномальным формированием веретена деления, распределением кортикальных гранул, деполяризованными митохондриями и апоптотическими пронуклеусами и уменьшалась доля ооцитов, которые расщеплялись и становились бластоцистой после оплодотворения.35-40 Апоптоз был замешан в нарушении функции ооцитов в период созревания. Ингибирование апоптоза с помощью ингибитора каспазы36 , сфингозин-1-фосфата41 или ингибитора синтеза церамида42 уменьшило влияние теплового шока на компетентность ооцита к развитию. Есть также признаки того, что последствия теплового шока включают ускорение созревания и старение яйцеклетки. Выдерживание ооцитов при 41°C в течение первых 12 часов созревания ускорило как ядерное, так и цитоплазматическое созревание.43 Кроме того, можно избежать пагубного воздействия теплового шока на развитие, если ооциты оплодотворяют на 19 час созревания вместо 24 часов43 или используют химическую активацию в качестве триггера (запуска) развития.44
