
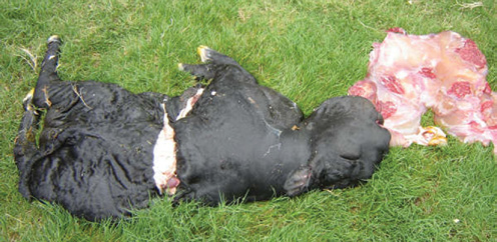
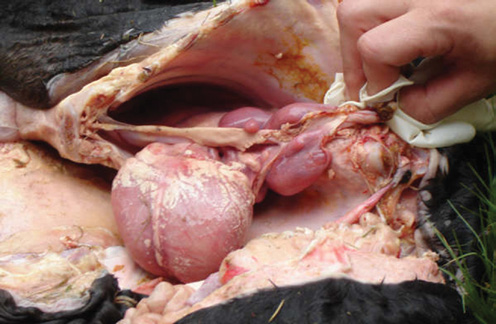
Мутация у Мэн-Анжу была простой точечной мутацией, тогда как мутация у декстера была делецией длиной 84 п.н. (пар нуклеотидов) с участием того же экзона, что и мутация Мэна (личное сообщение J. Beever).
Рецессивные дефекты, обнаруживаемые при
отсутствии гомозиготных гаплотипов
Летальные рецессивные дефекты прежде часто обнаруживались на основании сообщений об аномальных состояниях телят и последующих исследований по скрещиванию для подтверждения наследования. Дефекты, влияющие на потерю эмбрионов, иногда выявляли у единичных аномальных телят, достигших позднего гестационного срока или родов31,35 , или в результате физиологических различий между нормальным и гетерозиготным фенотипами.70 Вместо того, чтобы полагаться на сообщения заводчиков об аномалиях, эмбриональные дефекты легче обнаружить с помощью признаков фертильности и генотипов, хранящихся в национальных или международных базах данных.71
Генотипы и гаплотипы большого числа особей предоставляют новый инструмент для идентификации летальных рецессивных генов. Дефекты, вызывающие гибель эмбриона, трудно обнаружить без геномных данных, даже с очень большими наборами фенотипических и родословных данных, из-за недостаточного количества наблюдений за предполагаемой взаимосвязью.72
С помощью геномных данных могут быть обнаружены летальные рецессивы по гаплотипам, которые распространены в популяции, но никогда не встречаются в гомозиготном состоянии у живых животных. Этот метод требует генотипы только от явно нормальных особей, а не от пораженных эмбрионов, и поэтому является противоположностью большинству предыдущих стратегий.73 Новый подход позволяет обнаруживать летальные дефекты без фенотипических данных. Если число генотипированных особей велико, ожидаемое число гомозиготных гаплотипов тоже достаточно велико, так что их полное отсутствие вряд ли можно отнести к случайности.
Пять новых рецессивных дефектов были обнаружены у голштинской, джерсейской и бурой швицкой пород путем изучения гаплотипов, которые имели высокую популяционную частоту, но никогда не были гомозиготными. Генотипы с помощью BovineSNP50 BeadChip (Illumina, San Diego, CA) (набор микрочипов для генотипирования, т.е. сравнения генотипов) были исследованы у 58 453 голштинов, 5288 джерсеев и 1991 бурых швицов - явно нормальных особей, чьи генотипы сохранены в североамериканской базе данных. Фенотипические эффекты были подтверждены с использованием данных об оплодотворяемости у небольшой популяции коров подверженных риску пород. Расчетное влияние на частоту зачатия варьировалось от –3,0 до –3,7 процентных пункта (разница процентов) , что было немного больше, чем предполагаемые эффекты для ранее известных летальных аллелей, составлявшие –2,5 процентных пункта для брахиспины и –2,9 процентных пункта для CVM.74 Расчетное влияние воздействия носителей на частоту мертворождений было небольшим (≤1,8 процентных пункта), но сопоставимо с эффектом CVM (1,4 процентных пункта).74 Для каждого из пяти новых дефектов 2,7–20,7% элитных животных в нынешней популяции являются носителями. Но исключение носителей из селекционной программы лишь незначительно улучшит рождаемость. Например, если какойлибо из гаплотипов будет исключен из популяции, то уровень зачатия увеличится менее чем на 1 процентный пункт.74
Большеберцовая гемимелия
Синдром большеберцовой гемимелии (TH) был впервые описан в 1951 году в Шотландии у галлоуэйской породы крупного рогатого скота.75 Это летальное заболевание характеризуется множественными врожденными деформациями скелета, в первую очередь укорочением или отсутствием большеберцовой кости, абдоминальной грыжей, крипторхизмом, нарушением развития парамезонефрального (Мюллерова) протока, гирсутизмом (избыточный рост терминальных волос) и неправильным закрытием нервной трубки, приводящим к менингоцеле (спинномозговой грыже) . Телята рождаются мертвыми или умирают вскоре после рождения. Шотландская ассоциация галлоуэйского скота использовала тестовое скрещивание и прерывание стельности для выявления носителей и устранения аутосомно-рецессивного дефекта у племенного поголовья породы.76
Синдром был впервые описан в США в 1974 г.,77 а затем был описан случай с симментальской телкой с артрогрипозом, вентральной грыжей живота, ТН и несросшимися парамезонефральными протоками, с предположением, что это могло быть генетическим заболеванием.78 Десять лет спустя TH был идентифицирован у шести генетически связанных зарегистрированных телят шортгорнской породы: трех из США и трех из Канады.79 Хотя скелетные аномалии были разными, сочетание TH, абдоминальной грыжи и менингоцеле было поразительно похоже на ранее описанное состояние и было определено, что оно наследуется как аутосомно-рецессивный признак у голлоуэйского скота. Анализ родословной телят шортгорнов показал, что причиной дефекта была гомозиготность по аутосомно-рецессивному аллелю.
Идентификация дефектной генной мутации, вызывающей ТН, была произведена в 2005 году.80 Было показано, что дефектный ген представляет собой гомеобокс-ген (ALX4 — гомеобокс, подобный aristaless 4 ) и является важным транскрипционным фактором эмбрионального развития черепа и конечностей, главным регулятором формирования задних конечностей (J. Beever, личное сообщение). Делеция удаляет приблизительно одну треть гена ALX4, включая вышестоящую регуляторную последовательность, и затрагивает приблизительно 46 т.п.н. После идентификации начальной делеции было отмечено, что, хотя происхождение некоторых телят с TH было проверено ДНКтестированием, у некоторых родителей не было положительных результатов теста на эту делецию. Дополнительные исследования показали, что другие носители TH обладают делецией более 450 kb, которая перекрывает предыдущую/меньшую делецию и удаляет четыре гена, включая ALX4. Более поздняя и более крупная делеция встречается редко, и затронутые телята, являющиеся потомками носителей этой делеции, являются составными гетерозиготами (гетерозиготами с меньшей мутацией на одной хромосоме и более крупной мутацией на другой). Несмотря на то, что они «гетерозиготны», эти телята поражаются так же, как и гомозиготные с меньшей делецией. Частота более крупной мутации настолько низка, а величина делеции настолько велика, что маловероятно, чтобы были какие-либо телята с TH, гомозиготные по большей делеции. Поскольку образцы шотландского галлоуэйского крупного рогатого скота недоступны для тестирования, неясно, происходят ли более мелкие или более крупные делеции у шортгорнов от породы галлоуэй или являются разными мутациями.
Заключение
В последние годы было выявлено несколько наследственных дефектов, оказавших значительное влияние на определенные популяции крупного рогатого скота. Молекулярные генетики, ветеринарные патологи, заводчики и ассоциации пород совместно выявили генетические нарушения, охарактеризовали патологию, определили ответственные генетические мутации и разработали тесты для выявления носителей. В самом ближайшем будущем вполне вероятно, что генетические мутации в других наследственных врожденных дефектах крупного рогатого скота будут идентифицированы с помощью аналогичных совместных усилий. Хотя исследование наследственных аномалий плода крупного рогатого скота часто оставалось на усмотрение академиков (в частности, зоотехников и ветеринарных патологов), многие из признанных в настоящее время наследственных заболеваний крс остались бы незамеченными без помощи частных практикующих врачей и фермеров. Для успеха любой программы эпиднадзора первым шагом является распознавание потенциально наследственного дефекта. Необходимо сообщить об аномалии, собрать и сохранить соответствующие образцы, а также предоставить информацию о родословной. Полевые ветеринары могут сыграть ключевую роль в обнаружении и надзоре, распознавая наследственные дефекты крупного рогатого скота и сообщая о них.
Ссылки
-
Лейпольд Х., Хьюстон К., Деннис С. Врождённые пороки у крупного рогатого скота. Adv Vet Sci Comp Med 1983;27:197–271.
-
Хьюстон К., Саперстейн Г., Стеффен Д. и др. Локусы клинических, патологических и других видимых признаков, кроме окраса шерсти (категория 2). В кн.: Ловернь Ж. Ж., Доллинг К. Х. С., Миллар П. (ред.) Менделевское наследование у крупного рогатого скота. Вагенинген: Wageningen Academic Publishers, 2000.
-
Уитлок Б., Кайзер L, Максвелл Х. Наследственные аномалии плода у крупного рогатого скота. Theriogenology 2008;70:535–549.
-
Николас Ф. У. Генетические базы данных: онлайн-каталоги наследственных нарушений. Rev Sci Tech 1998;17:346–350.
-
Американская ассоциация ангусов. Информация о множественном артрогрипозе. Американская ассоциация ангусов, Сент-Джозеф, Миссури, 2010. http://www.angus.org/pub/AM/AMInfo.aspx
-
Кайзер L. Специалисты по генетике в этом десятилетии не сидели без дела: рецессивный дефект, мутации и тесты на основе ДНК. http://kaisercattle. com/pdf/Deadcows.pdf.
-
Дрёгемюллер К., Тетенс Й., Сигурдссон С. и др. Выявление мутации, вызывающей арахномелию у крупного рогатого скота, методом массового параллельного секвенирования указывает на роль сульфитоксидазы (SUOX) в развитии костей. PLoS Genet 2010;6:e1001079.
-
Кискер К., Шинделин Х., Пачеко А. и др. Молекулярная основа дефицита сульфитоксидазы, установленная по структуре этого фермента. Cell 1997;91:973–983.
-
Гарретт Р., Джонсон Дж., Граф Т., Фейгенбаум А., Раджагопалан К. Сульфитоксидаза человека R160Q. Выявление мутации у пациента с дефицитом сульфитоксидазы, экспрессия и характеристика мутантного фермента. Proc Natl Acad Sci USA 1998;95:6394–6398.
-
Джонсон Дж., Койн К., Гарретт Р. и др. Изолированный дефицит сульфитоксидазы: выявление 12 новых мутаций SUOX у 10 пациентов. Hum Mutat 2002;20:74.
-
Сейдахмед М., Альямани Э., Рашед М. и др. Полное усечение молибдоптеринового и димеризационного доменов белка SUOX в арабской семье с изолированным дефицитом сульфитоксидазы. Am J Med Genet A 2005;136:205–209.
-
Buitkamp J, Luntz B, Emmerling R и др. Синдром арахномелии у симментальского крупного рогатого скота. BMC Vet Res 2008;4:39.
-
Buitkamp J, Semmer J, Gotz K. Синдром арахномелии у симментальского крупного рогатого скота вызван гомозиготной делецией длиной 2 п. н. в гене 1-го этапа синтеза молибденового кофактора (MOCS1). BMC Genet 2011;12:11.
-
Harper P, Healy P, Dennis J, O’Brien J, Rayward D. Цитруллинемия как причина неврологического заболевания у новорождённых телят фризской породы. Aust Vet J 1986;63:378–379.
-
Healy P, Dennis J, Camilleri L, Robinson J, Stell A, Shanks R. Происхождение цитруллинемии крупного рогатого скота прослежено до отца быка Linmack Kriss King. Aust Vet J 1991;68:155.
-
Healy P. Тестирование крупного рогатого скота на нежелательные признаки: взгляд из Австралии. J Anim Sci 1996;74:917–922.
-
Healy P, Harper P, Dennis J. Цитруллинемия крупного рогатого скота: клиническое, патологоанатомическое, биохимическое и генетическое исследование. Aust Vet J 1990;67: 255–258.
-
Windsor P, Agerholm J. Наследственные заболевания австралийского голштино-фризского крупного рогатого скота. Aust Vet J 2009;87:193–199.
-
Gregory P, Rollins W, Pattegnale P и др. Фенотипическое проявление гомозиготной карликовости у мясного крупного рогатого скота. J Anim Sci 1951; 10:922–933.
-
Johnson L, Harshfield G, McCone W. Карликовость — наследственный дефект у мясного крупного рогатого скота. J Hered 1950;41:177–181.
-
Baker M, Blunn C, Plum M. «Карликовость» у крупного рогатого скота абердин-ангусской породы. J Hered 1951;42:141–143.
-
Wild P, Rowland A. Системный дефект хрящевой ткани у телёнка. Vet Pathol 1978;15:332–338.
-
Jones J, Jolly R. Карликовость у крупного рогатого скота герефордской породы: генетическое, морфологическое и биохимическое исследование. NZ Vet J 1982;30:185–189.
-
Horton W, Jayo M, Leipold H и др. Ахондрогенез у крупного рогатого скота: данные о нарушении дифференцировки хондроцитов. Bone 1987; 8:191–197.
-
Agerholm J. Наследственные нарушения у крупного рогатого скота в Дании. APMIS 2007; 115(доп. выпуск 122):1–76.
-
Seligmann C. Кретинизм у телят. J Pathol Bacteriol 1904;9: 311–322.
-
Cavanagh J, Tammen I, Windsor P и др. Бульдожья карликовость у крупного рогатого скота породы декстер вызвана мутациями в гене ACAN. Mamm Genome 2007;18:808–814.
-
Evans K. Исторический путь ангусской породы: Американская ассоциация ангусов 1883–2000 . Сент-Джозеф, штат Миссури: American Angus Association, 2001.
-
Mishra B, Reecy J. Мутации в гене limbin, ранее связывавшиеся с карликовостью у японского бурого крупного рогатого скота, не являются причиной карликовости у крупного рогатого скота американской ангусской породы. Anim Genet 2003;34:311–312.
-
Koltes J, Mishra B, Kumar D и др. Нонсенс-мутация в гене цГМФ-зависимой протеинкиназы II типа (PRKG2) вызывает карликовость у крупного рогатого скота американской ангусской породы. Proc Natl Acad Sci USA 2009;106:19250–19255.
-
Agerholm J, McEvoy F, Arnbjerq J. Синдром брахиспины у телёнка голштинской породы. J Vet Diagn Invest 2006;18:418–422.
-
Agerholm J, Peperkamp K. Семейные случаи синдрома брахиспины крупного рогатого скота в Дании и Нидерландах. BMC Vet Res 2007;3:8.
-
Testoni S, Diana A, Olzi E, Gentile A. Синдром брахиспины у двух телят голштинской породы. Vet J 2008;177:144–146.
-
Mohr O, Wriedt C. Короткопозвоночность — новый рецессивный летальный признак у крупного рогатого скота; сравнение деформаций скелета у короткопозвоночных телят и телят с редукцией конечностей. J Genet 1930;22:279–297.
-
Agerholm J, Bendixen C, Andersen O, Arnbjerg J. Комплексная аномалия позвоночника у телят голштинской породы. J Vet Diagn Invest 2001;13:283–289.
-
Agerholm J, Andersen O, Almskou M и др. Оценка наследования синдрома комплексного порока развития позвоночника в селекционных исследованиях. Acta Vet Scand 2004;45:133–137.
-
Nielsen U, Aamand G, Andersen O, Bendixen C, Neilsen V, Agerholm J. Влияние комплексного порока развития позвоночника на показатели фертильности у голштинского скота. Livestock Prod Sci 2003;79: 233–238.
-
Duncan R, Carrig C, Agerholm J, Bendixen C. Комплексный порок развития позвоночника у голштинского телёнка: описание случая в США. J Vet Diagn Invest 2001;13:333–336.
-
Revell S. Комплексный порок развития позвоночника у голштинского телёнка в Великобритании. Vet Rec 2001;149:659–660.
-
Wouda W, Visser I, Borst G, Vos J, Zeeuwen A, Peperkamp N. Аномалии развития у абортированных и мертворождённых телят в Нидерландах. Vet Rec 2000;147:612.
-
Nagahata H, Oota H, Nitanai A и др. Комплексный порок развития позвоночника у мертворождённого голштинского телёнка в Японии. J Vet Med Sci 2002;64:1107–1112.
-
Thomsen B, Horn P, Panitz F и др. Миссенс-мутация в гене крупного рогатого скота SLC35A3, кодирующем переносчик UDP-N-ацетилглюкозамина, вызывает комплексный порок развития позвоночника. Genome Res 2006;16:97–105.
-
Denholm L. Врождённая контрактурная арахнодактилия («синдром оленёнка») у скота ангусской породы. Правительство Нового Южного Уэльса, Департамент первичных отраслей промышленности, сельское хозяйство. 2010. Доступно по адресу http://www.dpi.nsw.gov.au/agriculture/livestock/health/ specific/cattle/ca-angus
-
Американская ассоциация ангусов. Обновлённая информация о синдроме оленёнка. Американская ассоциация ангусов, Сент-Джозеф, штат Миссури, 2010. https:// www.angus.org/pub/CA/CAInfo.aspx
-
Steffen D, Beever J. Обновлённая информация о синдроме оленёнка по состоянию на 21 декабря 2009 г. Американская ассоциация ангусов, Сент-Джозеф, штат Миссури, 2009. https://www.angus.org/Pub/CA/FC_Notice_122109.aspx
-
Fasquelle C, Sartelet A, Li W и др. Балансирующий отбор мутации со сдвигом рамки считывания в гене MRC2 объясняет вспышку синдрома искривлённого хвоста у скота бельгийской голубой породы. PLoS Genet 2009;5(9):e1000666.
-
Sartelet A, Klingbeil P, Franklin C и др. Аллельная гетерогенность синдрома искривлённого хвоста: результат балансирующего отбора? Anim Genet 2012;43:604–607.
-
Ghanem M, Nakao T, Nishibori M. Дефицит уридинмонофосфатсинтазы (DUMPS) и делеция X-хромосомы при мумификации плодов у крупного рогатого скота. Anim Reprod Sci 2006;91:45–54.
-
Shanks R, Dombrowski D, Harpestad G, Robinson J. Наследование уридинмонофосфатсинтазы у молочного скота. J Hered 1984;75:337–340.
-
Kuhn M, Shanks R. Связь дефицита уридинмонофосфатсинтазы с продуктивностью и воспроизводством. J Dairy Sci 1994;77:589–597.
-
Shanks R, Greiner M. Связь генетической ценности голштинских быков с дефицитом уридин-5′-монофосфатсинтазы. J Dairy Sci 1992;75:2023–2029.
-
Jones M. Биосинтез пиримидиновых нуклеотидов у животных: гены, ферменты и регуляция биосинтеза UMP. Annu Rev Biochem 1980;49:253–279.
-
Schwenger B, Tammen I, Aurich C. Выявление гомозиготного рецессивного генотипа, обусловливающего дефицит уридинмонофосфатсинтазы, методом ДНК-типирования эмбрионов крупного рогатого скота, полученных in vitro. J Reprod Fertil 1994;100:511–514.
-
Gundlach A, Dodd P, Grabara C и др. Дефицит глициновых/стрихниновых рецепторов спинного мозга при наследственной миоклонии у телят комолой герефордской породы. Science 1988;241:1807–1810.
-
Gundlach A. Нарушение функции тормозного глицинового рецептора: наследственная миоклония у телят комолой герефордской породы. FASEB J 1990;4: 2761–2766.
-
Pierce K, Handford C, Morris R и др. Нонсенс-мутация в альфа1-субъединице тормозного глицинового рецептора, связанная с миоклонией у крупного рогатого скота. Mol Cell Neurosci 2001;17:354–363.
-
Couldrey C, Lee R. Профили метилирования ДНК в тканях плодов крупного рогатого скота на середине срока беременности, полученных методом переноса ядра соматической клетки, указывают на незначительные нарушения ядерного репрограммирования. BMC Dev Biol 2010;10:27.
-
Doornbos M, Sikkema-Raddatz B, Ruijvenkamp C и др. Девять пациентов с микроделецией 15q11.2 между точками разрыва 1 и 2 критической области синдрома Прадера — Вилли, возможно связанной с поведенческими нарушениями. Eur J Med Genet 2009;52:108–115.
-
Flisikowski K, Venhoranta H, Bauersachs S и др. Усечение гена MIMT1 в домене PEG3 приводит к значительным изменениям экспрессии генов в плаценте и мертворождению у крупного рогатого скота. Biol Reprod 2012;87:140.
-
Американская ассоциация ангусского скота. Информационный бюллетень о нейропатической гидроцефалии (NH). Американская ассоциация ангусского скота, Сент-Джозеф, Миссури, 2010. http://www.angus.org/pub/nh/nhfactsheet.pdf
-
Beever J. Новые сведения о нейропатической гидроцефалии у крупного рогатого скота. Американская ассоциация ангусского скота, Сент-Джозеф, Миссури, 2009. http:// www.angus.org/nh_summary.pdf
-
Nietfeld J. Остеопетроз у телят. Диагностические материалы, Диагностическая лаборатория штата Канзас, Манхэттен, Канзас, 2007.
-
Meyers S, McDaneld T, Swist S и др. Делеционная мутация в гене SLC4A2 крупного рогатого скота связана с остеопетрозом у животных породы красный ангус. BMC Genomics 2010;11:337.
-
Testoni S, Militerno G, Rossi M, Gentile A. Врожденные деформации лицевого отдела головы, асцит и фиброз печени у телят романьольской породы. Vet Rec 2009;164:693–694.
-
Testoni S, Bartolone E, Rossi M и др. KDM2B причастен к летальной многоорганной дисплазии развития у крупного рогатого скота. PLoS ONE 2012;7:e45634.
-
Fukuda T, Tokunaga A, Sakamoto R, Yoshida N. Дефицит Fbxl10/Kdm2b ускоряет гибель нейральных клеток-предшественников и приводит к экзэнцефалии. Mol Cell Neurosci 2011;46:614–624.
-
Windsor P, Cavanagh J, Tammen I. Водянка плода, связанная с гипоплазией легких, у телят породы декстер. Aust Vet J 2006; 84:278–281.
-
Agerholm J, Arnbjerg J. Синдром гипоплазии легких и анасарки у теленка породы опоясанный галловей. Vet Rec 2011;168:190.
-
Steffen D. Врожденные пороки развития крупного рогатого скота, вызывающие обеспокоенность в настоящее время. В: 25-й ежегодный форум Американского колледжа ветеринарной внутренней медицины, Сиэтл, Вашингтон , 2007, с. 241–242.
-
Shanks R, Robinson J. Эмбриональная смертность, обусловленная наследственным дефицитом уридинмонофосфатсинтазы. J Dairy Sci 1989;72:3035–3039.
