
-
Veerkamp R, Beerda B. Применение генетики и геномики для повышения плодовитости высокопродуктивных молочных коров. Theriogenology 2007;68:S266–S273.
-
VanRaden P, Miller R. Влияние неаддитивных генетических взаимодействий, инбридинга и рецессивных дефектов на гибель эмбрионов и плодов до семидесятого дня. J Dairy Sci 2006;89:2716–2721.
-
Charlier C, Coppieters W, Rollin F и др. Высокоэффективное картирование ассоциаций на основе SNP и управление рецессивными дефектами у сельскохозяйственных животных. Nature Genet 2008;40:449–454.
-
VanRaden P, Olson K, Null D, Hutchinson J. Вредное влияние рецессивных генов на плодовитость, выявленное по отсутствию гомозиготных гаплотипов. J Dairy Sci 2011;94:6153–6161.
-
Young G. Случай гемимелии большеберцовой кости у крупного рогатого скота. Br Vet J 1951; 107:23–28.
-
Pollock D, Fitzsimons J, Deas W, Fraser J. Прерывание беременности как метод борьбы с синдромом гемимелии большеберцовой кости у крупного рогатого скота галловейской породы. Vet Rec 1979;104:258–260.
-
Ojo S, Guffey M, Saperstein G, Leopold H. Гемимелия большеберцовой кости у телят галловейской породы. J Am Vet Med Assoc 1974;165:548–550.
-
Ko J, Evans L, Haynes J. Множественные врожденные пороки у телочки: описание случая. Theriogenology 1990;34:181–187.
-
Lapointe J, Lachance S, Steffen D. Гемимелия большеберцовой кости, менингоцеле и брюшная грыжа у крупного рогатого скота шортгорнской породы. Vet Pathol 2000;37:508–511.
-
Marron B, Thurnau G, Hannon C, Beever J. Картирование локуса, вызывающего гемимелию большеберцовой кости (TH) у крупного рогатого скота шортгорнской породы. В: «Геномы растений и животных XIII», Сан-Диего, Калифорния , 2005.
Синдром аномального потомства*
Charlotte E. Farin, Callie V. Barnwell и William T. Farmer
Кафедра зоотехнии, Университет штата Северная Каролина, Роли, Северная Каролина, США
Использование эмбриональных биотехнологий в
скотоводстве
Развитие нехирургических методов переноса эмбрионов1–3 привело к созданию индустрии эмбриотрансфера в скотоводстве в 1970-х и 1980-х годах. При нехирургическом переносе эмбрионов ценные самки крупного рогатого скота суперовулируют после обработки препаратами, содержащими фолликулостимулирующий гормон (ФСГ), затем их оплодотворяют путем искусственного осеменения (ИО), после чего подвергают нехирургическому промыванию матки, обычно через 7 дней после осеменения, для извлечения эмбрионов в стадии развития морулы и бластоцисты. В среднем от коровы-донора получают от пяти до семи эмбрионов, а затем отдельные эмбрионы без хирургического вмешательства переносят самкам-реципиентам, которые донашивают их до срока. В 1997 г. ежегодно пересаживалось примерно 360 000 эмбрионов крупного рогатого скота, произведенных in vivo, в основном от суперовулированных коров-доноров. К 2001 году это число возросло до 452 546,4,5 а за десятилетие между 2001 и 2011 годами количество коммерческих переносов эмбрионов крупного рогатого скота, произведенных in vivo, примерно стабилизировалось, составляя в среднем около 550 000 переносов ежегодно во всем мире.5,6
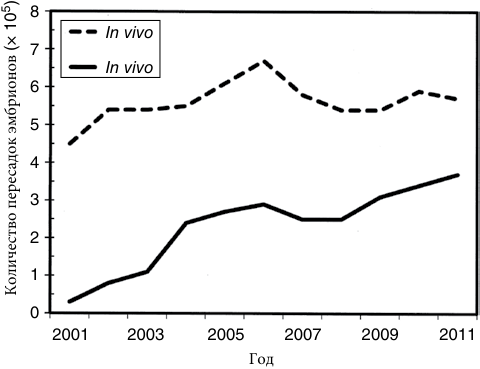
С развитием систем для производства эмбрионов крупного рогатого скота in vitro или в лаборатории, в результате коммерческого переноса эмбрионов, полученных in vitro (IVP - полученные in vitro ), были получены сотни тысяч телят. С 2001 по 2011 год количество ежегодно пересаживаемых коммерческих IVP-эмбрионов крупного рогатого скота выросло более чем в 10 раз, с 30 260 переносов в 2001 году до 373 869 в 2011 году (Рисунок 67.1).5,6 Таким образом, производство и перенос эмбрионов крс in vitro в настоящее время представляет собой активно растущий сегмент коммерческой индустрии эмбриотрансфера. Преимущества использования систем производства эмбрионов in vitro включают в себя возможность производить эмбрионы от ценных самок крупного рогатого скота, яйцеводы или матка которых могли быть повреждены из-за болезни или дистоции, а также возможность оплодотворять ооциты из одной коллекции самки-донора разными быками. Кроме того, использование пересадки IVP-эмбрионов является эффективным методом повышения уровня стельности у дойных коров, подвергшихся летнему тепловому стрессу, по сравнению с таковым после ИО.7–9
Производство эмбрионов крупного рогатого скота in vitro также является ключевой технологией, поддерживающей применение более совершенных эмбриональных технологий, таких как перенос генов и перенос ядер соматических клеток (SCNT). С коммерческой точки зрения клонированный крупный рогатый скот был разработан в качестве биореакторов для производства биофармацевтических препаратов, важнейших компонентов крови человека и модифицированных компонентов молока.10–14 Кроме того, генетическая модификация посредством переноса ядра использовалась для изучения функции и важности отдельных генов и их участия в болезнях, источников их развития и других физиологических процессах как у крупного рогатого скота, так и у свиней.15-19 SCNT также был предложен в качестве потенциальной технологии, которая может быть применена для спасения исчезающих или вымерших видов.20,21
Распознавание влияния манипуляций с эмбрионом на
развитие потомства
Манипуляции с эмбрионами крупного рогатого скота стали реальностью с развитием методов извлечения и переноса эмбрионов. Как отмечалось выше, развитие коммерческой индустрии эмбриотрансфера в скотоводстве последовало вскоре за внедрением нехирургических методов пересадки эмбрионов.1–3 Эмбрионы крупного рогатого скота, полученные от донорских маток, затем могут быть обработаны в лаборатории (in vitro) до их передачи самкамреципиентам. Первоначально эмбрионы проводили мало времени в лаборатории между переносами, но по мере разработки среды для культивирования эмбрионов их можно было успешно поддерживать в лаборатории в течение нескольких часов или даже культивировать в течение ночи до переноса. Однако, в коммерческой практике эмбрионы крупного рогатого скота редко содержались вне животного дольше нескольких часов до переноса. Оценка развития после переноса и отела подтвердила вывод о том, что нормальное развитие потомства связано с его получением путем пересадки эмбрионов.22
Одновременно с коммерциализацией методов переноса эмбрионов у крупного рогатого скота развивались интенсивные методы манипуляций с целью изучения развития эмбрионов млекопитающих у таких видов, как мыши23,24 и овцы.25,26
*Эта глава посвящена памяти Peter W. Farin, доктора ветеринарной медицины, доктора философии, дипломанта ACT (1954–2011).
8
In vivo
7
In vivo
6
5
4
3
2
1
0
2001 2003 2005 2007 2009 2011
Год
5(× 10)Количество пересадок эмбрионов
Рисунок 67.1 Количество коммерческих трансферов in vivo или in vitro эмбрионов крупного рогатого скота во всем мире в период с 2001 по 2011 гг.
Пересечение исследований в этих областях быстро привело к применению манипуляций с бычьими эмбрионами in vitro в попытке повысить эффективность коммерческого производства, сначала за счет применения расщепления эмбриона, а затем за счет клонирования эмбриона или переноса ядра (NT). Для разделения эмбрионы извлекали нехирургическим путем, обычно на стадии развития от морулы до ранней бластоцисты, делили пополам для получения однояйцевых близнецов и переносили в течение нескольких часов подходящим самкам-реципиентам нехирургическими методами.27–29 Расщепление и другие методы биопсии также применялись для определения пола эмбриона: один полученный демиэмбрион переносили, а другая часть использовалась для определения пола.30 Поскольку после этих процедур впоследствии получали телят, не было сообщений об аномалиях развития потомства, полученных в результате использования этих методов. В отличие от разделенных пополам эмбрионов, развитие эмбрионов, продуцируемых NT с использованием эмбриональных бластомеров в качестве источника донорских ядер26 , по сообщениям, привело к получению потомства слишком большого размера и аномальному развитию плода и плаценты.31–33
Одновременно с развитием технологий интенсивной обработки, таких как бисекция эмбриона (деление пополам) и NT, также были разработаны методы успешного оплодотворения ооцитов крупного рогатого скота in vitro34 или успешного созревания in vitro, оплодотворения in vitro и культивирования бычьих эмбрионов in vitro до стадии развития от 8 до 16 клеток.35,36 Но было перенесено и несколько эмбрионов крс IVP, потому что их нельзя было культивировать дальше стадии развития 8-16 клеток in vitro.37,38 Поскольку к тому времени нехирургический перенос эмбрионов стал отраслевым стандартом, подходящими кандидатами для переноса считались только эмбрионы на стадиях развития морулы (32–64 клетки) или бластоцисты (100–128+ клетки). В конце 1980-х годов использовался метод сокультивирования яйцеводных клеток в качестве метода успешного преодоления задержки развития культивируемых эмбрионов крупного рогатого скота на стадии от 8 до 16 клеток.39 В течение последующего десятилетия 1990-х эмбрионы крупного рогатого скота на стадии бластоцисты регулярно получали из ооцитов, полностью созревших in vitro, оплодотворенных in vitro и культивированных in vitro.40–42
Ранние неофициальные сообщения о развитии телят, полученных путем переноса эмбрионов IVP38 , первоначально предполагали потери беременности во втором и третьем триместрах.
Аналогичным образом, в отчете о развитии зигот овец, продуцируемых in vivo и извлеченных хирургическим путем из яйцевода, которые затем культивировались in vitro в течение 5 дней43 , продемонстрировано, что длительное воздействие на эмбрионы условий in vitro перед пересадкой привело к увеличению продолжительности беременности, увеличению веса ягнят при рождении и более высокой смертности по сравнению с контрольной группой, не подвергшейся культивированию. В 1995 г. были опубликованы три статьи44–46 , в которых задокументировано формирование слишком крупных плодов или телят в результате переноса IVP-эмбрионов крупного рогатого скота. Кроме того, повышение перинатальной смертности было связано с получением плодов и телят в результате переноса эмбрионов, полученных in vitro (44,45). В каждом из этих случаев созревание ооцитов in vitro использовалось в сочетании с оплодотворением in vitro и культивированием in vitro (IVC) для получения изученных эмбрионов, плодов и телят. Это смешение сделало невозможным определение влияния отдельных компонентов процесса in vitro на формирование крупных плодов и телят. Таким образом, невозможно четко определить, была ли только IVC ответственна за появление крупногабаритных особей крс, как предполагалось на основе данных по овцам47 , или же другие компоненты производственного процесса in vitro также внесли свой вклад. В совокупности эти наблюдения были первыми, позволившими предположить, что манипуляции с окружающей средой во время созревания, оплодотворения и предимплантационного культивирования in vitro способствуют изменениям в последующем гестационном и перинатальном развитии. Более того, изменения развития во многом напоминали те, что наблюдались у некоторых потомков крс, полученных в результате клонирования бластомеров (NT)31–33 и, позже, SCNT.15,48,49
Система классификации синдрома аномального потомства
Как отмечалось выше, перенос эмбрионов крупного рогатого скота, подвергшихся манипуляции IVP, NT или SCNT, приводит к появлению части концептуальных клеток, плодов или потомков, у которых обнаруживаются аномалии развития или аномалии в связанных с ними плацентарных тканях.32,44,45,50,51 Поскольку чрезмерный рост плода или потомства был наиболее ярким наблюдением, первоначально идентифицированным как результат переноса эмбрионов IVP или SCNT, этот феномен первоначально стал известен как «синдром крупного потомства».31–33,44,47,50 Но по мере того, как все больше исследователей начали изучать этот феномен, стало ясно, что не все беременности от эмбрионов IVP и SCNT приводят к фенотипам, демонстрирующим чрезмерный рост плода.52–58 Поэтому термин «синдром аномального потомства» (AOS) был использован для более точного описания ряда характеристик, связанных с этим синдромом.59
Аббревиатура этого синдрома - AOS используется при обсуждении аномалий развития, связанных с манипуляциями с эмбрионами in vitro у других видов млекопитающих. У свиней, например, фенотип чрезмерного роста не был связан с SCNT.60,61 Однако, клонированные свиньи могут демонстрировать другие отклонения в развитии, которые все же можно было бы описать как AOS.60 Поскольку этиология AOS-подобных характеристик связана с эпигенетическими изменениями генома в результате манипуляций с эмбрионом in vitro, признание того, что AOS встречается у различных видов млекопитающих, а не только у крупного рогатого скота и овец, поможет в дальнейшем определении всех аспектов этого синдрома.
