
быть связано с физическим состоянием липидов мембраны вне физиологических условий. У крупного рогатого скота IVC, включая этап оплодотворения, обычно проводят при 38.5 °C.
Разработаны среды, обеспечивающие капацитацию in vitro . Среда для совместной инкубации сперматозоидов и ооцитов обычно имеет несколько более высокий pH (7.5 по сравнению с 7.3 в средах для созревания и культивирования). В качестве базовой среды можно использовать растворы Тироде и Кребса — Рингера с добавлением источников энергии (глюкозы, лактата и пирувата) и альбумина.50 Основное вещество, добавляемое в среды для оплодотворения с целью капацитации, — гепарин. Предполагается, что, связываясь с белками и стимулируя отток холестерина и фосфолипидов, он способствует удалению компонентов семенной плазмы с поверхности сперматозоидов.50,51 К другим веществам, способствующим капацитации, относятся кофеин — ингибитор фосфодиэстераз; бикарбонат, вызывающий зависимые от протеинкиназы A изменения структуры липидов; аденозин, взаимодействующий с мембранными рецепторами и повышающий внутриклеточный уровень циклического AMP; и активные формы кислорода (ROS), такие как супероксид-анион, перекись водорода и оксид азота, которые активируют мембранные мишени и запускают внутриклеточные механизмы, включая фосфорилирование тирозиновых остатков белков.51
Большинство сперматозоидов, используемых для IVF у крупного рогатого скота, предварительно замораживают и оттаивают. Криоконсервация вызывает в сперматозоидах крупного рогатого скота изменения, сходные с изменениями при капацитации. У них повышается внутриклеточный уровень кальция, происходит суммарная потеря белков плазматической мембраны и увеличивается количество ROS.52 Таким сперматозоидам также требуются менее продолжительное воздействие веществ, способствующих капацитации, и меньшие их дозы, чем свежим сперматозоидам, идеально подходящим для IVF. В хорошо организованной лаборатории IVF средняя частота оплодотворения при использовании замороженных сперматозоидов может достигать 80% или более.
Наиболее распространённый метод подготовки сперматозоидов к оплодотворению — центрифугирование в градиенте концентрации. Такой ступенчатый градиент готовят из раствора TALP для сперматозоидов, смешанного с Percoll® (Sigma) в разных пропорциях. Чаще всего слой смеси с 45% Percoll располагают поверх слоя смеси с 90% Percoll. Сперму или содержимое размороженной соломинки со спермой наносят поверх градиента и центрифугируют при 800 × g в течение времени, зависящего от высоты столба жидкости, через который должны пройти сперматозоиды. При этом интактные сперматозоиды собираются на дне центрифужной пробирки. Альтернативный метод выделения интактных сперматозоидов — метод «выплывания»: поверх содержимого размороженной соломинки наслаивают среду, дают сперматозоидам выплыть в неё, а затем через некоторое время отбирают их аспирацией.
Использование сперматозоидов, отсортированных в зависимости от того, несут ли они X- или Y-хромосому, становится всё более важной частью процесса IVP у крупного рогатого скота, особенно в молочном животноводстве.53 Точность сортировки спермы составляет приблизительно 90%. В недавнем исследовании частота наступления стельности у молочных коров, которым переносили эмбрионы IVP, полученные с использованием спермы, сортированной по полу (30%), не отличалась от показателя у коров, получавших эмбрионы с использованием обычной спермы (27%). Однако потери стельности после переноса эмбрионов IVP, полученных с использованием сортированной по полу спермы, были значимо выше, чем у коров, искусственно осеменённых обычной спермой.54 В этом исследовании, как и в большинстве коммерческих хозяйств, использовали замороженную и затем оттаянную сперму, которую сортировали до криоконсервации. В некоторых случаях замороженную сперму сортируют после оттаивания и используют для оплодотворения ооцитов сразу после сортировки. Это называется обратной сортировкой; при её применении
in vitro частота получения бластоцист и наступления стельности сопоставима с показателями при использовании свежей спермы, сортированной по полу, и выше, чем при использовании спермы, замороженной после сортировки по полу55 (неопубликованные результаты предоставлены Trans Ova Genetics).
Культивирование in vitro эмбрионов
IVC эмбрионов крупного рогатого скота — заключительный этап процесса IVP; он включает приблизительно 6 дней культивирования от стадии 1-клеточной зиготы после IVF до стадии бластоцисты.
Наиболее распространённые среды для культивирования эмбрионов крупного рогатого скота представляют собой варианты сред, описанных Tervit и соавт. ’s56 исходной синтетической среды яйцевода (SOF) с добавлением аминокислот и, в некоторых случаях, небольшого количества сыворотки.57–60 При культивировании на основе SOF может использоваться среда одного состава на протяжении всего периода культивирования in vitro (IVC) либо двух- или трёхэтапная «последовательная» система, в которой состав среды меняется в определённые моменты периода культивирования. Последовательные системы разработаны с целью воспроизвести физиологические изменения, с которыми in vivo сталкиваются зиготы, перемещаясь по яйцеводам в матку в течение первых 6 или 7 дней развития. Объём среды, используемой в системах IVC, также различается: в некоторых лабораториях эмбрионы культивируют в микрокаплях объёмом всего 25 μL под слоем масла, тогда как в других объём достигает 500 μL, с масляным слоем или без него. В некоторых системах IVC культивирование проводят в инкубаторе с атмосферой, содержащей 5% CO2 в воздухе; однако имеются убедительные данные о том, что в отсутствие совместного культивирования эмбрионы крупного рогатого скота лучше развиваются в атмосфере, содержащей 5% CO2, 5% O2 и 90% N2.61,62
В прошлом при коммерческом получении эмбрионов in vitro (IVP) чаще всего использовали системы совместного культивирования, включавшие монослой соматических клеток. Для успешного совместного культивирования эмбрионов крупного рогатого скота применяли первичные клетки яйцеводов крупного рогатого скота или свиней, ампулярного отдела яйцеводов мышей, кумулюса, гранулёзы и матки, а также постоянные клеточные линии, такие как Buffalo Rat Liver (BRL) и Vero. В системах совместного культивирования эти клетки сочетали с различными средами, в том числе TCM-199, Menezo’s B2 и Ham’s F-10.
Сегодня системы совместного культивирования не получили широкого распространения, поскольку большинство лабораторий сосредоточилось на изучении систем IVP на основе сред с определённым составом. Это среды, все компоненты которых известны; соответственно, такие продукты, как сыворотка и бычий сывороточный альбумин (BSA), в них не входят. Теоретически систему с определённым составом можно в точности воспроизвести в любой лаборатории в любое время. Кроме того, использование таких систем необходимо для понимания потребностей предимплантационных эмбрионов при культивировании и оптимизации его условий. Однако при использовании химически определённых сред, не содержащих белка, сообщалось лишь об умеренных показателях получения бластоцист.63,64 По этой теме опубликовано несколько весьма обстоятельных обзоров.65–68
Коммерческие предприятия, занимающиеся переносом эмбрионов и IVP, прежде всего заинтересованы в эффективном и предсказуемом получении как можно большего числа жизнеспособных эмбрионов. Поэтому в различные среды, в том числе среды для IVC, часто добавляют BSA (полуопределённая среда), а в некоторых случаях — умеренное количество сыворотки (среда неопределённого состава). Кроме того, системы с неопределённым составом могут предусматривать совместное культивирование с включением различных соматических клеток. Такие системы бывает трудно воспроизвести из-за различий
между партиями коммерчески доступных клеток либо из-за отсутствия «бессмертия» у некоторых типов клеток при их культивировании на протяжении многих поколений в лабораториях IVP.
Многочисленные качественные и количественные различия между эмбрионами, полученными in vivo и in vitro, подробно описаны для крупного рогатого скота и других видов.16 Имеются данные о том, что у эмбрионов, полученных методом IVP, меньше клеток, а доля клеток внутренней клеточной массы (ICM) по отношению к клеткам трофобласта ниже, чем у эмбрионов, полученных in vivo на той же стадии развития; эти различия могут быть связаны с использованием разных систем культивирования.69,70 Однако общее число клеток не обязательно отражает целостность и жизнеспособность предимплантационных эмбрионов, полученных методом IVP. Ван Сом и соавт.71 с помощью дифференциального окрашивания показали, что, хотя у эмбрионов, полученных в среде Menezo’s B2, клеток было больше, чем у эмбрионов того же возраста, полученных в TCM-199, у эмбрионов, полученных в B2, разброс числа клеток ICM был шире. Дополнительные клетки у эмбрионов, полученных в B2, относились преимущественно к трофобласту. Добавление сыворотки также может увеличивать число клеток, но имеются данные о том, что это может снижать способность эмбрионов переживать криоконсервацию.72 Таким образом, не следует выбирать среду для IVC на основании увеличения числа клеток в эмбрионах.
Помимо различий в числе клеток, среды для IVC различаются по скорости развития эмбрионов.73–75 Очевидно, что в одной и той же среде для IVC быстрее развивающиеся эмбрионы часто имеют более высокое качество, если судить по числу клеток,76 конечной стадии развития77 и частоте наступления беременности после переноса.22
Исследование с применением флуоресцентной гибридизации in situ показало, что высокая доля (72%) эмбрионов крупного рогатого скота, культивированных в системе совместного культивирования со средой Menezo’s B2, была миксоплоидной, по сравнению с 25% бластоцист, развившихся in vivo .78 Из общего числа in vitro эмбрионы, 17%, содержали более 10% полиплоидных клеток. Напротив, все in vivo эмбрионы содержали менее 10% полиплоидных клеток. Авторы этого исследования предположили, что существует связь между полиплоидией in vitro эмбрионов и возможностью развития из них полиплоидных клеток плаценты. Это может приводить к чрезмерной активности плаценты, которая, в свою очередь, обусловливает рождение крупных телят (см. раздел «Стельность и потомство»).
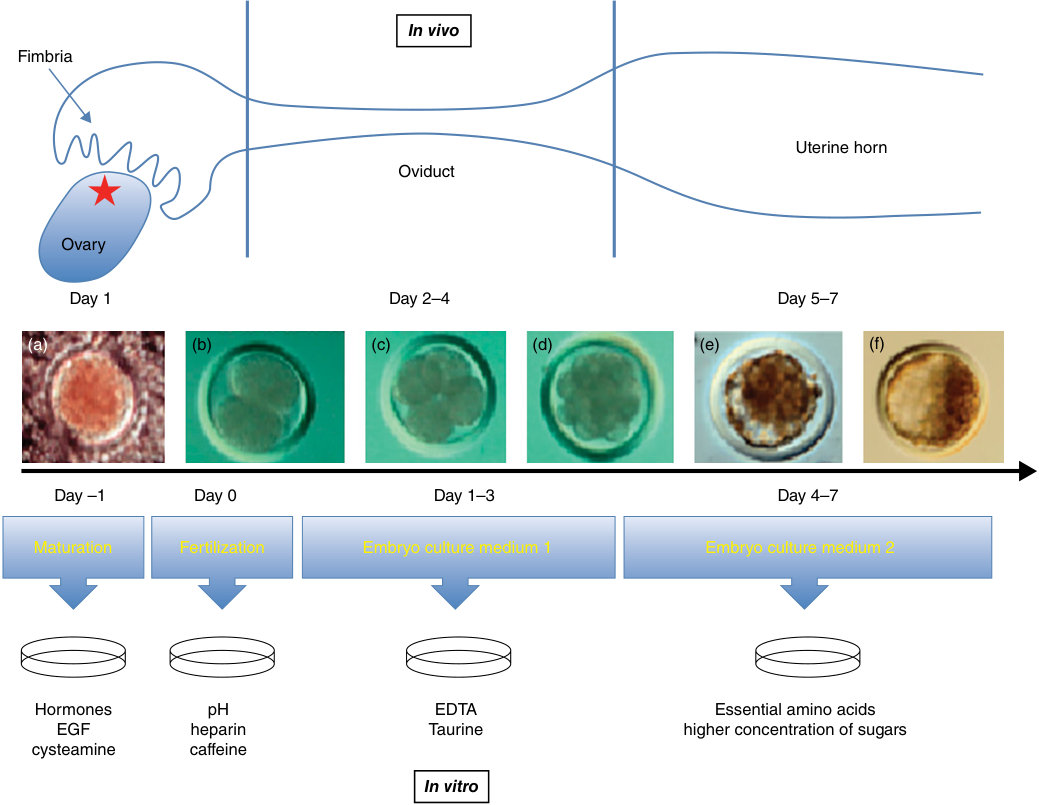
Сопоставление процесса IVP с получением эмбрионов in vivo и стадиями развития эмбрионов представлено на рисунке 81.3.
Криоконсервация эмбрионов IVP
Криоконсервацию эмбрионов крупного рогатого скота регулярно проводят в исследовательских и коммерческих лабораториях ЭКО по всему миру. Традиционную криоконсервацию методом медленного замораживания широко применяют для полученных in vivo эмбрионов; в крупномасштабных исследованиях частота наступления стельности достигает 50–55%.22,79 При использовании замороженных и оттаянных эмбрионов IVP частота наступления стельности была ниже.
Наиболее распространённый протокол криоконсервации ооцитов крупного рогатого скота методом медленного замораживания предусматривает охлаждение эмбриона до –6 °C и выдержку при этой температуре. Во время выдержки в соломинке с эмбрионом инициируют образование кристаллов льда, затем температуру снижают до –32 °C со скоростью 0.3– 0.6 °C в минуту и погружают соломинку в жидкий азот. Эмбрионы крупного рогатого скота обычно замораживают в растворе, содержащем 1.5 mol/L этиленгликоля и 0.1–0.5 mol/L сахарозы. Использование этиленгликоля в качестве криопротектора позволяет переносить эмбрион реципиенту непосредственно из соломинки, тогда как
другие криопротекторы, например глицерин, перед переносом необходимо удалять путём разбавления среды для замораживания.80 К другим криопротекторам, применявшимся для замораживания эмбрионов крупного рогатого скота, относятся диметилсульфоксид, пропандиол, метанол, различные сахара и их сочетания.81
На выживаемость эмбрионов после оттаивания влияет несколько факторов, включая стадию развития. Морулы и бластоцисты переносят замораживание и оттаивание лучше, чем эмбрионы на более ранних стадиях, однако даже день формирования бластоцисты может влиять на её выживаемость после оттаивания. После переноса бластоцист, полученных методом ЭКО и замороженных на день 7, частота наступления стельности составляла 42%, но для бластоцист, замороженных на день 8, снижалась до 20%; при этом чаще наблюдались ранние аборты и дистоции.22 Качество эмбрионов также влияет на результаты после оттаивания. Данные о частоте наступления стельности после переноса замороженных и оттаянных эмбрионов крупного рогатого скота в зависимости от категории качества опубликовали Hasler и соавт.22 : категория 1 — 63%; категория 2 — 57%; категория 3 — 44%; категория 4 — 36%.
Влияние скорости охлаждения и нагревания на эмбрионы различных видов широко изучалось. В одном исследовании эмбрионы крупного рогатого скота охлаждали со скоростью 0.3, 0.6, 0.9, 1.2 или 1.5 °C/мин, а затем отогревали либо быстро в водяной бане при температуре 35 °C (скорость нагревания >1000 °C/мин), либо медленно на воздухе при температуре 25–28 °C (<250 °C/мин).82 Наилучший результат дало охлаждение со скоростью 0.3 °C/мин с последующим быстрым отогревом: 42.1% морул развились в бластоцисты, выходящие из блестящей оболочки. Эти результаты показывают, что очень медленное охлаждение повышает выживаемость морул и бластоцист крупного рогатого скота, полученных методом IVP, тогда как медленный отогрев вреден для морул и бластоцист даже в сочетании с очень медленным охлаждением.
Витрификация — альтернатива криоконсервации методом медленного замораживания. Она предполагает сверхбыстрое охлаждение, при котором вместо образования льда вещество переходит в стеклообразное состояние. С тех пор как в 1985 витрификация была предложена в качестве эффективного метода криоконсервации эмбрионов,83 её применяли главным образом в исследованиях. Ограничения витрификации включают токсическое действие высоких концентраций криопротекторов, повреждения вследствие осмотического шока и необходимость привлечения высококвалифицированных специалистов. Тем не менее витрификация оказалась более эффективной для криоконсервации чувствительных к ней эмбрионов, в частности эмбрионов IVP.84 Ещё одно преимущество витрификации состоит в том, что она не требует дорогостоящих установок для замораживания клеток, используемых при медленном замораживании; кроме того, на уравновешивание и последующую криоконсервацию каждого эмбриона уходит меньше времени. Исследования также показали, что по сравнению с витрификацией криоконсервация методом медленного замораживания может вызывать изменения уровня экспрессии генов, участвующих в развитии доимплантационного эмбриона крупного рогатого скота.85 Витрификация в сочетании с разбавлением криопротектора внутри соломинки могла бы стать альтернативой медленному замораживанию эмбрионов, полученных in vitro или in vivo .
Перенос эмбрионов, полученных методом ЭКО
В большинстве случаев эмбрионы, полученные in vitro (IVP), переносят так же, как и эмбрионы, полученные in vivo. После извлечения из инкубатора эмбрионы IVP обычно переносят немедленно, тогда как эмбрионы, полученные in vivo, можно до переноса выдерживать при комнатной температуре до 24 часов без потери жизнеспособности.
Частота наступления стельности после переноса эмбрионов IVP неизменно ниже, чем после переноса эмбрионов, полученных in vivo. Значительно более низкая
In vivo
Бахромка маточной трубы
Рог матки
Яйцевод
Яичник
День 1 День 2–4 День 5–7
(a) (b) (c) (d) (e) (f)
День –1 День 0 День 1–3 День 4–7
Созревание Оплодотворение Среда для культивирования эмбрионов 1 Среда для культивирования эмбрионов 2
Гормоны pH EDTA Незаменимые аминокислоты
EGF гепарин Таурин более высокая концентрация сахаров
цистеамин кофеин
In vitro
Рисунок 81.3 Сравнение развития эмбрионов in vivo и in vitro. В верхней части показано расположение эмбрионов на каждой стадии развития при их продвижении по половым путям. В нижней части выделены некоторые различия между средами, используемыми на разных этапах ЭКО. Микрофотографии: (a) зрелый ооцит с разросшимися клетками кумулюса (b) 2-клеточный эмбрион (c) 4-клеточный эмбрион (d) 16-клеточный эмбрион (e) ранняя бластоциста (f) бластоциста.
