
частота наступления стельности отмечалась, в порядке убывания, после переносаin vivo замороженных эмбрионов, свежих эмбрионов IVP дня -7, свежих эмбрионов IVP дня -8, замороженных эмбрионов IVP дня -7 и, наконец, замороженных эмбрионов IVP дня -8.22 Если рассматривать стадию развития независимо от возраста и категории качества, перенос большого числа эмбрионов, полученных in vivo, показал, что ранние бластоцисты (EB) и бластоцисты средней стадии развития (MB) обеспечивали более высокую частоту наступления стельности, чем морулы (M), экспандированные бластоцисты (XB) или вылупившиеся бластоцисты (HB).86 Перенос эмбрионов класса 1 на день -7 на стадиях EB, MB или XB обеспечивает более высокую частоту наступления стельности, чем перенос соответствующих эмбрионов на день -8.
Синхронность состояния коров-реципиентов со стадией развития эмбриона — важный фактор наступления стельности. Для эмбрионов IVP днём 0 считается день оплодотворения, тогда как у реципиентов день 0 начинается с наступления стоячей охоты. При переносе эмбрионов нулевая синхронность означает перенос эмбриона реципиенту с соответствующим номером дня: например, эмбрион дня -7 переносят реципиенту, у которого охота наблюдалась 7 дней назад. Синхронность минус 1 день означает перенос эмбриона реципиенту, у которого охота наблюдалась на 1 день позже, чем соответствует возрасту эмбриона: например, эмбрион дня -7 переносят корове, у которой охота была 6 дней назад. Хотя такая система обозначений общепринята, она вводит в заблуждение: овуляция у реципиента происходит приблизительно через 12 часов после окончания охоты, которая длится в среднем 18 часов (день 0 начинается с наступлением стоячей охоты), тогда как оплодотворение in vitro происходит в течение нескольких часов. Следовательно, эмбрион IVP, обозначенный как эмбрион дня 7, фактически на 1 день старше эмбриона дня -7, полученного in vivo.22,87 Эта асинхронность отражается на частоте наступления стельности. При переносе эмбрионов дня -7 реципиентам дня -6 она составляла 50.3% по сравнению с 55% у реципиентов дня -7 и 58% у реципиентов дня -8. Дополнительным подтверждением служат недавние данные Trans Ova Genetics, основанные более чем на 10 000 переносах: при использовании реципиентов дня -6, -7 и -8 для эмбрионов IVP дня -7 частота наступления стельности составляла соответственно 42, 50 и 49% (неопубликованные результаты Trans Ova Genetics). Чтобы избежать снижения частоты наступления стельности, по возможности не следует использовать реципиентов дня -6.
В настоящее время коммерческое получение эмбрионов крупного рогатого скота методом IVP успешно осуществляется в ряде лабораторий по всему миру. Компания BOVITEQ Inc. в Квебеке88 и компания Trans Ova Genetics89 и Em Tran, Inc.22 в США — компании, занимающиеся коммерческим переносом эмбрионов, которые успешно получали стельности после переноса эмбрионов, полученных методом OPU/IVP от бесплодных доноров. Кроме того, Trans Ova Genetics, Sexing Technologies и Ova Tech в США и BOVITEQ в Канаде в настоящее время получают большое количество эмбрионов IVP от здорового крупного рогатого скота. По оценкам, по состоянию на 2012 год эмбрионы OPU/IVP составляли приблизительно 10% от общего числа переносов эмбрионов в США (данные предоставлены Американской ассоциацией переноса эмбрионов).
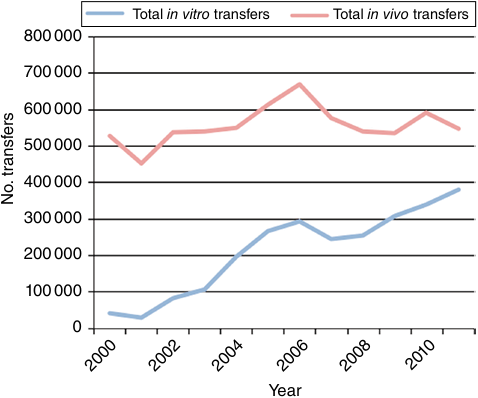
Динамика числа переносов эмбрионов, полученных in vitro и in vivo, в мире по годам в период с 2000 по 2011 год показана на рисунке 81.4. Очевидно, что число переносов in vivo эмбрионов, полученных путём суперовуляции и извлечённых промыванием, оставалось относительно стабильным, тогда как число эмбрионов IVP ежегодно росло. В настоящее время в Бразилии получают больше эмбрионов IVP, чем в любой другой стране. Одна компания, In Vitro Brazil, сообщила, что в 2012 году перенесла более 200 000 эмбрионов IVP. По оценкам, на долю суперовуляции с последующим извлечением эмбрионов промыванием в настоящее время приходится лишь 9% переносов эмбрионов
Всего переносов эмбрионов in vitro Всего переносов эмбрионов in vivo
800 000
700 000
600 000
500 000
400 000
300 000
200 000
100 000
0
Год
2000 2002 2004 2006 2008 2010
Число переносов
Рисунок 81.4 Сравнение ежегодного числа переносов эмбрионов, полученных in vivo, и эмбрионов IVP в мире начиная с 2000 года. Предоставлено Международным обществом переноса эмбрионов.
Таблица 81.3 Аномальные признаки, связанные с синдромом крупного плода при стельности после переноса эмбрионов IVP и у родившихся телят.
| Крупные телята |
|---|
| Увеличение продолжительности стельности |
| Снижение интенсивности родовой деятельности |
| Повышение частоты абортов |
| Повышение частоты врожденных пороков развития |
| Повышение перинатальной смертности |
| Повышение частоты гидроаллантоиса у реципиентов |
работы в Бразилии, где OPU/IVP теперь обеспечивает получение 91% эмбрионов (данные предоставлены компанией In Vitro Brazil).
В Нидерландах эмбрионы методом IVP получают из ооцитов, извлеченных методом OPU у молодых доноров без нарушений репродуктивной функции, и переносят непосредственно в хозяйствах по всей стране.90 В Японии производство эмбрионов методом IVF из яичников с боен поставлено на коммерческую основу; в некоторых случаях получено очень большое количество эмбрионов. Куваяма и соавт.91 описали получение более 150 000 замороженных эмбрионов IVP за 1-летний период из более чем 21 000 яичников крупного рогатого скота японской черной породы.
Стельность и потомство
Ряд авторов описал проблемы при стельности, наступившей после переноса эмбрионов крупного рогатого скота, полученных методом IVP.16,32,59,90,92 Одна из наиболее очевидных проблем — рождение телят крупнее нормы; это явление называют синдромом крупного потомства. Некоторые связанные с ним проблемы приведены в таблице 81.3.
Согласно ряду публикаций, средняя масса при рождении телят, полученных методом IVF, больше, чем у телят, полученных в результате искусственного осеменения (AI).90,93,94 Кроме того, Фарин и соавт.92 показали, что плоды 7-месячного возраста, развившиеся из эмбрионов после IVC, были тяжелее плодов, развившихся из эмбрионов, полученных in vivo. Другие исследования показывают, что сыворотка, совместное культивирование, IVM/IVF и среда матки способны влиять на развитие плода
у овец. Эти исследования проводились преимущественно на овцах, поскольку из-за высоких затрат на содержание и более продолжительной стельности крупный рогатый скот служит более дорогой моделью для изучения влияния процедур in vitro на потомство. Тем не менее обнаружение того, что ягнята, развившиеся из эмбрионов, культивированных in vitro с добавлением сыворотки, могут быть на 20% тяжелее ягнят контрольной группы, может иметь важные последствия для скотоводства.95 Отмечалась также более продолжительная стельность, однако ее связь с массой потомства не была установлена.95–97
Поскольку сыворотку считают одной из причин повышенной массы при рождении ягнят, полученных in vitro (обзор см. в источнике 30), ее применению в системах IVC для крупного рогатого скота уделялось большое внимание. Исключение сыворотки в первые 4 дней совместного культивирования не снизило частоту проблем при стельности после переноса эмбрионов IVP и у полученных телят,31 тогда как Агджа и соавт.98 показали, что масса при рождении и продолжительность стельности были нормальными у относительно небольшого числа телят, развившихся из эмбрионов, культивированных в среде CR1aa без сыворотки.99 Другое исследование, в котором сравнивали стельности после переноса эмбрионов, полученных при совместном культивировании, и эмбрионов, полученных в среде SOF с добавлением BSA, показало, что применение SOF приводило к меньшей массе телят при рождении и более легким отелам.59 К сожалению, подробные данные о поздних сроках стельности, частоте трудных родов и нормальном развитии телят отсутствуют для крупных коммерческих программ in vitro, действующих в настоящее время.
Повышенная частота абортов — от 8 до 47% — в первые два триместра стельности отмечалась при вынашивании плодов крупного рогатого скота, полученных in vitro.22,100–102 Напротив, при стельности после переноса эмбрионов частота абортов составляла 5.3% в период от 2 до 7 месяцев,103 4.7% в период от 2 до 6 месяцев86 и 4% в период от 40 до 250 дней104 при переносе эмбрионов крупного рогатого скота, полученных in vivo.
Сообщалось также, что перинатальные и неонатальные потери у реципиентов, вынашивающих плоды, полученные in vitro, выше, чем после искусственного осеменения или при стельности после переноса эмбрионов, полученных in vivo.22,90,105,106 Частота гибели телят при рождении не различалась между телятами, полученными в системах совместного культивирования TCM-199 и B2 в компании Em Tran. Однако общая доля телят IVF, погибших при рождении, составила 14.9% (205 из 1376), что выше 9%, зарегистрированных после переноса эмбрионов, полученных in vivo.103
У стельных реципиентов голштинской породы, вынашивавших плоды, полученные методом IVP, чаще диагностировали гидроаллантоис (1%).22,90 Частота 1% значительно превышает приводимую для стельностей без применения IVP частоту — 1 случаев на 7500 отелов.107
Наконец, хотя количественные данные не приводились, сообщалось, что у голштинских телок, служивших реципиентами эмбрионов IVP, признаки начала родов часто были слабо выражены.16 Поэтому начало родов у этих реципиентов часто оставалось незамеченным, отелы нередко проходили без помощи, что приводило к увеличению перинатальных потерь. Однако при плановом кесаревом сечении выживаемость телят приближалась к 98%.
Ряд публикаций показывает, что в первые 7–8 дней культивирования в рамках IVP эмбрионы крупного рогатого скота мужского пола развиваются быстрее эмбрионов женского пола.108–111 Эмбрионы крупного рогатого скота, полученные методом IVP, обычно переносят на 7-й или 8-й день; при этом, как правило, отбирают наиболее развитые эмбрионы, поскольку они обычно более жизнеспособны.22Сообщалось, что доля бычков, родившихся после пересадки эмбрионов, полученных in vitro (IVP), составляла 60%,100 62%,102а также 53.4%.16Показатель 53.4% был рассчитан по данным о более чем 2000 телятах и плодах, полученных методом IVP, и достоверно отличался (P < 0.001) от 50% и
также от доли самцов 51.1% среди 1751 телят, полученных после пересадкиin vivo полученных эмбрионов,103 а также от доли самцов 50.5% среди 24 000 телят голштинской породы, полученных методом искусственного осеменения.112
Заключение
Со времени 1959, когда было получено первое млекопитающее в результате оплодотворения in vitro (IVF), этот метод прошёл долгий путь и сегодня занимает всё более важное место в отрасли пересадки эмбрионов крупного рогатого скота. Состав сред для культивирования продолжают совершенствовать, чтобы точнее воспроизводить условияin vivo, что позволяет получать эмбрионы более высокого качества. В сочетании с использованием спермы, разделённой по полу, в процессе IVP это повышает ценность эмбрионов, полученных методом IVP, особенно в молочном скотоводстве. Кроме того, по мере совершенствования методов криоконсервации таких эмбрионов становится возможной их транспортировка на большие расстояния и более широкое применение в скотоводстве.
Литература
-
Chang M. Оплодотворение яйцеклеток млекопитающих in vitro. J Anim Sci 1968;27:15–22.
-
Whittingham D. Оплодотворение яйцеклеток мышей in vitro. Nature 1968;220:592–593.
-
Iritani A, Niwa K. Капацитация сперматозоидов быка и оплодотворение in vitro фолликулярных ооцитов крупного рогатого скота, созревших в культуре. J Reprod Fertil 1977;50:119–121.
-
Brackett B, Bousquet D, Boice M, Donawick W, Evans J, Dressel M. Нормальное развитие после оплодотворения in vitro у коров. Biol Reprod 1982;27:147–158.
-
Fukuda Y, Ichikawa M, Naito K, Toyoda Y. Рождение нормальных телят из ооцитов крупного рогатого скота, созревших и оплодотворённых in vitro и культивировавшихся вместе с клетками кумулюса до стадии бластоцисты. Biol Reprod 1990;42:114–119.
-
Bederian K, Shea B, Baker R. Оплодотворение фолликулярных ооцитов крупного рогатого скота в яйцеводах коров и свиней. Can J Anim Sci 1975; 55:251–256.
-
Lambert R, Sirard M, Bernard C и др. Оплодотворение in vitro ооцитов крупного рогатого скота, созревших in vitro и полученных при лапароскопии. Theriogenology 1986;25:117–133.
-
Griffen P, Ginther O. Применение ультразвуковой визуализации в исследованиях биологии размножения. J Anim Sci 1992;70:953–972.
-
Callesen H, Greve T, Christensen F. Аспирация фолликулярных ооцитов крупного рогатого скота под контролем УЗИ. Theriogenology 1987;27:217 (аннотация).
-
Pieterse M, Kappen K, Kruip T, Taverne M. Аспирация ооцитов крупного рогатого скота при трансвагинальном ультразвуковом исследовании яичников. Theriogenology 1988;30:751–762.
-
Hasler J. Пересадка эмбрионов иin vitro оплодотворение. В кн.: Schatten H, Constantinescu GM (ред.) Сравнительная биология размножения. Эймс, штат Айова: Blackwell Publishing, 2007, с. 171–211.
-
Bols P, Van Soom A, Ysebaert M, Vandenheede J, de Kruif A. Влияние разрежения при аспирации и диаметра иглы на морфологию ооцит-кумулюсных комплексов и способность ооцитов крупного рогатого скота к развитию. Theriogenology 1996;45:1001–1014.
-
Bols P, Ysebaert M, Van Soom A, de Kruif A. Влияние формы среза кончика иглы и процедуры аспирации на морфологию и способность к развитию ооцит-кумулюсных комплексов крупного рогатого скота с плотным кумулюсом. Theriogenology 1997;47:1221–1236.
-
Gibbons J, Beal W, Krisher R, Faber E, Pearson R, Gwazdauskas F. Влияние трансвагинальной аспирации фолликулов один или два раза в неделю на выход ооцитов крупного рогатого скота и развитие эмбрионов. Theriogenology 1994;42:405–419.
-
Broadbent P, Dolman D, Watt R, Smith A, Franklin M. Влияние частоты аспирации фолликулов на выход ооцитов и последующий ответ на стимуляцию суперовуляции у крупного рогатого скота. Theriogenology 1997;47:1027–1040.
-
Hasler J. Современное состояние методов получения ооцитов, производства эмбрионов in vitro и пересадки эмбрионов у домашних животных, с особым вниманием к крупному рогатому скоту. J Anim Sci 1998;76:52–74.
-
Garcia A, Cherdieu J, Rademakers A, Salaheddine M. Трансвагинальная аспирация фолликулов у коров один или два раза в неделю. В сб.: Материалы 12-го научного совещания AETE, Лион, Франция, 1996, с. 130 (аннотация).
-
Goodhand K, Watt R, Staines M, Hutchinson J, Broadbent P. Получение ооцитов in vivo и производство эмбрионов in vitro от коров-доноров при различной частоте аспирации фолликулов или после обработки FSH. Theriogenology 1999;51:951–961.
-
de Ruigh L, Mullaart E, van Wagtendonk-de Leeuw AM. Влияние стимуляции FSH перед аспирацией ооцитов на выход ооцитов и эмбрионов. Theriogenology 2000;53:359 (аннотация).
-
Chaubal SA, Molina JA, Ohlrichs CL и др.Сравнение различных протоколов трансвагинальной аспирации ооцитов для оптимизации их получения и производства эмбрионов у коров в течение 10 недель. Theriogenology 2006;65:1631–1648.
-
De Roover R, Feugang JMN, Bols PEJ, Genicot G, Hanzen Ch. Влияние частоты аспирации ооцитов и стимуляции FSH: ретроспективное исследование производства эмбрионов мясного крупного рогатого скота in vitro за семь лет. Reprod Domest Anim 2007;43:239–245.
-
Hasler J, Henderson W, Hurtgen P и др.Получение, замораживание и перенос эмбрионов крупного рогатого скота, полученных методом экстракорпорального оплодотворения, и последующие результаты отёлов. Theriogenology 1995;43:141–152.
-
Looney CR, Lindsey BR, Gonseth CL, Johnson DL. Коммерческие аспекты получения ооцитов и экстракорпорального оплодотворения (IVF) для производства эмбрионов от коров с репродуктивными проблемами. Theriogenology 1994; 41:67–72.
-
Stringfellow D, Riddell M, Riddell K и др.Использование экстракорпорального оплодотворения для получения телят от вынужденно выбракованных коров. J Assist Reprod Genet 1993;10:280–285.
-
Green D, McGuirk B. Получение эмбрионов от отдельных ценных коров, подлежащих выбраковке. В: Материалы 12-го научного собрания AETE, Лион, Франция, 1996, с. 134 (тезисы).
-
Lu K, Polge C. Обобщение результатов двух лет крупномасштабного производства эмбрионов крупного рогатого скота in vitro. В: Материалы 12-го Международного конгресса по репродукции животных, Гаага, Нидерланды, 1992, т. 3, с. 1315–1317.
-
Vajta G, Holm P, Greve T, Callesen H. Общая эффективность производства эмбрионов in vitro и витрификации у крупного рогатого скота. Theriogenology 1996;45:683–689.
-
Wiemer KE, Anderson A, Stewart B. Значение качества воды для приготовления культуральных сред. Hum Reprod 1998;13:166–172.
-
Van Langendonckt A, Donnay I, Schuurbiers N и др.Влияние добавления сыворотки плода телёнка на развитие эмбрионов крупного рогатого скота в среде, имитирующей жидкость яйцевода. J Reprod Fertil 1997;109:87–93.
-
Young L, Sinclair K, Wilmut I. Синдром крупного потомства у крупного рогатого скота и овец. Rev Reprod 1998;3:155–163.
-
Hasler J. Культивирование эмбрионов крупного рогатого скота in vitro в среде B2 Менезо с сокультивированием и добавлением сыворотки или без них: нормальное течение беременности и развитие телят после переноса эмбрионов. Anim Reprod Sci 2000;60–61:81–91.
-
Farin P, Piedrahita J, Farin C. Нарушения развития плодов и плацент из эмбрионов крупного рогатого скота, полученных in vitro. Theriogenology 2006;65:178–191.
-
Thompson J, Mitchell M, Kind K. Культивирование эмбрионов и его долгосрочные последствия. Reprod Fertil Dev 2007;19:43–52.
-
Lee C, Ax R. Концентрация и состав гликозаминогликанов в половых путях самок. J Dairy Sci 1984; 67:2006–2009.
-
Furnus C, de Mantos D, Martinez A. Влияние гиалуроновой кислоты на развитие эмбрионов крупного рогатого скота, полученных in vitro. Theriogenology 1998;49:1489–1499.
-
Lane M, Maybach J, Hooper K, Hasler J, Gardner D. Культивирование с рекомбинантным альбумином и гиалуронаном повышает выживаемость бластоцист крупного рогатого скота после криоконсервации и улучшает их развитие. Mol Reprod Dev 2003;64:70–78.
-
Block J, Bonilla L, Hansen P. Влияние добавления гиалуронана в среду для культивирования эмбрионов на выживаемость эмбрионов крупного рогатого скота in vitro после витрификации и наступление беременности после переноса эмбрионов реципиентам. Theriogenology 2009;71:1063–1071.
-
Palasz A, Beltrán Breña P, Martinez M и др.Развитие, молекулярный состав и устойчивость к замораживанию эмбрионов крупного рогатого скота, культивируемых в среде TCM-199 с добавлением гиалуронана. Zygote 2008;16:1–9.
-
Gardner D. Анализ состава сред для культивирования эмбрионов: наиболее и наименее важные компоненты и характеристики. Reprod Fertil Dev 2008;20:9–18.
-
Steeves C, Hammer M-A, Walker G, Rae D, Stewart N, Baltz J. Переносчик нейромедиатора глицина GLYT1 является переносчиком органических осмолитов, регулирующим объём клеток в эмбрионах на стадии дробления. Proc Natl Acad Sci USA 2003;100:13982–13987.
-
Lane M, Bavister B. Регуляция внутриклеточного pH в ооцитах и эмбрионах крупного рогатого скота на стадии дробления. Mol Reprod Dev 1999; 54:396–401.
-
Kane M. Влияние pH на развитие одноклеточных яйцеклеток кролика до стадии бластоцисты при культивировании в среде с бикарбонатным буфером. J Reprod Fertil 1974;38:477–480.
-
Baltz JM. Осморегуляция и регуляция объёма клеток в реимплантационном эмбрионе. Curr Top Dev Biol 2001;52:55–106.
-
Liu Z, Foote R. Влияние хлорида натрия, осмолитов и осмолярности на формирование бластоцист из эмбрионов крупного рогатого скота, полученных методом экстракорпорального оплодотворения (IVF) и культивируемых в простых средах без сыворотки. J Assist Reprod Genet 1996;13:562–568.
-
Wassarman P, Schultz R, Letourneau G, LaMarca M, Josefowicz W, Bleil J. Мейотическое созревание ооцитов мыши in vitro. Adv Exp Med Biol 1979;112:251–268.
-
Silvestre F, Fissore R, Tosti E, Boni R. Повышение [Ca2+ ]i при созревании комплексов кумулюсных клеток и ооцитов крупного рогатого скота in vitro. Mol Reprod Dev 2012;79:369–379.
-
Mtango N, Varisanga M, Dong Y, Rajamahendran R, Suzuki T. Факторы роста и гормон роста повышают эффективность получения эмбрионов in vitro и выживаемость витрифицированных бластоцист крупного рогатого скота после оттаивания. Theriogenology 2003;59:1393–1402.
-
Chang M. Оплодотворяющая способность сперматозоидов, введённых в маточные трубы. Nature 1951;168:697–698.
-
Austin C. Наблюдения за проникновением сперматозоида в яйцеклетку млекопитающих. Aust J Sci Res B 1951;4:581–596.
-
Yanagamachi R. Оплодотворение у млекопитающих. В кн.: Knobil E, Neill J (ред.) Физиология размножения, 2-е изд. Нью-Йорк: Raven Press, 1994.
-
Breininger E, Cetica C, Beconi M. Индукторы капацитации действуют через различные внутриклеточные механизмы в криоконсервированных сперматозоидах крупного рогатого скота. Theriogenology 2010;74:1036–1049.
-
Pons-Rejraji H, Bailey J, Leclerc P. Криоконсервирование влияет на внутриклеточные показатели сперматозоидов крупного рогатого скота, связанные с капацитацией и экзоцитозом акросомы. Reprod Fertil Dev 2009;21: 525–537.
-
Norman H, Hutchison J, Miller R. Использование сексированного семени и его влияние на частоту зачатия, пол телят, частоту трудных отёлов и мертворождений у голштинского скота в США. J Dairy Sci 2010;93:3880–3890.
-
Rasmussen S, Block J, Seidel G и др. Частота наступления беременности у лактирующих коров после переноса эмбрионов, полученных in vitro с использованием сперматозоидов, отсортированных по наличию X-хромосомы. Theriogenology 2013;79:453–461.
-
Avelino K, Rossetto M, Maraia A, Lima M, Mansano A, Garcia J. Данные о получении эмбрионов крупного рогатого скота in vitro с использованием сексированного семени после оттаивания и о частоте наступления беременности. Reprod Fertil Dev 2010;22:288.
-
Tervit H, Whittingham D, Rowson L. Успешное культивирование яйцеклеток овец и крупного рогатого скота in vitro. J Reprod Fertil 1972;38:177–179.
-
Holm P, Booth, P, Schmidt M, Greve, T, Callesen H. Высокая частота развития бластоцист крупного рогатого скота в статической системе получения эмбрионов in vitro при использовании среды SOFaa с добавлением цитрата натрия и мио-инозитола, с белками сыворотки или без них. Theriogenology 1999;52:683–700.
