
снижает их биологическую ценность, в том числе и доступность отдельных аминокислот.
Кроме вышеперечисленных факторов, влияющих на доступность, необходимо отметить активность пищеварительной системы, которая зависит от сбалансированности рациона по всем элементам питания и, в первую очередь, по аминокислотам.
Таким образом, доступность аминокислот для свиней можно представить как функцию от многофакторной переменной.
Переваримость сырого протеина и доступность аминокислот необходимо рассматривать в тесной взаимосвязи с их обменом в желудочно-кишечном тракте [10, 24, 48, 87, 99, 104, 191, 201, 207, 270, 276, 280, 330, 340]. Наблюдали значительное увеличение аминокислоты лизина эндогенного происхождения в тонком кишечнике растущих свиней на рационе, дефицитном по лизину. Однако абсолютное его количество в содержимом илеума было значительно меньшим, чем у свиней, получавших сбалансированные по лизину рационы. Причѐм, количество эндогенного азота составило 15,5; 19,0 и 37.4 % от потреблѐнного сырого протеина, сбалансированного по лизину и заданного животным в рационе по норме, ниже и выше нормы, соответственно [124].
5. Способы оценки переваримости сырого протеина и доступности аминокислот при переваривании в желудочнокишечном тракте у свиней
При изучении доступности аминокислот широко применяются ростовые методы in vivo . В пошаговом «slope» – методе сравнивают интенсивность роста животных, получающих изучаемый источник аминокислот и эталонный с разными градациями теоретически полнодоступных аминокислот [124].
Эталонный искусственный рацион (ЭР) составляют из заменимых и незаменимых кристаллических аминокислот,
витаминных препаратов, микрои макроэлементов в соответствии с потребностью, а также из крахмала, растительного масла и клетчатки. Смесь содержит все аминокислоты за исключением изучаемой, например, лизина. Кристаллический лизин с условной доступностью 100 % добавляют к ОР в различных количествах, например, ОР+0,05; ОР+ 0,1; ОР+0,6; ОР+0,7 лизина.
По росту животных на этих рационах строят эталонный расчѐтный график роста, накладывая на ось абсцисс содержание доступного лизина в рационе, а на ось ординат – показатели роста в виде прироста живой массы в граммах. Испытуемый источник белка, например, пшеница, вводится в основной рацион взамен крахмала, например, ОР (25), ОР (50); ОР 75) % пшеницы. При этом предполагается, что рост животных будет изменяться только от уровня доступной аминокислоты при прочих аналогичных условиях.
По расчѐтному графику находят, какому количеству аминокислоты соответствует тот или иной показатель роста. Доступность аминокислоты рассчитывается по формуле (1):
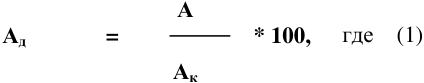
А
Ад = * 100, где (1)
Ак
А - количество аминокислоты, найденное по расчѐтному графику роста ;
Ак - количество аминокислоты, найденное по результатам аминокислотного анализа корма.
Разновидностью описанного метода может служить ростовой метод «замещения» для определения доступности лизина. Он основан на оценке способности исследуемого белка компенсировать недостаток лизина в стандартном рационе с 25 % пшеничного глютена, содержащем все незаменимые аминокислоты, кроме лизина [28].
Метод оценки доступности аминокислот, основанный на количественном определении пула свободных аминокислот венозной крови, взятой непосредственно из воротной вены печени через катетер, заимствован из медицинской практики и
модифицирован для животных [214, 359-365, 368, 370, 424, 704, 720].
Насыщение плазмы крови печѐночной воротной вены свободными аминокислотами строго зависит от поступления аминокислот корма из кишечника свиней. Этого нельзя сказать об артериальной крови, где эта зависимость не прослеживается [191]. Аминокислоты корма, освобождаются при переваривании в кишечнике в соотношениях, сходных с теми, которые имеются в сыром протеине корма, и всасываются относительно быстро и приблизительно в тех же соотношениях [362]. Для количественного определения всосавшихся аминокислот необходимо учитывать скорость кровотока, площадь сечения сосудов, взятых для исследования, пул аминокислот эндогенного происхождения. Скорость кровотока установить сложно технически. Однако R. Braude утверждает, что скорость потока портальной крови значительно повышается после кормления, соответственно происходит более интенсивный отток аминокислот без особых изменений со стороны концентрации ПСА [308-310].
Биохимические методы оценки доступности in vitro используются некоторыми авторами. Так, Babinszky, e.a. (1990), Cone (1993) использовали пепсин-панкреатиновый метод. Boisen и Fernandes (1995), Boisen, (1998) усовершенствовали этот метод, основанный на пепсинпанкреатиновом переваривании изучаемого белка вне живого организма в различных средах с препаратами протеолитических энзимов пищеварительных желѐз животных: пепсином, панкреатином, трипсином, химотрипсином, эрепсином, проназой, натуральными желудочным и кишечным соками [303305]. Количественно определяются доступные аминокислоты, освобождѐнные в процессе ферментолиза in vitro , попадающие в диализат. Метод высоко воспроизводим (Yin,2000, Balle,2002). И достаточно высока корреляция коэффициентов доступности аминокислот, полученных этим косвенным методом, с данными прямых in vivo [282, 753].
Yin с соавторами (2002) при изучении переваримости ячменя, пшеницы, соевой и рапсовой муки параллельно
