
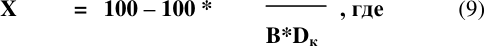
X = 100 – 100 * , где (9)
B*Dк
X - кажущаяся доступность аминокислоты в %;
А – концентрация инертного маркера в корме;
В – концентрация инертного маркера в содержимом подвздошной кишки или кале;
С- концентрация исследуемой аминокислоты в содержимом подвздошной кишки или кале;
D – концентрация исследуемой аминокислоты в корме. Показатели кажущейся доступности аминокислот некоторых кормов, определѐнные нами по содержимому подвздошной кишки, оказались ниже (Р<0,05) полученных традиционным (Т) методом. Исследования, включившие ряд поправок в метод после его критики в том числе по выбору варианта илеостомирования, подтвердили прежние результаты [443-445].
Есть мнение, что переваримость аминокислот в терминальном илеуме мало отличается от таковой в участках, приближенных к нему, т.е. каудальной части илеума на довольно продолжительном расстоянии. В опытах Summers D.J., Robblee A.R. (1985) найдены незначительные различия в илеальной переваримости аминокислот в нижней части тонкого кишечника , составившей 1/3 всего илеума.
Автор Fenton (1979) предлагает формулу (10) для определения переваримости аминокислот [398]: AAAD = [ feed aa2 – ( feed Cr2O3/feed Cr2O3* fecal aa) * 100]/feed aa (10) Сравнительный анализ существующих методов оценки доступности аминокислот позволяет говорить, во-первых, об отсутствии универсального подхода в этом вопросе, и во-вторых о признании многими исследователями метода (И) - определения кажущейся доступности по содержимому подвздошной кишки. Метод (И) заслуживает особого внимания, если при исследовании доступных аминокислот учитывать эндогенные их потери и с их помощью определять истинную доступность. Однако определение эндогенных аминокислот остается проблематичным.
При определении доступности аминокислот исследователям приходится сталкиваться с определѐнными трудностями. Проблема разделения аминокислот эндогенного и экзогенного происхождения из содержимого кишечника свиней, выдвинутая в начале прошлого столетия, не находит полного решения и в настоящее время [327, 374, 494, 542, 712, 719, 756, 768, 769].
Источниками эндогенного азота в организме свиней являются пищеварительные секреты, остатки эпителия внутренних стенок желудочно-кишечного тракта, альбумины, глобулины и свободные аминокислоты плазмы, активно участвующие в системе гомеостаза моногастричных [12, 110, 159, 214, 591, 638, 703, 720]. Большинство энзимов (амилаза, липаза, нуклеазы, протеиназы) на 95% имеют белковое происхождение. Основной источник эндогенного азота кишечника – эпителиальные клетки, имеющие высокую скорость обмена – от 24 до 72 часов. От 4 до 20% сывороточного альбумина систематически поступает в просвет пищеварительного канала. Плазменные белки также характеризуются высокой скоростью обновления [Цит. по 106, 382, 385, 390, 396, 401].
Поток аминокислот корма составляет менее 40% общего аминокислотного пула содержимого верхних отделов тонкого кишечника свиней [219, 269, 271, 287, 368]. Представляет интерес точка зрения об относительно постоянном «бассейне» азота в дуоденуме независимо от принятого корма в случае довольно ощутимых изменений в качественном и количественном составе рациона [198, 200, 443-445]. Значительный вклад эндогенного азота в процессе переваривания сырого протеина корма определяется необходимостью поддержания постоянства аминокислотного состава в содержимом просвета тонкого кишечника, где происходит переваривание азотистых веществ и всасывание аминокислот [406, 413, 431, 437, 470, 510, 539-541].
В нормальных физиологических условиях большая часть эндогенных белков и их фрагментов, несмотря на свою определѐнную устойчивость к расщеплению по сравнению с
кормовым белком, распадается до аминокислот и всасывается вторично в тонком кишечнике [10, 65, 76, 201]. У растущих свиней с живой массой 40-50 кг потребность в аминокислотах на 6-7 % покрывается за счѐт эндогенных поступлений [288, 311, 340, 350]. С точки зрения питательности эндогенные аминокислоты могут предотвращать имбаланс незаменимых аминокислот в течение непродолжительного времени [560, 579, 584, 588, 601, 609, 616].
Вопрос мешает ли существенно фракция эндогенных аминокислот кишечника определять доступность последних из корма, в настоящее время остается дискуссионным [557, 619, 634, 652, 662, 709, 746]. Некоторые исследователи считают, что измерение эндогенных потерь не обязательно [543, 550, 556]. С точки зрения других авторов, необходимо определять «остаточные» или базальные фракции аминокислот эндогенного происхождения при оценке истинного качества корма [597, 685, 698]. Этот вопрос рассматривают с разных позиций. Есть мнение, что количественно остатки метаболического азота после полного прохождения через желудочно-кишечный тракт можно выразить в виде относительной константы. Так, G. Schurig, S. Poppe (1975) установили, что количество эндогенного азота содержимого прямой кишки (в расчѐте на 100 г сухого корма заданного рациона) свиней с живой массой 40-80 кг является постоянной величиной и не зависит от типа и состава рациона [665]. Противоположно предыдущему мнение о том, что природа рациона оказывает существенное влияние на поток и аминокислотный профиль эндогенов, даже если общее количество секретируемого азота существенно не изменяется [397, 431, 538, 683, 698]. Значительно меняющееся количество эндогенного азота собирали из дистальной (терминальной) части тонкого кишечника [698]. В опытах на растущих свиньях установлено, что пул свободных аминокислот плазмы, помеченных изотопами, был подвержен колебаниям и находился в зависимости от природы белков рациона [429]. Количество эндогенного азота в нижней части тонкого кишечника (илеуме) изменялось от 84 до 549 мг на 100 г сухого вещества рациона.
