
Аминокислоты ДНК (клеточное ядро) –
(из корма) генетический код
Активизация в клетке с Образование специфической
помощью АТФ информации РНК
Перенос на транспортную Рибосомы – присоединение
РНК информационной РНК
Сборка по строительной
модели (определенной
генетическим кодом)
Образование пептидов и белков
Освобождение белка от
информационной РНК
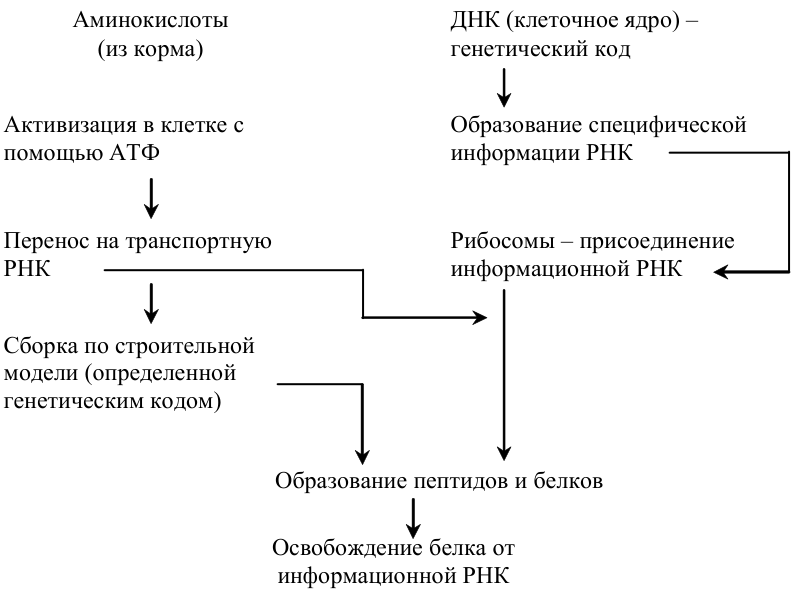
Схема синтеза белка из аминокислот
Если не окажется хотя бы одной из аминокислот в количестве, соответствующем генетическому коду, дальнейший синтез белка приостанавливается. Избыточные аминокислоты подвергаются окислительному дезаминированию. Вследствие этого использование протеина, его биологическая ценность, снижается.
Биологическую ценность протеина определяют различными способами. Ее можно установить по приросту живой массы у растущих животных при скармливании им испытуемого протеина на фоне стандартного рациона или по материалам изучения баланса азота, выразив ее коэффициентом использования протеина (КИП), рассчитываемым по уравнению Дьякова:
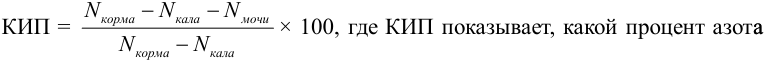
КИП = N корма − N кала − N мочи × 100, где КИП показывает, какой процент азот а
N корма − N кала
переваримого протеина откладывается в теле в виде белка.
Качество (полноценность) протеина может быть оценено по содержанию в нем аминокислот.
В природе известно свыше 150 аминокислот, но только примерно 20 из них служат мономерными звеньями, из которых построены белки организма животного. Как уже показано, порядок включения в них аминокислот определен генетическим кодом.
Большинство микроорганизмов и растения синтезируют необходимые им аминокислоты. Возможности животного организма в этом отношении ограничены.
В животном организме примерно половина из них (10) может быть синтезирована в реакциях аминирования, переаминирования, карбоксилирования в количестве, достаточном для нормального отправления жизненных процессов (аланин, аспарагиновая кислота, глицин, глутаминовая кислота, пролин, серин, тирозин, цистин, цистеин и не входящий в состав белков цитруллин и др.), – это заменимые аминокислоты . Другие аминокислоты или вовсе не синтезируются в организме или синтезируются в количестве, недостаточном для нормальной жизнедеятельности (аргинин, валин, гистидин, изолейцин, лейцин, лизин, метионин, треонин, триптофан, фенилаланин); их относят к группе незаменимых аминокислот .
Деление аминокислот на заменимые и незаменимые в известной мере условно. Некоторые из аминокислот в одних случаях могут быть заменимыми, в других – незаменимыми. Это зависит от того, для какой функции организма они используются – для роста или поддержания жизни, в каком возрасте и физиологическом состоянии находятся животные; зависит от наличия в кормах некоторых специфических веществ. Так, заменимая аминокислота глицин является для цыплят незаменимой. Аргинин может образовываться у свиней из орнитина (орнитин может синтезироваться из пролина); следовательно, при наличии орнитина он становится частично заменимым.
Физиологическое значение незаменимых аминокислот разнообразно.
Аргинину принадлежит важная роль в спермиогенезе. Он необходим также для нормального роста молодняка, особенно хрячков, белки мышц которых содержат его больше, чем белки мышц свинок. В зависимости от обеспеченности им находится функция паращитовидных желез, углеводный обмен, всасывание кальция. Валин необходим для нормального функционирования нервной и эндокринной систем. Дефицит валина в кормах вызывает снижение аппетита, замедление роста животных, обуславливает повышение чувствительности нервных окончаний, нарушение координации движения, мышечную слабость и дрожание. Обеспеченность гистидином влияет на устойчивость процессов азотистого обмена, синтеза гемоглобина, ядерных белков и ряда ферментов, рост мышечной ткани, особенно у самок, в белке которых повышено содержание этой аминокислоты. Изолейцин входит в состав многих белков; он необходим для нормального усвоения пищевых аминокислот. Недостаток аминокислоты ведет к уменьшению синтеза белка, снижению прироста массы тела и оплаты корма. Лейцин требуется для построения тканевых и плазменных белков, синтеза инсулина, глобулинов, окситоцина. При его дефиците усиливается потеря азота из организма и замедляется рост. Треонин и фенилаланин необходимы для синтеза гормона адреналина и гормонов тироксина и трийодтиронина. Треонин (вместе с изолейцином) способствует усвоению пищевых аминокислот. Его дефицит усиливает потери азота из организма и вызывает снижение живой массы. С обеспечением фенилаланином связано пигментообразование и кроветворение (созревание ретикулоцитов).
Незаменимая для цыплят аминокислота глицин нужна для синтеза белков, формирования оперения, хрящевой ткани, детоксикации ядов и образования желчных кислот. При дефиците глицина замедляется рост молодняка птицы, ухудшается конверсия корма.
В реальных условиях кормления животных протеины растительного происхождения при оптимальной комбинации кормов способны обеспечить потребность
животных в вышеназванных незаменимых аминокислотах. Гораздо сложнее сделать это в отношении трех других незаменимых аминокислот - лизина , метионина и триптофана . Это - наиболее дефицитные из незаменимых аминокислот и потому их называют « критическими », или « лимитирующими » (зачастую дефицитным для свиней бывает и треонин).
Лизин чаще всего находится на грани недостаточности. В природе встречается только L-форма, и животный организм может использовать только эту форму лизина. При химическом синтезе получают рацемическую смесь – DL – лизин.
Лизин необходим для синтеза всех белков и довольно инертен к превращениям, не связанным с синтезом белков. Он оказывает влияние на минеральный обмен (способствует усвоению кальция, фосфора, железа), на кроветворную функцию костного мозга, на превращение каротина в ретинол, на активность ферментов. Дефицит лизина в кормах ведет к снижению аппетита, проявлению анемии, ухудшению использования протеина, отставанию в росте и истощению, нарушению кальцификации костей, огрубению и сухости волосяного покрова и оперения. С обеспечением животных лизином связаны скорость овуляции и развитие эмбрионов, объем эякулята у производителей, молочность маточного поголовья.
Лизином богаты корма животного происхождения (рыбная, мясная, мясокостная мука, молоко и отходы молочной промышленности), кормовые дрожжи, зернобобовые (соя, горох и др.), соевые жмых и шрот. Для восполнения дефицита лизина промышленность вырабатывает кормовые формы лизина.
Метионин относится к группе серосодержащих аминокислот. Он входит в состав многих белков, принимает участие во многих процессах, связанных с синтезом витаминов, гормонов, ферментов, участвует в образовании таких соединений, как креатин, серин, цистин, играющих большую роль в обмене веществ. Метионин является донором метильных групп для синтеза холина и кератина, препятствует окислению белковых веществ, предотвращает жировое перерождение печени, обеззараживает в печени ядовитые вещества, участвует в образовании гемоглобина.
Установлена связь метионина с витамином В12: хорошая обеспеченность животных этим витамином снижает их потребность в метионине.
Недостаток метионина в кормах приводит к снижению уровня плазменных белков, ухудшению аппетита, задержке роста, анемии, общей вялости, истощению животных; теряется блеск и изреживается волосяной покров. При патологоанатомическом вскрытии у животных обнаруживают жировое перерождение печени, геморрагии в почках, изменения в поджелудочной железе, селезенке и других органах.
Потребность животных в метионине зависит от наличия в кормах другой серосодержащей аминокислоты - цистина , которым может быть заменена примерно половина (40-53%) потребности в метионине, и поэтому учитывают их совместное содержание.
В протеине большинства кормов находится умеренное количество серосодержащих аминокислот (метионина и цистина). Дефицитны по ним протеины кормовых дрожжей, кровяной, мясной, мясокостной муки, зерновых бобовых, соевого жмыха и шрота. Хорошими его источниками служат протеины рыбной муки, куриного яйца, подсолнечникового жмыха и шрота, кукурузы. В практике животноводства применяют кормовой DL-метионин, из которого используются организмом оба его изомера.
