
Каждый этап взаимодействия субстрата с ферментом характеризуется своими константами скорости. Отношение суммы констант скорости распада фермент-субстратного комплекса к константе скорости образования фермeнт-cyбcтpaтнoгo комплекса называется константой Михаэлиса ( Km ). По величине Km каталитические реакции можно поделить на быстрые ( Km 10-6 моль/л и меньше) и медленные ( Km 10-2 – до 10-6 ).
Зависимость активности фермента от количества субстрата
Слишком низкая концентрация субстрата приводит к низкой скорсти реакции фермент-субстрат. Это происходит из-за того, что все каталитические участки на ферменте в любой данный момент времени оказывается незанятыми субстратом. Очевидно, что в этих условиях каталитический потенциал системы не может полностью реализоваться. По мере увеличения концентрации субстрата скорость реакции фермент – субстрат увеличивается до максимальной Vmax (рис. 9.5).
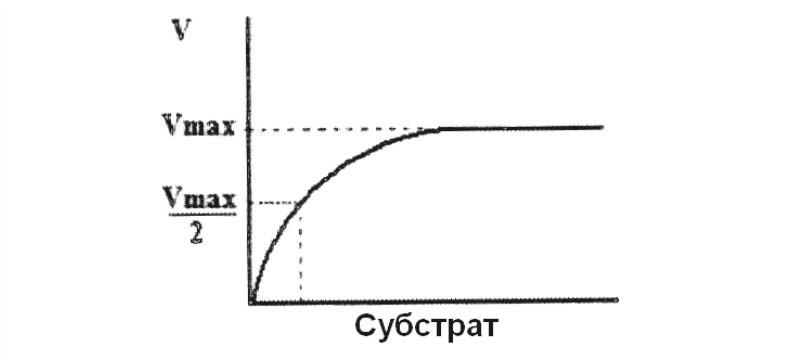
Начиная с этой точки, концентрация субстрата становится слишком высокой, чтобы все каталитические участки фермента были задействованы. При высоких концентрациях субстрата наступает насыщение фермента субстратом, то есть наступает такой момент, когда уже все молекулы фермента задействованы в каталитическом процессе и прироста скорости реакции не будет.
9.4. Кофакторы ферментов
Активность ряда ферментов зависит только от структуры его белковой молекулы, тогда как для других требуется, кроме того, присутствие определенных групп небелковой природы, так называемых, кофакторов . В роли кофакторов могут выступать или ионы металлов, или
сложные органические соединения называемые коферментами ; иногда для каталитической активности необходимо наличие тех и других. Кофакторы, как правило, термостабильны, тогда как большинство ферментов при нагревании инактивируется. Связывание кофакторов с ферментами характеризуется разной степенью сродства. Существуют кофакторы, ковалентно связанные с белком. Природный комплекс фермента с кофактором называют холоферментом , а неактивный белок, остающийся после удаления кофактора – апоферментом .
Ниже перечислены некоторые ферменты, для которых кофакторами служат указанные ионы металлов.
Zn2+ Сu2+ (Cu+ ) Алкогольдегидрогеназа Тирозиназа Карбоангидраза Цитохромоксидаза Карбоксипептидаза Mg2+ К+ Фосфогидролазы Пируватфосфокиназа Фосфотрансферазы (требует также присутствия ионов Mg2+ ) Mn2+ Na+ Аргиназа АТФаза плазматической Фосфотрансферзы мембраны (требует также Fe2+ или Fe3+ присутствие ионов К+ и Mg2+ ) Цитохромы Пероксидаза Каталаза Ферредоксин
У таких ферментов ион металла выполняет какую-нибудь одну из двух возможных функций. Он может служить мостиком, связывающим фермент с субстратом в результате образования координационного комплекса, или он может непосредственно выполнять каталитическую функцию. Считается, например, что у каталазы - фермента, катализирующего разложение перекиси водорода, - атом железа играет роль каталитического центра. Некоторой способностью разлагать перекись водорода обладают даже простые соли железа, присутствие ферментного белка во много раз усиливает эту способность.
9.5. Классификация коферментов
Коферменты классифицируются по химической природе: витаминные, витаминоподобные, невитаминные, и по механизму действия: переносчики атомов водорода, электронов, протонов и отдельных химических групп.
Коферменты переносчики атомов водорода, электронов и протонов
Невитаминные коферменты
Гем – входит в состав гемсодержащих ферментов: цитохромов (ферменты тканевого дыхания и микросомального окисления), ферментов каталазы и пероксидазы. Структуру гема составляет суперкольцо протопорфирина IХ, которое состоит из 4 пирольних колец, в центре протопорфиринового ядра находится атом Fe2+ , благодаря его наличию, ферменты, содержащие гем, способны транспортировать электроны. При этом железо переходит из двухвалентной формы в трехвалентную форму и наоборот.
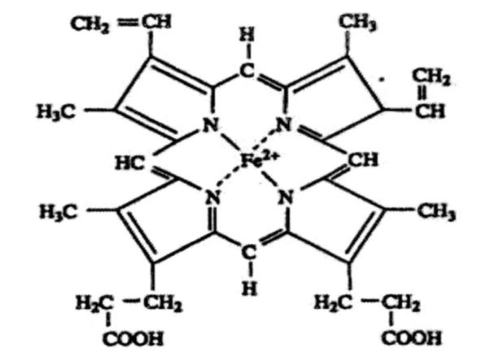
гем
Глютатион (G-SH) – трипептид, состоит из остатков глютамата, цистеина и глицина (гамма-глютаминил-цистеинил-глицин) транспортирует атомы водорода. Имеет в своем составе свободную SH -гpyппy цистеина, за счет которой осуществляется перенос атомов водорода или идет присоединение субстратов: 2GSH ↔ GS-SG .
Биологическая роль глютатиона в качестве кофермента состоит в том, что он функционирует в составе ферментов глютатионпероксидазы и глютатионредуктазы (антиоксидантных ферментов), глютатион- S - трансферазы, способствует обезвреживанию токсических веществ.
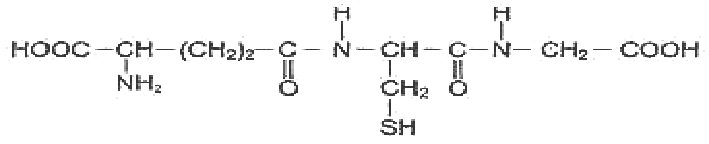
глютатион
