
Глава 10. Обмен энергии
10.1. Химическая энергия и ее переносчики
Химические реакции, происходящие в организме животных в процессе промежуточного обмена, сопровождаются поглощением или освобождением энергии. Та часть освобожденной энергии, которая становится доступной, чтобы делать работу, называется свободной энергией, обозначается ΔG , как изобарно-изотермический потенциал, или энергия Гиббса (живая клетка в любой момент имеет одинаковую температуру, то есть изотермична, и имеет практически одинаковое давление, т.е. изобарична).
Реакции, в результате которых происходит освобождение (отдача) энергии, называются экзергоническими, ∆G является отрицательной (∆G- ). Реакции, происходящие с поглощением энергии, называются эндергоническими, ∆G является положительной (∆G+). Для лучшего понимания эти реакции можно сравнить с реакциями в неорганической химии. Одни реакции происходят с выделением тепла и потерей его в окружающую среду (например, добавление концентрированной серной кислоты в воду), их называют экзотермическими реакциями ( ∆G отрицательная), другие с поглощением тепла из окружающей среды – это эндотермические реакции ( ∆G положительная).
Большинство реакций синтеза веществ в теле животных являются эндергоническими, и потребная энергия для их осуществления получается из экзергонических катаболитических реакций. Освобожденная энергия может быть использована для синтеза новых веществ с помощью посредников, которые принимают участие в обоих процессах, забирая энергию из одного и перенося ее другому. Типичными промежуточными посредниками являются аденозинтрифосфат (АТФ), гуанозинтрифосфат (ГТФ), цитидинтрифосфат (ЦТФ) и уридинтрифосфат (УТФ). Наиболее важным из этих нуклеотидов является АТФ.
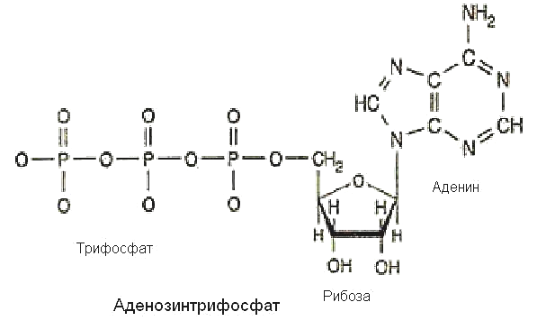
Аденозин образуется из пуринового основания аденина и сахара D-рибозы. Фосфорилирование гидроксильной группы при 5-ом углеродном атоме сахара дает аденозинмонофосфат (АМФ); последующее присоединение неорганического фосфата (Рн) дает аденозиндифосфат (АДФ) и затем аденозинтрифосфат (АТФ). При таких реакциях в клетке АТФ и АДФ функционируют в комплексе с магнием MgATФ²ˉ и MgАДФ¯ , в некоторых реакциях в комплексе с марганцем МnATФ²ˉ. Добавление последних двух фосфатных связей требует значительных затрат энергии, которые могут быть получены непосредственно путем реакции АМФ или АДФ с энергетически богатыми материалами. Например, при распаде углеводов на одной из ступеней происходит превращение фосфоэнолпирувата в пируват, что обеспечивает образование одной молекулы АТФ, полученной из АДФ + фосфат.
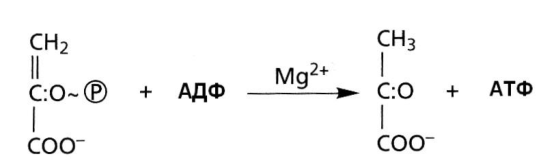
Фосфоэнолпируват
Пируват
Свободная энергия АТФ выделяется при гидролизе, ее потенциал ∆G =−50 кДж. Когда АТФ образуется из АДФ во время реакции, как в этом примере, процесс называется фосфорилированием на субстратном уровне. Альтернативно АТФ может быть произведен непрямым способом.
В основе большинства биологических реакций окисления лежит процесс отщепления водорода ( Н ) от субстрата, однако окончательное его соединение с кислородом, чтобы образовать воду, происходит только в конце серии реакций. Типичным примером является отщепление водорода никотинамидадениндинуклеотидом ( НАД+ ) для окисления изоцитрата до α-глютарата.
Отрицательно заряженный кислород соединяется с двумя протонами водорода, образуя воду ( Н2О ). В процессе этого пути АТФ образуется из АДФ и неорганического фосфата ( Рн ), процесс называется окислительным фосфорилированием . Он происходит в митохондриях с помощью восстановленного НАД+ , произведенного в них.
НАДН(+Н+ )+О+3АДФ+3 Pн→НАД+ +3 АТФ+Н2О
В простейшем изложении животные получают энергию в результате окисления питательных веществ кормов:
Корм + О2 + АДФ + Рн →CO2 + Н2О + АТФ
В случае окисления одной моли глюкозы (180г.):
С6Н12О6 + 6О2 + 38АДФ +38Рн → 6СО2 + 6Н2О + 38АТФ
Энергия, зафиксированная в АТФ, может быть использована для механической работы, для осуществления жизненных процессов при поддержании животных и синтеза продукции – молока, мяса, яиц и др. Как сокращение, так и расслабление мускулов включают реакции, требующие энергии, которая обеспечивается за счет распада АТФ до АДФ и неорганического фосфата. Энергия, фиксированная в АТФ, может быть использована для осуществления реакций, в которых фосфатная группа отдается большому разнообразию акцепторных молекул. Среди них находится D-глюкоза:
АТФ+D-глюкоза→АДФ+D-глюкоза-фосфат
В этом пути глюкоза заряжается энергией для последующих биосинтетических реакций. В других случаях, таких как первая стадия синтеза жирных кислот, АТФ отдает энергию и разрушается до АМФ и неорганического фосфата.
Ацетат+Ко А+АТФ↔ацетил-Ко А+пирофосфат +АМФ
Роль АТФ в снабжении и использовании энергии может быть показана на рис. 10.2.
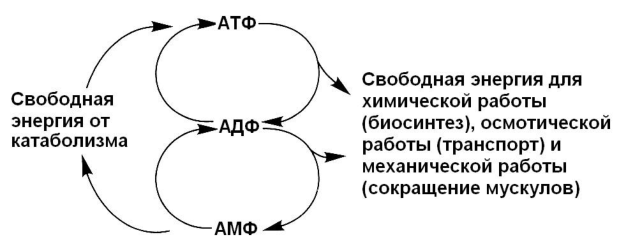
Количество энергии, которое становится доступным в результате потери каждой из двух концевых фосфатных связей АТФ, варьирует в зависимости от условий, где происходит гидролиз. Сейчас сложилось согласие, что в условиях интактной клетки она составляет около 50 кДж/моль, однако, количество изменяется в зависимости от рН, концентрации ионов Mg++ и концентрации АТФ, АДФ и фосфата. Фосфатные связи относятся к высокоэнергетическим связям, и представляются в виде ~[ Р ].
Фиксация энергии в форме АТФ является мимолетным феноменом, и энергия, произведенная в избытке от потребности, запасается в более стабильной форме в таких веществах как фосфокреатин мускулов, который образуется из креатина, когда АДФ имеется в избытке.
