веденный глюкозо-6-фосфат из гликогена не включается в систему АТФ за исключением глюкозо-6-фосфата,который используется в конверсии остаточной глюкозы в глюкозо-6-фосфат. Производство энергии из гликогена является, таким образом, несколько более эффективным, чем это происходит из глюкозы, поступившей из пищеварительного тракта.
10.4. Жир как источник энергии
Запасы триглицеридов в теле мобилизуются, чтобы обеспечить энергией, под действием липаз, которые катализируют получение глицерола и жирных кислот. Глицерол является гликогенным и включается в гликолитический путь как дигидроацетонфосфат, полученный в соответствии со следующей реакцией:
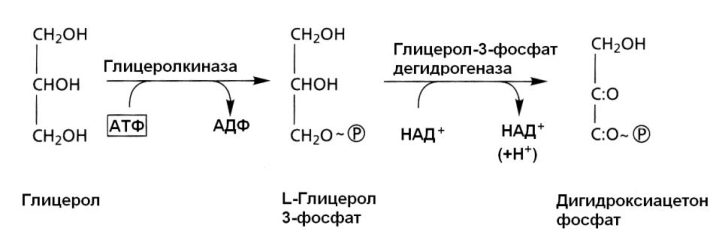
Глюкоза может затем быть произведена путем обратимой альдолазной реакции для получения фруктозо-1,6-дифосфата, который превращается в глюкозу под действием гексозной дифосфатазы, глюкозо-6фосфат изомеразы и глюкозо-6-фосфатазы. Если глюкоза используется для производства энергии (на 1 моль глюкозы расходуется 2 моля глицерола), эффективность глицерола как источника энергии составит:
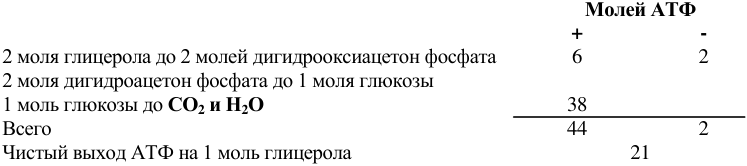
Молей АТФ
+ -
2 моля глицерола до 2 молей дигидрооксиацетон фосфата 6 2
2 моля дигидроацетон фосфата до 1 моля глюкозы
1 моль глюкозы до СО2 и Н2О 38
Всего 44 2
Чистый выход АТФ на 1 моль глицерола 21
С другой стороны дигидрооксиацетонфосфат может включаться в гликолитический путь и метаболизироваться через пируват и цикл трикарбоновых кислот до СО2 и Н2О с получением энергии. Эффективность глицерола в этих условиях будет такой:
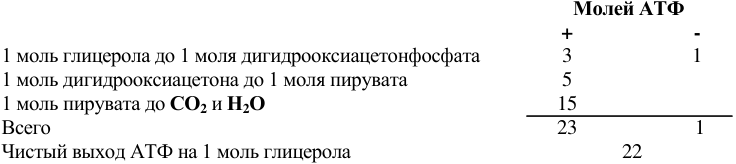
Молей АТФ
+ -
1 моль глицерола до 1 моля дигидрооксиацетонфосфата 3 1
1 моль дигидрооксиацетона до 1 моля пирувата 5
1 моль пирувата до СО2 и Н2О 15
Всего 23 1
Чистый выход АТФ на 1 моль глицерола 22
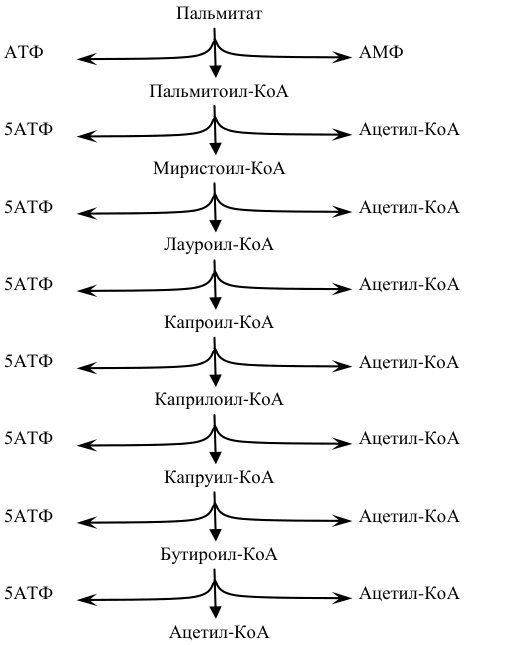
Основная доля энергии, производимая из жира, приходится на жирные кислоты. Главный путь их деградации является β-окисление, который приводит к поступательному укорочению углеродной цепи путем отрыва каждый раз по два углеродных атома. Первой стадией реакции β-окисления является реакция жирной кислоты с коэнзимом А в присутствии АТФ и жироацил-КоА лигазы, чтобы получить ацил-Ко А. Это происходит в цитозоле и жироацил-КоА затем переходит в митохондрии в виде комплекса с карнитином и там регенерируется. Затем он подвергается серии реакций с получением ацил-Ко А при уменьшении на два углеродных атома по сравнению с их количеством в начале, при этом 1 моль ацетил-КоА освобождается.
В течение отрывов по два-углеродных ацетил-КоА производится эквивалент, равный 5 молям АТФ. Остающийся ацилкоэнзим подвергается такой же серии реакций, и процесс продолжается до тех пор, пока углеродная цепь полностью не превратится в ацетил-коэнзим А. Он включается в цикл трикарбоновых кислот и окисляется до СО2 и Н2О , каждый моль ацетил-СоА метаболизируется с образованием 12 молей АТФ. Так как начальная лигазная реакция единственно необходима один раз для каждой молекулы, то больше АТФ производится в течение процесса образования энергии с помощью окисления длинной, чем короткой цепи кислот. Окисление 16-углеродной пальмитиновой кислоты (пальмитата) показано на рисунке10.6.
Пальмитат
АТФ АМФ
Пальмитоил - КоА
5АТФ Ацетил-КоА
Миристоил - КоА
5АТФ Ацетил-КоА
Лауроил-КоА
5АТФ Ацетил-КоА
Капроил - КоА
5АТФ Ацетил - КоА
Каприлоил - КоА
5АТФ Ацетил-КоА
Капруил - КоА
5АТФ Ацетил-КоА
Бутироил - КоА
5АТФ Ацетил-КоА
Ацетил - КоА
Рисунок 10.6 – β-оксидация пальмитиновой кислоты (пальмитата)
Продукцию энергии в этой последовательности можно суммировать так:
| + | Молей | АТФ − | |
|---|---|---|---|
| 1 моль пальмитата в пальмитоил-КоА | 2 | ||
| 1 моль пальмитоил-КоА в 8 молей ацетил-КоА | 35 | ||
| 8 молей ацетил-КоА в СО2 и Н2О | 96 | ||
| Всего | 131 | 2 | |
| Чистый выход АТФ на 1 моль пальмитата | 129 |
10.5. Аминокислоты как источники энергии
Когда аминокислоты присутствуют в избытке от потребности животного или когда животному необходимо катаболизировать ткани тела, чтобы поддержать необходимые энергетические процессы, аминокислоты могут быть использованы для обеспечения энергией. Деградация аминокислот происходит во всех тканях, но, главным образом, в печени; почки также активны в этом плане. Мускульные ткани малоактивны.
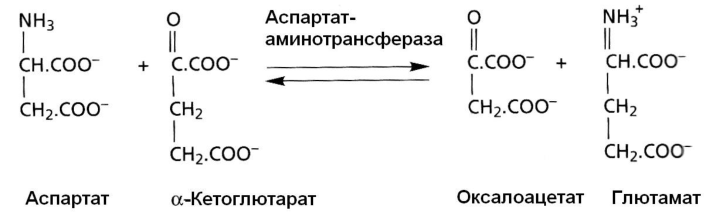
Первая стадия в оксидативной деградации аминокислот – это отщепление аминогруппы с помощью одного или другого из двух главных процессов, окислительного дезаминирования и переаминирования (трансаминирования). При переаминировании аминогруппа переносится на α-углеродный атом кето-кислоты, обычно, на α-кетоглюторат, в результате образуется другая кето-кислота и глютаминовая кислота (глютамат). Реакция катализируется энзимами аминотрансферазами. Реакция для аспарагиновой кислоты (аспартата):
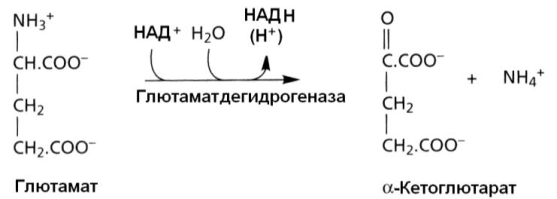
Глютамат, таким путем образованный, а также глютамат, который поступает из пищеварительного тракта и при расщеплении белков тканей, может подвергаться окислительному дезаминированию в присутствии глютаматдегидрогеназы: