
разуется около 33 кДж/моль, что сравнимо с величиной энергии, необходимой для синтеза АТФ (~30,5 кДж/моль).
Затем янтарная кислота (сукцинат) под действием сукцинатдегидрогеназы, содержащей ФАД в качестве кофермента, превращается в фумаровую кислоту (фумарат). На следующей стадии фумаровая кислота (фумарат) подвергается реакции гидратации с образованием яблочной кислоты (малата). Яблочная кислота под действием НАД-зависимой малатдегидрогеназы превращается в щавелевоуксусную кислоту. Следовательно, в цикле происходит регенерация щавелевоуксусной кислоты, что обеспечивает функционирование цикла трикарбоновых кислот.
3 НАДН и ФАДН2, образующиеся в цикле трикабоновых кислот, окисляются в дыхательной цепи (или в цепи переноса электронов). Генерирование АТФ происходит при транспорте электронов от этих переносчиков на О2. На каждую молекулу НАДН в митохондриях образуется 3 АТФ, а на 1 молекулу ФАДН2– 2 молекулы АТФ. Следовательно, в процессе окислительного фосфорилирования образуется 11 АТФ.
Кроме того, 1 моль АТФ образуется при переходе сукцинил-КоА в сукцинат. Окисление каждого моля пирувата, таким образом, дает 15 молей АТФ. Общая продукция АТФ при окислении одного моля глюкозы:
| Молей + | АТФ - | |
|---|---|---|
| 1 моль глюкозы до 2 молей пирувата | 10 | 2 |
| 2 моля пирувата до 2 молей ацетил-СоА | 6 | 0 |
| 2 моля ацетил-СоА до СО2 и Н2О | 24 | 0 |
| Всего на моль глюкозы | 38 |
Выход энергии при образовании 38 высокоэнергетических фосфатных связей может быть рассчитан как 38 × 50= 1900 кДж/моль глюкозы. Общее содержание свободной энергии глюкозы 2870 кДж/моль. Эффективность выхода энергии в виде АТФ в теле, таким образом, составляет 1900/2870= 0,66. Остальная энергия- 0,34, или 34%, теряется в виде тепла. Перенос восстановленного НАД+ , произведенного во время гликолиза, включает глицерофосфатный челнок, выход АТФ составляет только 2 моля на моль, поэтому выход АТФ при окислении каждого моля глюкозы составит 36 молей. Коэффициент эффективности образования свободной энергии будет равен: 36×50/2870=0,63. Такие расчеты признаются объективным для реакций при нормальных условиях в клетке.
Дыхательная цепь (ферменты тканевого дыхания) – это переносчики протонов и электронов от окисляемого субстрата на кислород. Молекулярный кислород непосредственно не участвует в цикле трикарбоновых кислот. Однако цикл функционирует лишь в аэробных условиях
поскольку НАД+ и ФАД в митохондрии могут генерироваться только при переносе электронов на молекулярный кислород.
Дыхательная цепь состоит из: 1) НАД – зависимой дегидрогеназы; 2) ФАД – зависимой дегидрогеназы; 3) Убихинона ( KoQ ); 4) Цитохромов: b , с , а + а3 .
НАД-зависимые дегидрогеназы. В качестве кофермента содержат НАД и НАДФ. Пиридиновое кольцо никотинамида способно присоединять электроны и протоны водорода.
ФАД и ФМН-зависимые дегидрогеназы содержат в качестве кофермента фосфорный эфир витамина В2 (ФАД).
Убихинон ( КоQ ) отнимает водород у флавопротеидов и превращается при этом в гидрохинон.
Цитохромы – белки -хромопротеиды, способные присоединять электроны благодаря наличию в своем составе в качестве простетических групп железопорфиринов. Они принимают электрон от вещества, являющегося более сильным восстановителем, и передают его более сильному окислителю.
В цитохроме с- порфириновая плоскость ковалентно связана с белком через два остатка цистеина, а в цитохромах b и а она ковалентно не связана с белком.
В цитохроме a + a3 (цитохромоксидазе) вместо протопорфирина содержится порфирин А, который отличается рядом структурных особенностей. В отличие от гема гемоглобина атом железа в цитохромах может обратимо переходить из двух в трехвалентное состояние; это обеспечивает транспорт электронов.
Пентозофосфатный путь. Наряду с циклом трикарбоновых кислот существует другой путь расщепления глюкозы. Первая реакция на этом пути – окисление глюкозо-6-фосфата до 6-фосфоглюконата. Фосфоглюконатный путь (известный также как пентозофосфатный путь или гексозомонофосфатный шунт) не является главным путем окисления глюкозы. Его основное назначение состоит в том, чтобы генерировать в цитоплазме восстановитель в форме НАД∙Н. Его функция особенно важна для клеток, в которых идет восстановительный синтез жирных кислот и стероидов; к ним относятся клетки печени, молочной железы, жировой ткани и коры надпочечников. В скелетных мышцах фосфоглюконатного пути практически нет. Вторая функция этого пути заключается в образовании пентозы, главным образом, D – рибозы для синтеза нуклеиновых кислот. Ступени этого пути на рисунке 10.5.
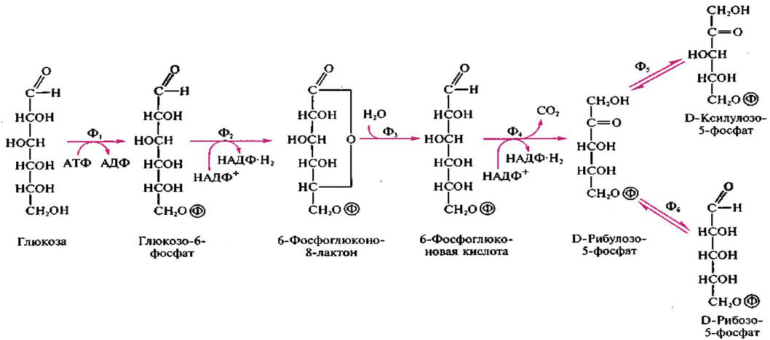
В отличие от восстановленного НАД+ восстановленный НАДР+ не подвергается окислительному фосфолирированию для получения АТФ, и главная функция пентозо-фосфатного пути состоит в том, чтобы произвести восстановленный НАДР+ для тканей, которые имеют специфическую в нем потребность, в частности, в тех, где активно синтезируются жирные кислоты. Почти одна треть глюкозы, метаболизированной печенью, может проходить этим путем, его уровень выше в жировой ткани. Восстановленный НАДР+ может быть конвертирован в восстановленный НАД+ через энерго-связанную трансгидрогеназу и, таким образом, быть непрямым источником энергии, наподобие АТФ.
10.3. Гликоген как источник энергии
Гликоген – основная форма запаса углеводов у животных, присутствует в большинстве клеток. Он может составлять до 8% свежей печени и до 1% в мускулах. Освобождение энергии из гликогена в утилизируемой форме требует его расщепления до глюкозы, которая затем распадается, как это описано выше. Распад гликогена в клетках происходит благодаря действию неорганического фосфата и гликогеновой фосфорилазы. Этот энзим катализирует разрыв 1,4-гликозидных связей гликогена, и деградация начинается от нередуцированного конца цепи. Молекулы глюкозо-1-фосфат освобождаются до тех пор, пока не достигнут точки разветвления. Перестройка молекулы после этого происходит в присутствии олиготрансферазы, и образуются короткие декстрины с концевыми 1,6-связями с глюкозой. Под воздействием олиго-1,6глюкозидазы на 1,6 связи освобождается глюкоза, и под действием фосфорилазы производится глюкозо-1-фосфат. Итогом расщепления гликогена является продукция глюкозо-1-фосфат плюс немного глюкозы. Глюкозо-1-фосфат превращается под воздействием фосфоглюкомутазы в глюкозо-6-фосфат, который входит в Эмбден-Мейергоф или пентозо-фосфатный пути, как это происходит с остатками глюкозы. Произ-
