
α-кетоглюторат может затем быть использован в последующем трансаминировании, и восстановленный коэнзим окисляется путем окислительного фосфорилирования.
Глютамат является единственной аминокислотой в ткани млекопитающих, который подвергается окислительному дезаминированию с высокой скоростью. Начальное трансаминирование – наиболее важный этап для использования аминокислот как источников энергии. Флавинсвязанные D-и L- амиинокислотные оксидазы, которые катализируют образование кето-кислот и аммиака, имеются, но их значение крайне слабое. Конечным продуктом деградации аминокислот является ацетилкоэнзим А, который затем проходит через цикл трикарбоновых кислот для получения энергии. Ацетил-коэнзим А может получаться напрямую (как в случае триптофана, изолейцина и лейцина), через пируват (аланин, глицин, серин, треонин, цистеин), или через ацетоацетил-КоА (фенилаланин, тирозин, лейцин, лизин и триптофан). Другие аминокислоты разрушаются с помощью реакций разной сложности, чтобы получить такие продукты, как α-кетоглютарат, оксалоацетат, фумарат и сукцинил-КоА, которые вступают в цикл трикарбоновых кислот и дают ацетил-КоА через фосфоэнолпируват.
Одним из последствий катаболизма аминокислот является продукция аммиака, который высокотоксичен. Часть его может быть использована в аминировании при синтезе аминокислот в теле. В этом случае аммиак реагирует с α-кетоглютаратом и образует глютамат, который затем используется в синтезе. Реакция является обратимой в окислительном дезаминировании, за исключением, что НАДР+ заменяют НАД+ . Большая часть аммиака экскретируется из тела в виде мочевины у млекопитающих и мочевой кислоты у птиц.
10.6. Образование мочевины и мочевой кислоты
Дезаминирование аминокислот происходит во всех органах тела, однако в наибольшей мере в печени. В большинстве других тканей аммиак используется на образование глютамина или аланина (в мускулах), прежде чем транспортироваться в печень и регенерироваться.
У млекопитающих аммиак превращается в мочевину. Это двустадийный процесс, требующий энергии в форме АТФ. Первая стадия связана с образованием карбамоилфосфата из двуокиси углерода и аммония в присутствии карбамоилфосфатсинтетазы:
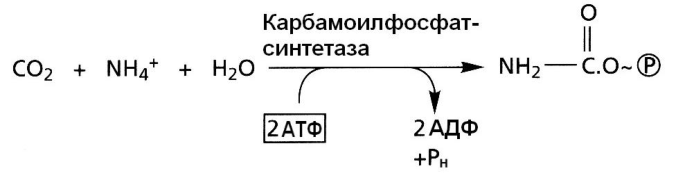
Карбамоил фосфат затем реагирует с орнитином, чтобы начать цикл реакций в образовании мочевины (рис. 10.7).
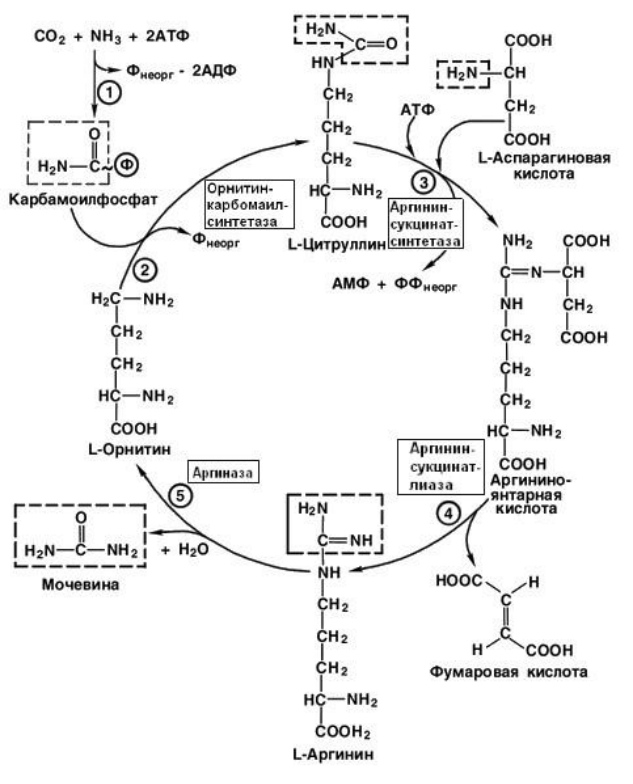
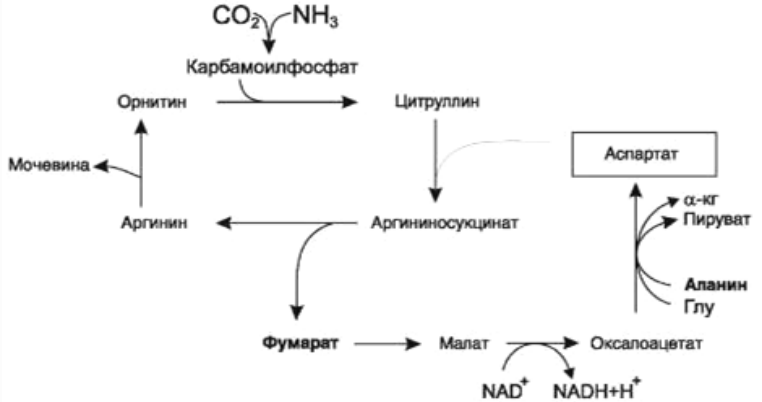
Аспартат, участвующий в цикле, получается в результате реакции глютамата с оксалоацетатом; глютамат, произведенный из α- кетоглютарата плюс аммиак, освобождается в результате дезаминирования. Оксалоацетат получается из фумаровой кислоты (фумарата), освобожденной в результате образования аргинина из аргининсукцината, который вступает в цикл трикарбоновых кислот и превращается в малат, а затем оксалоацетат. Затем наступает второй цикл, связывающий цикл мочевины и цикл трикарбоновых кислот, как показано на рисунке 10.8.
При оценке эффективности производства энергии из аминокислот, энергия, затрачиваемая на синтез мочевины, должна быть установлена и вычтена из энергии, получаемой в результате оксидации углеродного скелета. Если взять в качестве примера аспартат, он сначала превращается в оксалоацетат и глютамат путем реакции с α- кетоглютаратом. Оксалоацетат окисляется через фосфоенолпируватный путь и цикл трикарбоновых кислот. Глютамат дезаминируется в регенерированный α-кетоглютарат и освобожденный аммиак конвертируется в мочевину. Балансовый расчет представлен ниже:
| + | Молей | АТФ - | |
|---|---|---|---|
| 2 моля аспартата в глютамат+аксалоацетат | 0 | 0 | |
| 2 моля глютамата в α-кетоглютарат+NH3 | 6 | 0 | |
| 2 моля аммиака в глютамин | 0 | 2 | |
| 1 моль аммиака в карбамоилфосфат | 0 | 2 | |
| 1 моль цитрулина в аргининосукцинат | 0 | 2 | |
| 1 моль малата в оксалоацетат | 3 | 0 | |
| 1 моль аммиака в аспартат | 0 | 3 | |
| 2 моля оксалоацетата в СО2 и Н2О | 30 | 0 | |
| Всего | 39 | 9 | |
| Чистый выход из 2 молей аспартата - | 30 | ||
| Чистый выход из 1 моля аспартата | 15 |
У птиц экскреция аммиака идет по пути мочевой кислоты, который включает присоединение аммиака к глютаминовой кислоте с образованием глютамина.
